 2026, Vol. 58


2. 中国科学院大学, 北京 100049;
3. 江苏省淡水水产研究所, 南京 210017;
4. 郑州轻工业大学烟草科学与工程学院, 郑州 450002
随着水产养殖业的持续发展,河蟹(Eriocheir sinensis)作为我国重要的经济养殖品种,其产业规模不断扩大[1]。然而,长期的高密度养殖、不合理饲料投喂和投入品使用等导致池塘底泥中积累大量沉积物,包括残饵、粪便和生物残骸等[2]。这些沉积物处理不及时,不仅会造成底泥环境恶化,诱发水体富营养化,还会直接威胁河蟹的健康生长,严重制约养殖业的可持续发展。因此,如何有效改善底泥环境,成为当前水产养殖领域亟待解决的重要课题。
池塘底泥是养殖生态系统的核心组成部分,既是营养物质循环的关键场所,又是污染物的主要“源”和“汇”[3-4]。底泥微生物群落作为底泥环境健康的重要指示因子,在有机物降解、营养盐循环以及污染物转化等过程中发挥着不可替代的作用[5]。优化底泥微生物群落的结构和功能,是改善底泥环境、提高养殖效益的重要手段[6]。
近年来,环境改良剂在水产养殖上的应用受到广泛关注,主要分为氧化型底泥改良剂和微生态制剂两大类[7]。氧化型底泥改良剂通过提高底泥的氧化还原能力,有效改善底泥的理化性质,如增加溶解氧浓度、降解有机物及氨氮[8-10]。而微生态制剂则通过引入功能型微生物,调整底泥微生物群落结构,增强底泥的生态功能和生物活性[11-12]。目前,不同类型改良剂对不同类型土壤的改良作用研究报道较多[13-15],但在水产养殖业中多集中于单一类型环境改良剂的应用,针对两种改良剂联合施用的协同作用及其长期效应的研究仍然不足。
基于以上,本研究设置氧化型底泥改良剂、微生态制剂及二者联合施用处理,比较了不同改良剂处理对河蟹养殖系统底泥理化性质、细菌群落多样性及功能特征的影响,以揭示两种改良剂的协同作用及其对底泥环境优化的潜在机制,为河蟹养殖的生态环境管理提供科学依据和技术支持。
1 材料与方法 1.1 试验材料本研究选用两种市售环境改良剂进行试验,分别为氧化型底泥改良剂(商品名:超能底改,主要成分为过硫酸氢钾复合盐,含量为20%)和微生态制剂(商品名:净水先锋,主要成分为枯草芽孢杆菌,有效活菌含量为2 000亿CFU/g)。试验所用底泥为池塘清淤后的干淤泥,过孔径0.5 cm的网筛后备用。底泥的全磷、全氮、有机质初始值分别为0.46、0.89、14.0 g/kg。供试河蟹品种为扣蟹(Eriocheir sinensis),初始平均体重为(22.37±3.66) g,试验开始前暂养5 d以适应试验条件。
1.2 试验设计本试验在江苏省淡水水产研究所扬中基地进行。试验系统为容积2.25 m3的玻璃缸(1.5 m×1.5 m×1.0 m),每个玻璃缸内铺设15 cm厚的池塘底泥。试验期间,玻璃缸水位维持在0.4 m。同时,每个玻璃缸配置4个气石用于持续曝气充氧,并放置4条仿真地瓜藤蔓作为附着基。
试验设置4个处理:①CK,对照,未添加改良剂;②A,添加氧化型底泥改良剂,仅添加过硫酸氢钾复合盐,每隔10 d施用1次,施用量为1.25 g/m3;③B,添加微生态制剂,仅添加枯草芽孢杆菌制剂,每隔10 d施用1次,施用量为0.13 g/m3;④AB,枯草芽孢杆菌与过硫酸氢钾复合盐联合施用,每次先添加枯草芽孢杆菌制剂(施用量0.13 g/m3),5 d后再添加过硫酸氢钾复合盐(施用量1.25 g/m3),重复循环至试验结束。每个处理3个重复。
试验时间为2023年4月10日—7月30日。每缸投放20只扣蟹,投喂粗蛋白含量为40% 的河蟹专用饲料,前50 d每天投饲量为扣蟹总体重的3%,后60 d投饲量为总体重的4%。试验环境参数控制为:平均水温(25.08±0.77) ℃、溶解氧浓度(7.11±0.31) mg/L、水体流速3.68 mL/s。
1.3 底泥样品采集试验期间,每月25日利用活塞式柱状沉积物采样器采集底泥样品,采样深度为表层0~10 cm。每次采样共获取12个底泥样品,每个样品立即进行分装处理。其中,一部分取500 g底泥,装入无菌聚乙烯自封袋中,快速冷却后冷冻干燥,用于理化指标的测定;另一部分取50 g底泥,装入50 mL无菌离心管中,立即保存于–80 ℃冷冻环境中,用于后续DNA提取及细菌微生物群落分析。
1.4 河蟹生长指标测定试验结束时,每缸随机捞取5只河蟹放入食品塑料盒中,静置20 min,吸干河蟹体表水分,采用电子秤(精度0.01g)进行称重,获得河蟹的末体重(g),计算末均重(g)、平均增重率(%)和特定生长率(%)。均增重率(%)=(平均末重–平均初重)/平均初重×100;特定生长率(%)=(ln末均重–ln初均重)/养殖天数× 100。
1.5 底泥理化性质测定底泥理化性质测定的主要指标包括全磷、全氮和有机质。全磷的测定依据NY/T 88—1988标准[16],全氮的测定参照HJ 717—2014标准[17],有机质的测定采用NY/T 1121.6—2006标准[18]。
1.6 底泥细菌群落分析底泥样本DNA的提取严格按照HiPure Soil DNA Kits(土壤DNA提取试剂盒)说明书进行。提取后使用1% 的琼脂糖凝胶电泳检测DNA完整性,并使用超微量分光光度计测定DNA浓度和纯度。使用引物341F(5′-CCTACGGGNGGCWGCAG-3′)和806R (5′-GGACTACHVGGGTATCTAAT-3′)对细菌16S rRNA基因的V3~V4可变区进行PCR扩增。扩增后的产物经过纯化后,连接测序接头,构建测序文库,并在Illumina平台上进行高通量测序。测序分析由广州基迪奥生物科技有限公司完成。
1.7 数据处理与统计分析通过高通量16S rRNA基因测序分析,利用QIIME2软件对细菌群落进行门和属水平的分类。细菌群落α多样性使用Shannon指数、Chao指数和PD指数进行表征。采用单因素方差分析(One-way ANOVA)检验不同采样时间或处理的显著性,并采用Tukey HSD进行多重比较。使用双因素方差分析(Two-way ANOVA)检验时间(5月、6月、7月)、处理(CK、A、B、AB)及其交互作用对α多样性的影响。群落β多样性通过主坐标分析(PCoA)可视化,并采用置换多元方差分析(PERMANOVA)检验细菌群落结构的差异。通过典型相关分析(CCA)探讨细菌群落与环境因子(全氮、全磷、有机质)之间的关系,评估环境因子对群落分布的影响。不同处理和时间下的群落结构差异通过UPGMA聚类分析进行评估。所有数据分析均在R语言中完成。
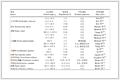
2 结果与分析 2.1 环境改良剂对底泥理化性质的影响由表 1数据可知,底泥全磷、全氮和有机质含量因处理因素或时间因素表现出无显著差异或存在显著差异的动态变化。5月,各处理之间全磷含量(1.65~1.71 g/kg)无显著差异,但6月改良剂处理相较于对照(CK)全磷含量升高,其中两种改良剂联合施用处理(AB)全磷含量(1.88 g/kg)最高,显著高于CK处理(1.51g/kg)(P < 0.05)。7月,各处理全磷含量普遍下降,其中仅添加微生态制剂处理(B)最低(1.18 g/kg),明显低于其他处理组。各处理底泥全氮含量在6月达到峰值,尤其是CK(1.06 g/kg)和AB处理(1.05 g/kg),显著高于5月各处理。7月,仅添加氧化型底质改良剂处理(A)全氮含量最高(1.06 g/kg),显著高于CK处理(0.91 g/kg)。各处理底泥有机质含量随时间推移逐渐增加,且同一月份各处理间差异不显著。其中,5月各处理有机质含量在16.5~17.0 g/kg,6月各处理有机质含量在17.8~19.4 g/kg,7月各处理有机质含量在18.3~ 20.2 g/kg。双因素方差分析结果表明,时间因素对全磷(P= 0.0001)、全氮(P=0.0001)和有机质(P=0.001)含量的影响显著,而处理因素和处理×时间的交互效应对全磷、全氮和有机质的影响未表现出显著性(P > 0.05)。
|
表 1 5—7月不同处理底泥理化指标的动态变化 Table 1 Dynamic changes in sediment physicochemical parameters under different treatments from May to July |
在饲养110 d后,各处理河蟹的生长情况如表 2所示。由表 2可知,单独施用一种环境改良剂处理(A、B)河蟹的平均增重率和特定生长率均显著高于CK处理(P < 0.05),两种改良剂联合施用(AB)的提高作用更显著,且平均增重率显著高于单独施用处理和CK处理,表明两种改良剂联合施用可显著促进河蟹生长。
|
|
表 2 不同处理河蟹生长情况比较 Table 2 Crab growth under different treatments |
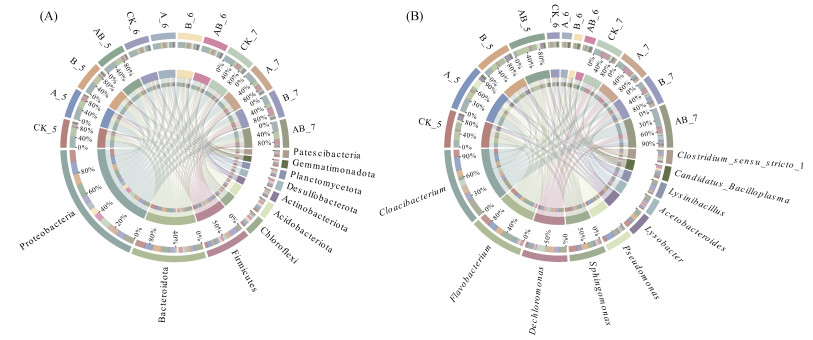
底泥细菌群落组成分析表明,变形菌门(Proteobacteria)和拟杆菌门(Bacteroidota)始终占据优势地位,且其相对丰度在不同时间均超过50%(图 1A);其次为厚壁菌门(Firmicutes)、绿弯菌门(Chloroflexi)、酸杆菌门(Acidobacteriota)和放线菌门(Actinobacteriota)。随着时间的推移,Proteobacteria的相对丰度在所有处理中均保持较高水平,而Firmicutes和Chloroflexi的相对丰度在6月和7月有所增加,尤其是在7月,AB处理中Proteobacteria和Firmicutes的相对丰度显著提高。在属水平上(图 1B),底泥细菌主要优势属包括克劳斯氏菌属(Cloacibacterium)、脱氯单胞菌属(Dechloromonas)、黄杆菌属(Flavobacterium)和鞘脂单胞菌属(Sphingomonas)。AB处理中,Clostridium_sensu_ stricto_1、假单胞菌属(Pseudomonas)和溶杆菌属(Lysobacter)的相对丰度显著高于其他处理。A处理和B处理中,Dechloromonas和Sphingomonas在A处理中表现出较高的相对丰度,而赖氨酸芽孢杆菌属(Lysinibacillus)和产水乙酸拟杆菌(Acetobacteroides)的相对丰度在B处理中有所增加。随着时间的推移,各处理中Dechloromonas和Sphingomonas的相对丰度在7月显著升高,而Clostridium_sensu_stricto_1和Lysinibacillus的相对丰度则在AB处理中逐渐提升。
|
(A:门水平,B:属水平。图中处理代号后的数字5、6、7分别表示5月、6月、7月) 图 1 不同环境改良剂处理下底泥细菌群落变化 Fig. 1 Changes of sediment bacterial communities under different environmental amendment treatments |
细菌群落α多样性分析表明,时间(5月、6月、7月)和处理(CK、A、B、AB)显著影响了底泥细菌群落的多样性,表现为各处理Shannon指数、Chao1指数和PD指数的显著变化(表 3)。5—6月,各处理Shannon指数普遍升高,但处理间差异不显著;而Chao1指数和PD指数则表现出一定的组间差异。5月,CK和AB处理的Chao1指数显著高于A处理,而B处理位于中间水平;6月,B处理的Chao1指数达到最高,显著高于AB处理。7月,细菌群落的多样性出现下降趋势,CK处理的Shannon指数显著高于AB处理,A处理和B处理的差异较小。双因素方差分析结果显示,Shannon指数受处理、时间及其交互作用的显著影响(P < 0.05);而Chao1和PD指数主要受时间及其与处理的交互作用影响,表明处理和时间的交互作用在群落多样性的动态调控中起着重要作用。
|
|
表 3 不同处理对底泥细菌群落α多样性指数的影响 Table 3 α diversity indexes of sediment bacterial communities under different treatments |
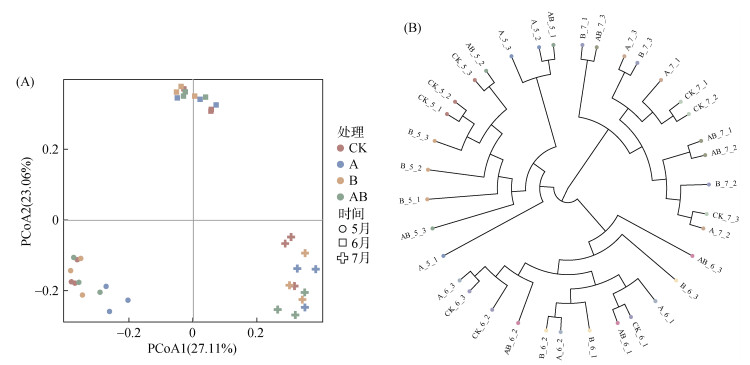
基于细菌群落β多样性的主坐标分析(PCoA)结果显示,处理(CK、A、B、AB)与时间(5月、6月、7月)显著影响底泥中细菌群落的结构(图 2A)。PCoA1和PCoA2分别解释了27.11% 和23.06% 的细菌群落结构变异。5月,所有处理的样本点在PCoA1和PCoA2坐标系中分布较为紧密,表明初始阶段细菌群落结构差异较小。6月,各样本点在PCoA1轴上的分散性有所增加,尤其是A处理,表明A处理导致群落结构发生显著变化。7月,各处理的样本点在PCoA1和PCoA2轴上的分布明显分化,CK与AB处理的群落结构差异最大,而A处理和B处理介于两者之间,表明随着时间推移,不同处理对细菌群落结构的影响趋于显著。总体来看,AB处理在维持群落结构稳定性方面效果较弱,而CK处理的群落结构相对稳定。处理与时间的交互作用是驱动底泥中细菌群落结构动态变化的重要因素。
|
(A:主坐标分析(PCoA);B:聚类分析(UPGMA),图中编号A_6_1,A表示处理A,6表示6月,1表示3个重复中的第1个,其余以此类推,下同) 图 2 不同处理对底泥细菌群落β多样性的影响 Fig. 2 β diversities of sediment bacterial communities under different treatments |
UPGMA聚类分析进一步表明,时间因素对细菌群落结构变化具有显著影响,相同时间的样本聚集较为紧密(图 2B)。然而,不同处理在同一时间也表现出一定差异,尤其是在6月和7月,AB处理的样本呈现出独特的系统发育分支。随着时间的推移,细菌群落的演替特征逐渐显现,特别是7月的样本,与前期相比,细菌群落组成出现明显的动态变化。
在OTU水平上,对各处理进行置换多元方差分析(PERMANOVA)(表 4),结果显示,相同处理在不同时间其细菌群落结构存在显著差异(P < 0.01)。具体而言,CK(P=0.004)、A(P=0.003)、B(P=0.007)和AB处理(P=0.006)在5月、6月和7月的细菌群落结构均显著不同,表明时间是驱动各处理细菌群落结构动态变化的关键因素。进一步分析相同时间不同处理间的差异,发现5月不同处理之间存在显著差异(P= 0.019),而6月(P=0.72)和7月(P=0.139)各处理之间的差异不显著。这表明,在5月,不同环境改良剂的施用均对细菌群落结构产生了较为显著的影响,而随着时间的推移,各处理间的群落结构逐渐趋于一致,不同改良剂的施用对群落结构的影响逐渐减弱。
|
|
表 4 不同处理分组比较信息检验表 Table 4 Comparison information table for different treatment groups |
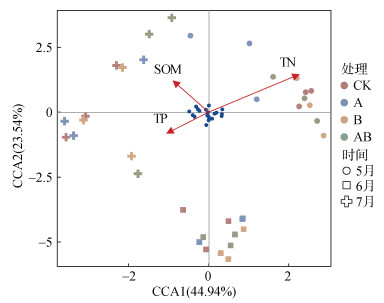
典型相关分析(CCA)结果表明,底泥细菌群落结构与环境因子之间存在显著相关性(图 3),其中CCA1轴和CCA2轴分别解释了44.94% 和23.54% 的细菌群落结构变异,累计贡献率为68.48%。全氮(TN)、全磷(TP)和有机质(SOM)对细菌群落的分布有显著影响,其中全氮影响最为显著。不同处理(CK、A、B、AB)的样本在CCA空间中呈现明显聚类,A处理样本集中于右侧,与全氮水平高相关,B处理样本则表现出较大变异性。按采样时间(5月、6月、7月)分类后,5月和7月样本的变异性较大,表明外部环境变化或微生物活性显著影响了细菌群落。
|
图 3 底泥理化因子与细菌群落结构的典型相关分析 Fig. 3 Canonical correspondence analysis (CCA) of sediment physicochemical factors and bacterial community structure |
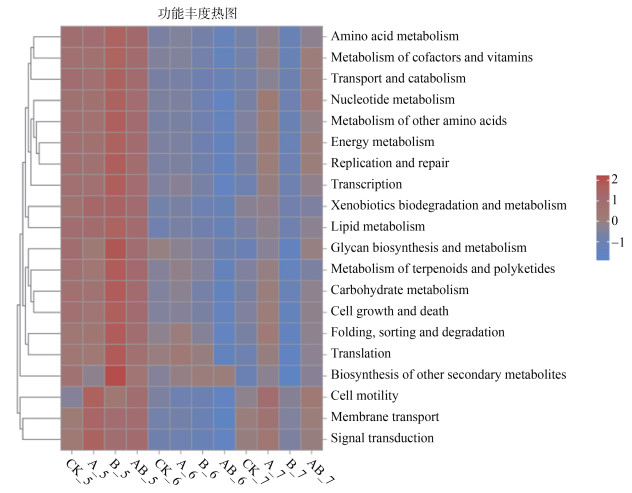
基于PICRUSt2的功能预测分析表明,不同环境改良剂处理显著影响了河蟹养殖系统底泥中细菌群落的功能组成(图 4)。CK处理中,与难降解有机物利用相关聚糖生物合成与代谢(Glycan biosynthesis and metabolism)功能丰度较高,而改良剂处理(A、B、AB)中氨基酸代谢(Amino acid metabolism)、脂质代谢(Lipid metabolism)和核苷酸代谢(Nucleotide metabolism)功能明显增强。具体而言,A处理和B处理中氨基酸代谢和碳水化合物代谢(Carbohydrate metabolism)功能丰度较高,而运输与分解代谢功能(Transport and catabolism)在AB处理中明显提升。此外,B处理中能量代谢(Energy metabolism)功能表现出受抑制的趋势,而细胞运动相关(Cell motility)功能丰度在A处理中较高。聚类分析显示,CK处理的功能模式与改良剂处理(A、B、AB)显著分化,其中A处理和AB处理的功能特征较为相似,这可能反映了底泥微生物群落对处理条件的差异化响应与功能重组。
|
图 4 环境改良剂处理下底泥细菌群落功能组成的预测变化 Fig. 4 Predicted changes in functional composition of sediment bacterial community treated by environmental amendments |
底泥作为水体生态系统的重要组成部分,富含氮、磷和有机质等关键成分,不仅为水体提供了重要的营养来源,还为底栖生物提供了栖息地,并对水质起着调节作用[19]。磷主要以沉积物结合态或矿物态形式存在于底泥中,而氮则以溶解态或悬浮物形式存在于水体中[20]。本研究结果显示,5—6月底泥中全磷含量在不同时间未出现显著波动,表明水体磷的沉积与底泥中磷的释放可能在某种程度上达到了平衡。这一发现与其他研究结果一致,如李鑫等[21]发现底泥中的磷转化主要受水体磷输入与底泥磷释放相互作用的调控。然而,底泥中的全氮和有机质含量在不同处理中表现出显著的增加,尤其是在施用过硫酸氢钾复合盐(A)和过硫酸氢钾复合盐与枯草芽孢杆菌联合施用(AB)后,试验末期底泥中全氮和有机质的含量明显高于初期,揭示了氧化型和复合型环境改良剂对底泥氮、磷转化及有机物降解的调控作用,尤其是对氮转化过程的调控作用,这一现象可能与微生物活性的增强有关,
微生物参与底泥中碳、氮等营养元素的循环和能量流动,是底泥生态系统的重要组分;而微生物代谢是底泥中养分转化的重要驱动因素,能够显著影响氮、磷等元素的转化[22-23]。本研究中,AB处理的微生物降解活性显著增强,促进了底泥中有机物的分解,并加剧了氮的释放。这一机制可能与水体中浮游藻类的生长和衰退密切相关。藻类死亡后的有机物沉积到底泥中,为微生物提供了更多的有机碳源,进一步促进了氮的释放过程。何义进[24]的研究表明,微生态制剂能够通过改善底泥微环境,增强微生物群落的活性,从而调节氮的积累与释放。
然而,尽管5—6月全磷含量未显示出显著变化,底泥中氮和有机质含量的却增加,这表明磷和氮的转化受到不同机制的控制。氮的释放可能与微生物的代谢活动密切相关,而磷的转化则可能受到水体磷沉积与底泥中磷释放之间平衡的影响。相较于其他研究,本研究在5—6月未观察到底泥中全磷含量的显著波动,进一步验证了磷的转化过程可能受水体外部输入和底泥磷释放之间的平衡关系主导。
3.2 环境改良剂与细菌群落功能的关系环境改良剂通过调节底泥中的养分水平,可能间接地影响底泥细菌群落的功能组成。本研究中,氮含量的动态变化对细菌群落的组成产生了重要影响,尤其在AB处理中,随着氮含量的升高,与氮代谢相关的细菌,如脱氯单胞菌属(Dechloromonas)和假单胞菌属(Pseudomonas)的丰度显著增加,表明这些细菌在底泥氮的转化过程中可能发挥了关键作用。Dechloromonas细菌是一类反硝化细菌[25],可能通过还原硝酸盐和亚硝酸盐将氮转化为氮气,从而减少底泥中氮的积累,维持底泥的氮平衡。Pseudomonas细菌则具有广泛的氮转化能力,能够在多种环境条件下进行氮代谢,促进底泥中氮的转化和污染物的降解[26]。
此外,底泥中鞘氨醇单胞菌属(Sphingomonas)细菌的丰度也有所增加。这类细菌广泛参与有机污染物的降解,能够促进底泥中有机质的转化[27]。随着底泥中有机质的积累,Sphingomonas的增殖可能加速了底泥有机质的降解过程,进一步促进了养分的转化,且有机质的降解可以降低河蟹患病死亡率[28]。这与Waigi等[29]对Sphingomonas在底泥有机质降解中作用的研究结果一致,进一步验证了该类细菌在底泥养分循环中的重要地位。
3.3 细菌群落的相互作用与动态变化细菌群落的动态变化揭示了环境改良剂施用后微生物群落的适应过程,特别是在AB处理中,Clostridium_sensu_stricto_1、Pseudomonas和溶杆菌属(Lysobacter)等的相对丰度显著增加。Clostridium_ sensu_stricto_1为厌氧性细菌,能够通过降解有机物为反硝化细菌提供碳源和电子供体,促进反硝化过程。Pseudomonas和Lysobacter则通常参与有机物降解[30],其增殖可能进一步加剧了底泥中有机质的分解过程,促进了氮和其他元素的转化。这些细菌的丰度增加表明,施用环境改良剂可能通过增强微生物群落活性,促进了有机物降解和养分转化。
此外,微生物群落的变化不仅受到氮源的影响,还与微生物间的相互作用密切相关。在A处理中,Dechloromonas和Sphingomonas的丰度增加可能与其在底泥中对氮和有机质的竞争力增强有关。在B处理中,赖氨酸芽孢杆菌属(Lysinibacillus)和产水乙酸拟杆菌属(Acetobacteroides)的富集与底泥中有机质降解密切相关。微生物间的竞争与协同作用可能是驱动底泥中养分转化和群落结构变化的重要因素。这些相互作用可能通过调控底泥中生态位的分配,进一步影响微生物群落的功能和结构。
从时间维度上看,微生物群落的结构发生了显著变化。随着时间的推移,从5月到7月,底泥中微生物群落的多样性逐渐降低,尤其在6月和7月,群落结构发生了较大变化。群落多样性的降低可能与微生物之间的竞争性排斥效应以及对有限资源的竞争有关[31]。AB处理在7月表现出的显著差异表明,长期施用环境改良剂可能导致群落结构的单一化[7],从而影响底泥生态系统的稳定性。这一发现强调了环境改良剂在长期使用过程中对群落结构的潜在影响,特别是在群落稳定性方面的影响。
4 结论本研究揭示了环境改良剂对底泥中氮、磷转化及微生物群落功能的影响。微生态制剂通过调节微生物群落活性,不仅改善了底泥中养分的转化,还促进了有机物的降解,增强了底泥生态系统的稳定性,有利于水产动物的生长。与前期研究相比,本研究进一步强调了微生物间的协同作用和竞争关系对底泥养分转化的驱动作用。时间因素对微生物群落结构变化具有深刻影响,尤其是长期施用改良剂可能导致群落结构的单一,因此需进一步研究其对生态系统稳定性的潜在影响,以指导实际应用中的环境管理策略。
| [1] |
周刚, 周军. 我国河蟹产业现状及可持续发展对策[J]. 中国水产, 2011(2): 11-12 (  0) |
| [2] |
王新, 吴逸飞, 姚晓红, 等. 微生态制剂对养殖后期虾池水质及细菌群落的影响[J]. 浙江农业学报, 2014, 26(1): 40-47 ( 0) |
| [3] |
彭丹, 金峰, 吕俊杰, 等. 滇池底泥中有机质的分布状况研究[J]. 土壤, 2004, 36(5): 568-572 DOI:10.3321/j.issn:0253-9829.2004.05.020 ( 0) |
| [4] |
于小彦, 张平究, 张经纬, 等. 城市河流沉积物微生物量分布和群落结构特征[J]. 环境科学学报, 2020, 40(2): 585-596 ( 0) |
| [5] |
Martins G, Terada A, Ribeiro D C, et al. Structure and activity of lacustrine sediment bacteria involved in nutrient and iron cycles: Structure and activity of lacustrine sediment bacteria[J]. FEMS Microbiology Ecology, 2011, 77(3): 666-679 DOI:10.1111/j.1574-6941.2011.01145.x ( 0) |
| [6] |
李彤, 成永旭, 孙云飞, 等. 水华对中华绒螯蟹(Eriocheir sinensis)池塘养殖系统细菌群落及潜在致病菌的影响[J]. 海洋与湖沼, 2024, 55(4): 988-996 ( 0) |
| [7] |
吴伟, 范立民. 水产养殖环境的污染及其控制对策[J]. 中国农业科技导报, 2014, 16(2): 26-34 ( 0) |
| [8] |
王兵, 艾红学, 李菠, 等. 单过硫酸氢钾对常见水产养殖生物致病菌的抑制与杀灭效果[J]. 中国消毒学杂志, 2008, 25(5): 501-502 ( 0) |
| [9] |
李声平, 董靖, 杨移斌, 等. 过硫酸氢钾复合物粉对4种常见水产病原微生物的杀灭效果[J]. 南方水产科学, 2023, 19(4): 148-157 ( 0) |
| [10] |
张星, 姚吉伦, 徐文思, 等. 过硫酸氢钾在水处理中的应用研究进展[J]. 化学与生物工程, 2018, 35(2): 8-14 ( 0) |
| [11] |
韩莎, 胡炜, 李成林, 等. 饲料中添加微生态制剂对仿刺参生长、消化和免疫功能的影响[J]. 动物营养学报, 2019, 31(6): 2800-2806 ( 0) |
| [12] |
乔振民, 韩迎亚, 刘有华, 等. 6种微生态制剂对鲤鱼养殖水体水质的影响[J]. 江苏农业科学, 2020, 48(12): 159-162 ( 0) |
| [13] |
高婧, 杨劲松, 姚荣江, 等. 不同改良剂对滨海重度盐渍土质量和肥料利用效率的影响[J]. 土壤, 2019, 51(3): 524-529 DOI:10.13758/j.cnki.tr.2019.03.015 ( 0) |
| [14] |
唐雪, 尚辉, 刘广明, 等. 复合改良剂对盐碱土改良及植物生长的影响[J]. 土壤, 2021, 53(5): 1033-1039 DOI:10.13758/j.cnki.tr.2021.05.019 ( 0) |
| [15] |
赵文瑞, 孔群芳, 张文娟, 等. 骨粉生物质炭对酸性土壤的改良作用[J]. 土壤学报, 2024, 61(5): 1299-1309 ( 0) |
| [16] |
中华人民共和国农业部. 土壤全磷测定法: NY/T 88—1988[S]. 北京: 中国标准出版社, 1988.
( 0) |
| [17] |
中华人民共和国环境保护部. 土壤质量-全氮的测定-凯氏法: HJ 717—2014[S]. 北京: 中国环境出版社, 2014.
( 0) |
| [18] |
中华人民共和国农业部. 土壤检测. 第6部分: 土壤有机质的测定: NY/T 1121.6—2006[S]. 北京: 中国标准出版社, 2006.
( 0) |
| [19] |
陈丽, 宋力, 黄民生, 等. 河湖底泥资源化研究现状与展望[J]. 上海化工, 2012, 37(7): 1-6 ( 0) |
| [20] |
赵兴青, 杨柳燕, 于振洋, 等. 太湖沉积物理化性质及营养盐的时空变化[J]. 湖泊科学, 2007, 19(6): 698-704 ( 0) |
| [21] |
李鑫, 耿雪, 王洪伟, 等. 外源输入对底泥疏浚新生表层磷恢复及迁移的影响[J]. 环境科学, 2019, 40(8): 3539-3549 ( 0) |
| [22] |
张红霞, 张舒雅, 张玉涛, 等. 山药根际土壤微生物16S rRNA多样性及影响因素[J]. 土壤学报, 2019, 56(5): 1235-1246 ( 0) |
| [23] |
张恒军, 吴群河. 底泥的氮、磷释放及其微生物影响的研究[J]. 环境技术, 2003(S1): 20-23, 27 ( 0) |
| [24] |
何义进. 微生态制剂降解养殖水体氨氮及亚硝酸盐的研究[D]. 南京: 南京农业大学, 2007: 3–19.
( 0) |
| [25] |
Yang Z C, Zhou Q, Sun H M, et al. Metagenomic analyses of microbial structure and metabolic pathway in solid-phase denitrification systems for advanced nitrogen removal of wastewater treatment plant effluent: A pilot-scale study[J]. Water Research, 2021, 196: 117067 DOI:10.1016/j.watres.2021.117067 ( 0) |
| [26] |
汪旭晖, 杨垒, 任勇翔, 等. 异养硝化细菌Pseudomonas putida YH的脱氮特性及降解动力学[J]. 环境科学, 2019, 40(4): 1892-1899 ( 0) |
| [27] |
刘辉, 韦璐璐, 朱龙发, 等. 鞘氨醇单胞菌的研究进展[J]. 微生物学通报, 2023, 50(6): 2738-2752 ( 0) |
| [28] |
陈友明, 葛家春, 李建刚, 等. 健康与患病河蟹池塘底泥微生物群落特征差异[J]. 土壤, 2024, 56(2): 358-366 DOI:10.13758/j.cnki.tr.2024.02.015 ( 0) |
| [29] |
Waigi M G, Kang F X, Goikavi C, et al. Phenanthrene biodegradation by sphingomonads and its application in the contaminated soils and sediments: A review[J]. International Biodeterioration & Biodegradation, 2015, 104: 333-349 ( 0) |
| [30] |
Lü H X, Wei J L, Tang G X, et al. Microbial consortium degrading of organic pollutants: Source, degradation efficiency, pathway, mechanism and application[J]. Journal of Cleaner Production, 2024, 451: 141913 DOI:10.1016/j.jclepro.2024.141913 ( 0) |
| [31] |
Machado D, Maistrenko O M, Andrejev S, et al. Polarization of microbial communities between competitive and cooperative metabolism[J]. Nature Ecology & Evolution, 2021, 5(2): 195-203 ( 0) |
2. University of Chinese Academy of Sciences, Beijing 100049, China;
3. Freshwater Fisheries Research Institute of Jiangsu Province, Nanjing 210017, China;
4. College of Tobacco Science and Engineering, Zhengzhou University of Light Industry, Zhengzhou 450002, China