 2026, Vol. 58


2. 中国科学院大学, 北京 100049;
3. 南京信息工程大学生态与应用气象学院, 南京 210044
在农业生态系统中,施肥作为一种主要的农田管理措施,可以改变土壤特性和微生物群落,影响微生物介导的土壤生物化学反应和生态系统功能[1]。长期施用无机化肥,可通过改变土壤中养分资源的可利用性,对土壤微生物群落多样性和组成产生显著影响。长期过量施用化肥甚至会导致环境污染和土壤退化,进而影响整个农业生态系统的健康和进程。采用有机肥替代化肥是化肥减施的重要抓手。有机肥能够提供丰富的有机质和氮、磷、钾等养分,促进土壤微生物活动和代谢,进而维持或促进生态系统服务功能[2]。无机化肥配施有机肥的平衡施肥模式在快速提升土壤肥力的同时,有效缓解了单施化肥给土壤质量和生态环境带来的危害,有利于实现农业的可持续发展。不同肥料添加可形成不同的微生物群落和功能性状[3]。全面了解不同施肥处理对土壤微生物群落结构和功能的影响,有助于保障农田生态系统的稳定。
细菌是最主要的土壤微生物类群之一,其组成和结构对土壤养分循环、生态功能发挥具有重要影响[4]。长期施肥引起的土壤养分状况变化会改变细菌对养分的需求[5],进而抑制或刺激细菌介导的土壤生物化学反应和生态系统功能。有研究表明,有机肥处理富集了携带碳、氮循环基因的变形菌门和浮霉菌门的相对丰度,显著促进了碳和氮的潜在转化和可利用性,而化学肥料施用显著提高了与甲烷氧化潜在过程相关的功能基因的丰度,但对土壤碳的降解和固定没有显著影响[6]。Ma等[7]在35年长期定位试验中发现,无机肥改变了黑土中氨氧化细菌(AOA和AOB)的丰度,有机肥对其干扰较小,并减少了硝态氮的积累。华北平原区是我国重要的粮食产区,潮土是该区域最主要的农业土壤之一。细菌群落多样性和功能是影响土壤健康和生态功能的重要因子[8]。开展不同施肥处理下潮土细菌生态功能及其影响因素的研究,对理解细菌群落驱动的土壤养分转化过程及促进农业生产的可持续发展至关重要。
与传统的基于16S rRNA的土壤高通量测序相比,宏基因组测序通过分析来自土壤样本的全部遗传物质,提高了细菌群落分析的分辨率。宏基因组测序还提供了更多基因和功能层面的信息,如Li[9]等利用鸟枪法宏基因组测序技术,基于相关基因家族的丰度和分布重建了氮循环途径,建立了环境变量、氮循环相关功能基因与作物产量的关系;Hu等[6]借助宏基因组学,分析了添加化肥和有机肥后土壤碳、氮循环功能基因丰度的变化,深入探讨了区域尺度上不同施肥制度对农业生态系统中土壤碳、氮循环代谢潜力的影响。可见,借助宏基因组学研究施用有机肥、无机肥对土壤细菌群落特征的影响,可为厘清土壤理化性质、细菌群落组成与功能基因之间的关系提供系统性认识。
基于以上,本研究依托中国科学院封丘农业生态实验站长期定位试验,选择4种长期施肥处理(不施肥、单施化肥、单施有机肥和有机肥配施化肥),通过土壤宏基因组测序分析,以阐明长期不同施肥措施下潮土细菌群落结构和功能的变化规律,明确土壤细菌介导的养分循环过程对不同施肥处理的响应,进而探索华北平原区潮土细菌群落结构和生态功能与土壤养分之间的关系,为通过不同施肥措施调控潮土细菌群落更好地服务农田生态系统提供理论依据。
1 材料与方法 1.1 试验地概况试验地位于中国科学院封丘农业生态实验站(35°00′N,114°24′E)。该区域属于典型的暖温带大陆性季风气候,年平均降水量和年平均温度分别为615 mm和13.9 ℃。供试土壤为轻壤质黄潮土,种植模式为小麦–玉米一年两熟轮作。长期施肥试验始于1989年,本研究选择4个处理,分别为:不施肥(CK)、单施化肥(NPK)、单施有机肥(OM)、1/2有机肥与1/2化肥(NPKM)配施。每个处理3次重复。供试化学肥料品种分别为尿素、过磷酸钙、硫酸钾。供试有机肥为小麦秸秆、油菜籽饼和棉籽饼以质量比100∶40∶45混合发酵两个月制成的粉末有机肥。试验年施肥量为:N 300 kg/hm2,P2O5 135 kg/hm2,K2O 300 kg/hm2。试验开始前土壤理化性质和详细施肥方案参见文献[10]。
1.2 样品采集与理化性质分析于2022年6月小麦收获季采集0~20 cm土层土壤样品,每个小区以“S”形多点取样,混匀装入自封袋。采集的土壤样品室内过筛(约2 mm),一部分保存于–80 ℃用于提取土壤DNA;另一部分风干、研磨、过筛后,用于测定土壤理化性质。土壤理化性质的测定参照《土壤农业化学分析方法》[11]。其中,土壤pH用pH计以土水质量比1∶5进行测定;土壤全碳(TC)用元素分析仪测定;土壤有机碳(SOC)用重铬酸钾氧化–外加热法测定;全氮(TN)用凯氏定氮法测定;硝态氮(NO3–-N)和铵态氮(NH4+-N)用流动分析仪测定;全磷(TP)和有效磷(AP)用钼锑抗比色法测定。
1.3 土壤DNA提取和宏基因组测序根据制造商的方案,使用FastDNA® SPIN Kit for Soil (MP Bio)试剂盒提取土壤总DNA。使用Qubit 3.0荧光仪和Agilent Bioanalyzer 2100系统评估DNA片段的质量和完整性。在Illumina HiSeq 2500 (PE 250)平台上构建基因组文库并进行测序(广东美格基因科技有限公司)。对于宏基因组原始数据,使用Trimmomatic v0.36进行质量控制,去除数据中低质量及含氮碱基的reads,保留高质量的reads,以得到高质量的clean data。将所有样本的reads合并,使用Megahit v1.1.2将高质量reads进行拼接组装,筛选≥500 bp的contigs作为组装结果[12]。使用N50 (将contig按照长度排序并加和后,加和值达到contig总长的50% 时的contig长度值)判断组装成的contig质量是否合格。本研究得到contig的平均N50为863 bp,接近所有样本contig的平均长度823 bp,说明contig长度分布均匀,适用于后续的基因注释和功能分析。为保证基因结构的完整性,减少假阳性结果,筛选长度超过800 bp的contigs[13],使用Prodigal v2.6.3将其翻译为编码蛋白质的ORF (open reading frame)。然后使用CD-HIT v4.8.1去除冗余,并以95% 的序列同一性为界限,对各样品及混合组装的ORF进行聚类,生成非冗余基因集。使用BWA v0.7.17将高质量reads比对至基因集,计算基因丰度值。
为获取物种注释信息,使用DIAMOND软件对非冗余基因集与从NCBI的NR数据库中抽提出的细菌序列进行比对,e-value≤10–5。LCA (least common ancestor)算法用于将序列注释到NCBI的物种分类树上,确保每个序列获得唯一且准确对应的物种分类信息。将LCA物种注释信息与基因丰度表结合起来,在门和属分类水平上创建丰度信息表,通过将注释为某一物种的所有基因的丰度值相加,得出该物种在某一处理中的丰度。使用DIAMOND软件对非冗余基因与各功能数据库(KEGG、CAZy、eggNOG)进行比对,筛选具有最高序列相似性的蛋白,从而得到功能注释信息。通过汇总KEGG数据库中KO条目所对应的基因丰度,计算各个功能类别的丰度。
1.4 数据分析使用R v4.3.0中的vegan包计算细菌α多样性指数并进行主坐标分析(Principal coordinate analysis,PCoA);使用ggplot2包绘制含95% 置信椭圆的PCoA图;使用microeco包进行细菌群落差异LefSe (LDA effect size)分析;使用linkET包进行细菌群落结构和生态功能与土壤理化性状间相关关系的Mantel检验。使用SPSS 26.0进行单因素方差分析,多重比较采用Duncan法,显著性水平为P<0.05。使用R v4.3.0和Adobe Illustrator 2023进行数据可视化。
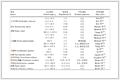
2 结果与分析 2.1 长期不同施肥处理对潮土理化性质的影响长期施肥改变了土壤的理化性质(表 1)。与CK处理相比,长期施肥显著提高了潮土的TC、TN、TP、SOC、NO3–-N和AP含量(P<0.05)。OM处理SOC含量增幅最大,为94.1%,其次为NPKM和NPK处理,分别较CK处理提高了80.3% 和35.8%。土壤TC、TN含量变化呈现出类似趋势。土壤TP、AP在NPKM处理下含量最高,与CK处理相比分别显著提高了0.7倍、23.6倍。NPK、NPKM和OM处理土壤pH均显著低于CK处理,长期施肥降低了潮土的pH。
|
表 1 不同处理下土壤理化性质 Table 1 Soil physicochemical properties under different treatments |
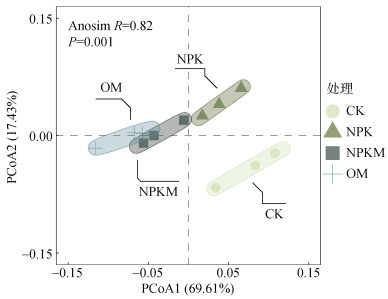
由表 2可知,NPK处理细菌群落Shannon指数显著高于CK处理(P<0.05),而NPKM和OM处理的Shannon指数与CK处理相比无显著变化(P>0.05)。Simpson指数在4个处理间无明显差异。与CK处理相比,NPK、NPKM和OM处理的丰富度指数Chao 1和ACE指数均显著提高。基于Bray-Curtis距离矩阵的主坐标分析(PCoA)表明,施肥与不施肥处理、施用化肥与施用有机肥处理土壤细菌群落在主坐标空间内均表现出明显的分离,而单施有机肥(OM)和有机肥配施化肥(NPKM)处理细菌群落则表现为聚集,不同施肥处理共同解释了87.04% 的细菌群落结构差异(图 1)。可见,长期施肥极显著地改变了潮土细菌群落结构(R=0.84,P=0.001)。
|
|
表 2 不同处理下土壤细菌群落α多样性指数 Table 2 α-diversity indices of soil bacterial communities under different treatments |
|
图 1 不同处理下土壤细菌群落主坐标分析 Fig. 1 PCoA of bacterial communities under different treatments |
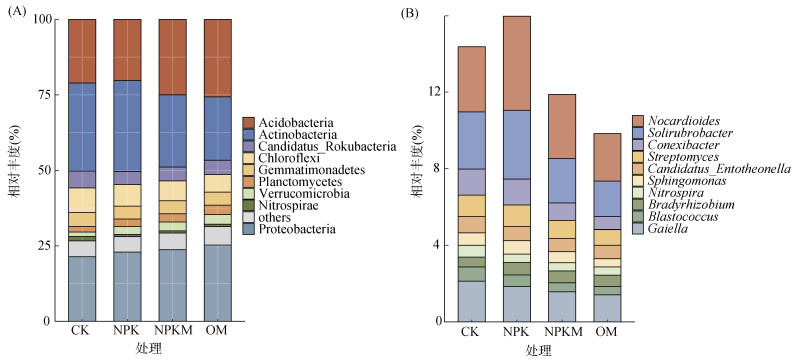
由图 2A可知,在门分类水平上,放线菌门(Actinobacteria)、酸杆菌门(Acidobacteria)、变形菌门(Proteobacteria)和绿弯菌门(Chloroflexi)为各处理中的优势细菌门,相对丰度分别为21.02%~30.1%、20.26%~25.64%、21.42%~25.28%、5.81%~8.2%。相较于CK和NPK处理,NPKM和OM处理降低了绿弯菌门的相对丰度,增加了酸杆菌门和变形菌门的相对丰度(P<0.05)。在属分类水平上,诺卡氏菌属(Nocardioides,2.48%~4.9%)、红杆菌属(Solirubrobacter,1.85%~3.59%)、孪生球菌属(Gaiella,1.41%~2.12%)在各处理中占据优势(图 2B)。诺卡氏菌属在OM处理中相对丰度最低,而在NPK处理中相对丰度最高,且与其他处理的差异达到显著性水平(P<0.05)。在NPK、NPKM和OM处理中,孪生球菌属的相对丰度分别较CK处理降低了14.3%、23.8% 和33.3%。
|
图 2 不同处理下门(A)和属(B)水平上土壤细菌群落组成 Fig. 2 Soil bacterial community compositions at phylum (A) and genus (B) levels urder different treatments |
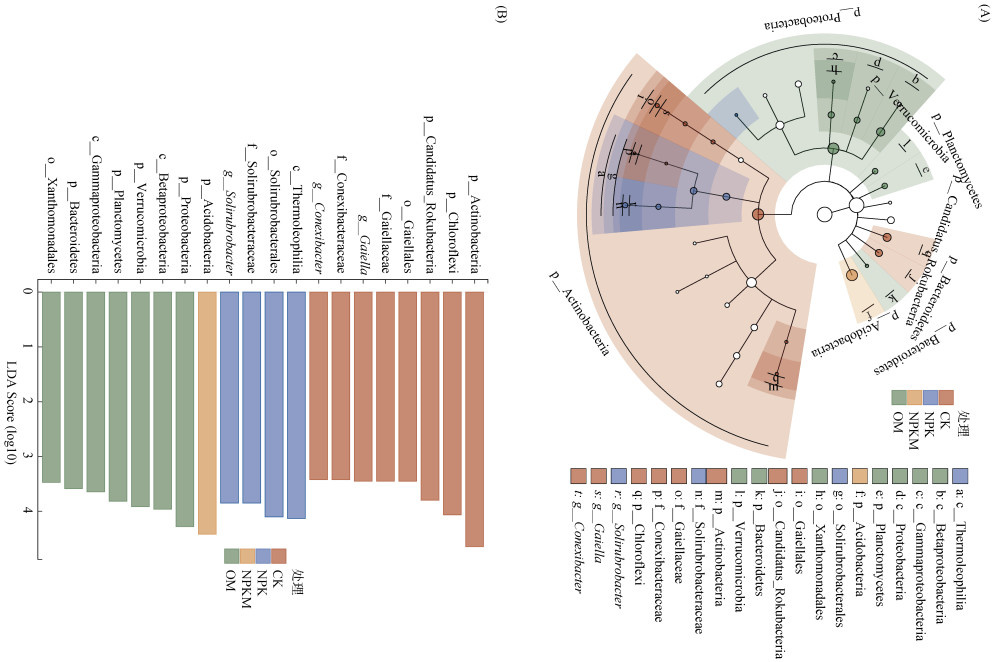
进一步使用LEfSe分析筛选在门和属水平上差异最显著的前20个细菌群落,以获得更多关于不同施肥处理细菌群落差异的信息(图 3)。LEfSe聚类树展示了4个处理间存在的显著差异菌群(图 3A)。线性判别分析(LDA)显示(图 3B),有6种差异显著的细菌类群影响力偏高(LDA>4),分别为CK处理的放线菌门(Actinobacteria)和绿弯菌门(Chloroflexi),NPK处理的嗜热油菌纲(Thermoleophilia)和土壤红杆菌目(Solirubrobacterales),NPKM处理的酸杆菌门(Acidobacteria)以及OM处理的变形菌门(Proteobacteria)。因此,不同施肥处理土壤中的核心细菌类群各不相同。
|
(图 3A为基于LEfSe分析的细菌群落差异,节点大小反映了该细菌类群在群落中的丰度,空心节点代表不同处理间的细菌类群没有差异,而其他颜色的节点表示这些细菌类群表现出显著差异;图 3B为不同处理之间存在差异的细菌类群) 图 3 不同处理下细菌类群的差异比较 Fig. 3 Differences of bacterial taxa under different treatments |
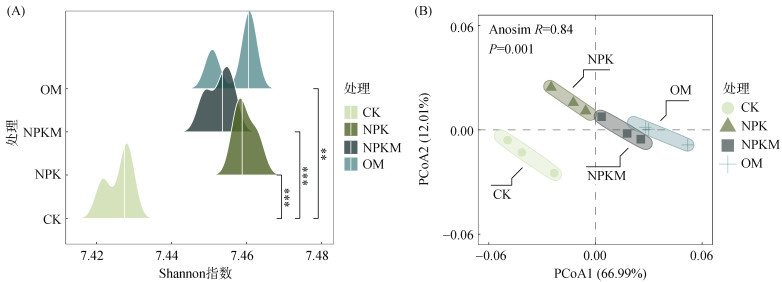
为了探究长期不同施肥处理对土壤细菌群落功能多样性的影响,对4个处理样本进行KEGG功能注释分析,结果表明,NPK、NPKM和OM处理细菌功能基因的Shannon指数与CK处理相比均显著增加(P<0.05,图 4A),长期施肥显著提高了细菌功能基因的α多样性。PCoA结果显示,CK处理与施肥处理的细菌功能基因组成存在显著差异(R=0.84,P=0.001,图 4B)。
|
(图中**、***分别表示在P<0.01、P<0.001水平上差异显著) 图 4 不同处理下细菌功能基因的α (A)和β(B)多样性 Fig. 4 Alpha (A) and beta (B) diversities of bacterial functional genes under different treatments |
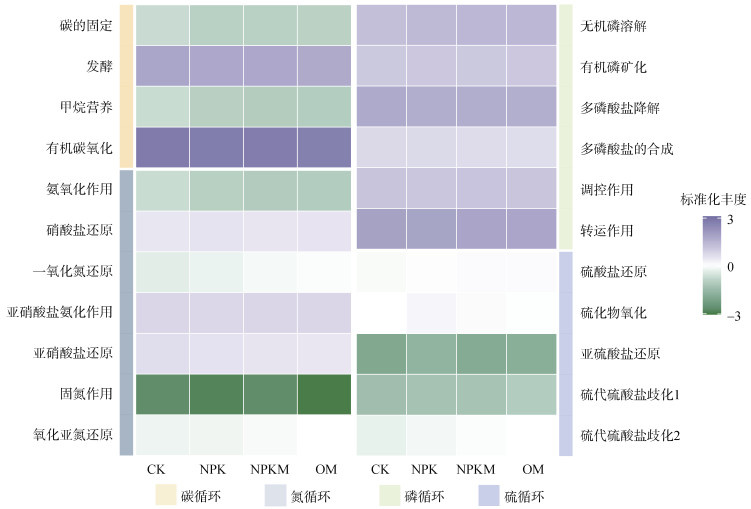
基于KEGG功能注释信息和已发表的文献资料信息,本研究构建了碳循环(137个KO)、氮循环(32个KO)、磷循环(53个KO)和硫循环(88个KO)功能基因集。基因丰度热图(图 5)显示,不同施肥处理下潮土细菌主要参与碳循环中的有机碳氧化和发酵过程、氮循环中的氨氧化和亚硝酸盐还原过程、磷循环中的磷转运和多磷酸盐降解过程、硫循环中的硫酸盐还原和硫化物氧化过程。长期施肥显著影响了碳循环过程,与CK处理相比,NPK、NPKM和OM处理中参与碳循环的功能基因丰度分别下降了2.2%、4.3% 和6.1% (P<0.05)。长期施肥引起功能基因丰度增加的关键过程包括硝酸盐还原过程、一氧化氮还原过程、氧化亚氮还原过程、无机磷溶解过程、硫酸盐还原过程和硫化物氧化过程。
|
图 5 不同施肥处理下碳、氮、磷、硫循环相关功能基因的丰度 Fig. 5 Abundance of functional genes related to C, N, P and S cycles under different fertilization treatments |
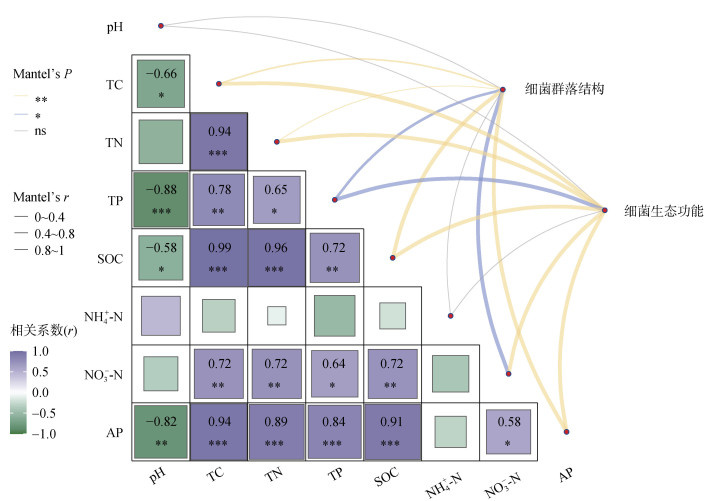
采用Mantel检验探究土壤细菌群落结构和生态功能与土壤理化性质间的关系(图 6),结果表明,细菌群落结构与SOC (r=0.83)、TN (r=0.79)、TC (r=0.77)、AP (r=0.61)呈极显著正相关(P=0.001);细菌生态功能与SOC (r=0.87)、TN (r=0.83)、TC (r=0.81)、AP (r=0.64)、NO3–-N (r=0.49) 呈极显著正相关(P=0.001)。细菌群落结构和生态功能与pH和NH4+-N均不存在相关关系。因此,土壤碳、氮、磷元素的供应是影响细菌群落结构和功能的重要因素。
|
(Mantel检验确定的相关系数的绝对值决定了曲线的宽度,矩形的大小和颜色梯度代表理化性质之间皮尔逊相关系数的大小。*、**、***分别表示在P<0.05、P<0.01、P<0.001水平上显著相关) 图 6 土壤细菌群落结构(顶部节点)和功能(底部节点)与理化性质的关系 Fig. 6 Relationships between structure (top node) and function (bottom node) of soil bacterial communities with physicochemical properties |
本研究结果显示,与不施肥(CK)和单施化肥(NPK)处理相比,单施有机肥(OM)和有机肥与化肥配施(NPKM)处理显著增加了土壤TC、TN、SOC、AP含量(表 1)。有研究表明,长期添加有机肥能够加速土壤有机质各组分的形成与积累,提高土壤养分的有效性,为作物生长提供长效的养分[14]。与其他施肥处理相比,有机肥配施化肥更有效地提升了土壤磷素水平,这与以往的研究结果保持一致[15]。施肥,尤其是施用有机肥会增加土壤有机氮库,从而显著增加土壤TN含量。而与不施肥处理相比,长期施用化肥和有机肥并未影响土壤NH4+-N含量。这可能与氮肥施入土壤后发生氨挥发有关。倪康等[16]在研究有机无机肥长期施用条件下小麦季土壤氨挥发损失时指出,施用化肥和有机肥均强烈影响了土壤的氨挥发。此外,作物在生长季对氮素的吸收以及潮土较强的硝化能力,可能是各处理NH4+-N含量始终保持在较低水平的原因。长期施用化肥和有机肥均降低了土壤的pH,长期施用化肥导致土壤盐基离子流失,土壤的碱缓冲能力下降,导致土壤pH下降;而施用有机肥降低土壤pH,则可能与有机酸的产生有关[17]。由于本研究提供的潮土为弱碱性土壤,具有一定的酸缓冲能力,导致长期施肥造成的土壤酸化并不严重。
施用化肥或有机物料可有效增加土壤微生物的丰富度,充足的养分资源为微生物提供了良好的生存环境,刺激了微生物的生长与繁殖[18]。但有机养分的输入可能导致部分优势菌群快速繁殖占据栖息地,其他类群获取营养的难度增加,从而导致竞争优势较低类群的灭绝[19]。因此,本研究中,有机肥处理下土壤细菌群落的多样性相比于化肥处理有所下降(表 2)。pH是影响细菌群落多样性和结构的重要因素,尤其是在酸性或碱性(pH<6或>8)土壤中[20]。本研究中,供试潮土pH的变化范围在7.2~7.8 (表 1),处于土壤中大多数微生物活动的最适pH范围,因此pH可能并不是影响潮土细菌群落多样性和结构的主要因素。Wei等[21]通过一项长达35年的施用有机肥与化肥的试验,从SOC、TN、IN(无机氮)、TP、AK(速效钾)和pH六个环境变量中分析得出,TN和SOC是影响微生物群落结构的关键驱动因素。本研究同样发现,SOC、TN、TC、AP是影响土壤细菌群落结构的关键因素(图 6)。有机肥中易分解的碳源通过提供稳定的能量底物,刺激细菌的生长和活性,成为决定不同施肥方式对土壤微生物群落结构影响的最主要因素。同时,长期施肥通过增加土壤养分含量(如SOC、TN、AP),可以显著改变细菌群落的生态网络,促进与养分循环相关的细菌类群的富集[22]。由此可见,这些外源养分打破了土壤原有的生态平衡,在调控潮土细菌群落结构中发挥了积极作用。
本研究结果显示,各施肥处理土壤细菌群落优势菌门均为变形菌门(Proteobacteria)、酸杆菌门(Acidobacteriota)、放线菌门(Actinobacteria)和绿弯菌门(Chloroflexi),与Li等[23]研究潮土细菌群落组成的结果一致。相比于不施肥和单施化肥处理,施用有机肥后土壤中酸杆菌门、变形菌门的相对丰度得到提升,而绿弯菌门的生长受到限制。酸杆菌门细菌可以参与土壤养分循环过程,可通过分解有机肥中的有机物稳定土壤有机质。变形菌门细菌属于富营养型细菌,施肥尤其是施用有机肥带来的养分输入会促进该类细菌群落的生长。LEfSe分析表明,施用有机肥处理酸杆菌门和变形菌门丰度与其他处理差异显著(图 3),进一步说明二者在有机物分解和腐殖质形成过程中起着关键作用。绿弯菌门细菌属于贫营养型厌氧菌,能够在养分匮乏的环境中生存和繁衍,并且可以有效地摄取和利用有限的养分资源,因此,施用有机肥提供的富营养环境可能不适宜该类菌群的生长。嗜热油菌纲(Thermoleophilia)和红杆菌目(Solirubrobacterales)在单施化肥处理中表现出富集优势,二者可分别介导氮循环中的反硝化过程和同化过程[24-25]。因此,长期施肥不仅可以直接提供养分,还可能通过调控微生物群落的丰度,间接影响土壤养分的转化和利用效率。
本研究发现,不同施肥处理导致细菌群落功能发生了变化。相比于不施肥处理,长期施肥处理土壤细菌功能基因更为丰富和多样(图 4),SOC、TN、TC、AP、NO3–-N成为影响细菌群落功能的重要因素(图 6)。说明施肥尤其是施用有机肥后,土壤化学性质得到改善,从而有利于微生物的生长和功能基因的表达[6]。尽管有机培肥提高了携带碳循环功能基因的变形菌门的相对丰度,但施用有机肥后总的碳循环功能基因丰度下降(图 5),这可能是因为碳循环相关基因在不同的碳循环过程中发挥着不同的作用。有研究显示,施用有机肥能够降低分解纤维素和木质素相关功能基因的相对丰度[26]。有机物料在发酵过程中会分解转化为小分子碳源,纤维素等难降解有机物质的减少,导致分解该类大分子碳源的功能基因的相对丰度降低[27]。在易分解碳含量高且营养充足的环境下,微生物更倾向于利用易分解的碳源,而对难分解碳源的分解活动减少,这在一定程度上减缓了碳的分解过程[28],促进了土壤有机质的积累。施用有机肥影响了细菌参与氮、磷、硫循环的关键过程(图 5)。具体来说,添加有机物料的有机肥处理和有机肥与化肥配施处理均显著提高了与反硝化过程有关的功能基因丰度,这与先前的研究结果相吻合[29]。添加外源有机碳促进了土壤反硝化细菌的生长,反硝化过程的加速响应于长期的养分输入。这抑制了硝态氮在土壤中的积累,同时也降低了通过径流和淋溶造成氮素损失的可能性。有机物料的添加促进了无机磷的溶解,土壤微生物通过携带ppa、gcd和pqqC基因增强了稳定态磷向活性磷的转化,丰富了磷的生物有效性[30]。与不施肥处理相比,长期施肥还增强了细菌介导硫循环中的硫化物氧化、硫酸盐还原和亚硫酸盐还原过程。单施化肥处理下与硫化物氧化和亚硫酸盐还原过程相关基因丰度的增幅均高于有机肥处理,这可能是因为化肥提供的速效硫(硫酸钾)直接刺激了硫氧化菌和硫酸盐还原菌的生长,进而促进了相关基因的表达。Lin等[31]发现,有机肥可提供更多的易分解有机碳,这些碳源可优先被一些优势微生物利用,导致部分硫循环相关细菌的竞争压力增加,进而导致硫循环相关功能基因丰度增幅低于单施化肥处理。综上,长期施肥尤其是施用有机肥通过增强或抑制潮土细菌的功能潜力,影响了华北平原区农田生态系统的土壤养分转化过程。
4 结论长期施用有机肥(NPKM、OM)能够增加土壤养分含量,提升土壤肥力,并改变潮土细菌群落结构。添加有机物料增加了参与养分循环过程的酸杆菌门和变形菌门的丰度,有利于土壤养分的积累。SOC、TN、TC、AP是影响潮土细菌群落结构和功能的重要因素。长期施用有机肥在塑造土壤细菌群落结构和功能基因(碳、氮、磷、硫循环)中发挥了关键作用。本研究结果为潮土农田生态系统养分转化和提升提供了理论依据和数据支撑。
| [1] |
Ofori P, Asamoah G, Amoah B, et al. Combined application of poultry litter biochar and NPK fertilizer improves cabbage yield and soil chemical properties[J]. Open Agriculture, 2021, 6(1): 356-368 DOI:10.1515/opag-2021-0217 (  0) |
| [2] |
石广萍, 栾璐, 曾昭阳, 等. 不同施肥年限对红壤细菌多样性及群落结构演替的影响[J]. 土壤, 2024, 56(1): 73-81 DOI:10.13758/j.cnki.tr.2024.01.010 ( 0) |
| [3] |
苏先楚, 叶桂萍, 邓米林, 等. 长期施用粪肥对红壤固氮菌多样性和群落组成的影响[J]. 土壤, 2024, 56(5): 975-981 DOI:10.13758/j.cnki.tr.2024.05.007 ( 0) |
| [4] |
Dang P F, Li C F, Lu C, et al. Effect of fertilizer management on the soil bacterial community in agroecosystems across the globe[J]. Agriculture, Ecosystems & Environment, 2022, 326: 107795 ( 0) |
| [5] |
Schleuss P M, Widdig M, Heintz-Buschart A, et al. Stoichiometric controls of soil carbon and nitrogen cycling after long-term nitrogen and phosphorus addition in a mesic grassland in South Africa[J]. Soil Biology and Biochemistry, 2019, 135: 294-303 DOI:10.1016/j.soilbio.2019.05.018 ( 0) |
| [6] |
Hu X J, Gu H D, Liu J J, et al. Metagenomics reveals divergent functional profiles of soil carbon and nitrogen cycling under long-term addition of chemical and organic fertilizers in the black soil region[J]. Geoderma, 2022, 418: 115846 DOI:10.1016/j.geoderma.2022.115846 ( 0) |
| [7] |
Ma M C, Zhao Y B, Jiang X, et al. Fertilization altered co-occurrence patterns and microbial assembly process of ammonia-oxidizing microorganisms[J]. Scientific Reports, 2023, 13: 8234 DOI:10.1038/s41598-022-26293-w ( 0) |
| [8] |
练金山, 王慧颖, 徐明岗, 等. 长期施用有机肥潮土细菌的多样性及功能预测[J]. 植物营养与肥料学报, 2021, 27(12): 2073-2082 ( 0) |
| [9] |
Li R C, Ren C Y, Wu L K, et al. Fertilizing-induced alterations of microbial functional profiles in soil nitrogen cycling closely associate with crop yield[J]. Environmental Research, 2023, 231(Pt 2): 116194 ( 0) |
| [10] |
杨娇, 信秀丽, 钟新月, 等. 长期不同施肥对潮土磷素吸附特征的影响[J]. 土壤学报, 2023, 60(4): 1047-1057 ( 0) |
| [11] |
鲁如坤. 土壤农业化学分析方法[M].
中国农业科学技术出版社, 北京, 2000
( 0) |
| [12] |
Wang C, Yu Q Y, Ji N N, et al. Bacterial genome size and gene functional diversity negatively correlate with taxonomic diversity along a pH gradient[J]. Nature Communications, 2023, 14: 7437 DOI:10.1038/s41467-023-43297-w ( 0) |
| [13] |
Zhou G X, Chen L, Zhang C Z, et al. Bacteria-virus interactions are more crucial in soil organic carbon storage than iron protection in biochar-amended paddy soils[J]. Environmental Science & Technology, 2023, 57(48): 19713-19722 ( 0) |
| [14] |
吴其聪, 张丛志, 张佳宝, 等. 不同施肥及秸秆还田对潮土有机质及其组分的影响[J]. 土壤, 2015, 47(6): 1034-1039 DOI:10.13758/j.cnki.tr.2015.06.004 ( 0) |
| [15] |
王琼, 展晓莹, 张淑香, 等. 长期有机无机肥配施提高黑土磷含量和活化系数[J]. 植物营养与肥料学报, 2018, 24(6): 1679-1688 ( 0) |
| [16] |
倪康, 丁维新, 蔡祖聪. 有机无机肥长期定位试验土壤小麦季氨挥发损失及其影响因素研究[J]. 农业环境科学学报, 2009, 28(12): 2614-2622 ( 0) |
| [17] |
Chen X D, Opoku-Kwanowaa Y, Li J M, et al. Application of organic wastes to primary saline-alkali soil in Northeast China: Effects on soil available nutrients and salt ions[J]. Communications in Soil Science and Plant Analysis, 2020, 51(9): 1238-1252 DOI:10.1080/00103624.2020.1763394 ( 0) |
| [18] |
邢鹏飞, 武晓森, 高圣超, 等. 不同施肥处理对玉米-小麦轮作土壤微生物群落功能多样性的影响[J]. 微生物学杂志, 2016, 36(1): 22-29 ( 0) |
| [19] |
Jiang Y J, Liu M Q, Zhang J B, et al. Nematode grazing promotes bacterial community dynamics in soil at the aggregate level[J]. The ISME Journal, 2017, 11(12): 2705-2717 DOI:10.1038/ismej.2017.120 ( 0) |
| [20] |
Fierer N, Jackson R B. The diversity and biogeography of soil bacterial communities[J]. Proceedings of the National Academy of Sciences of the United States of America, 2006, 103(3): 626-631 ( 0) |
| [21] |
Wei M, Hu G Q, Wang H, et al. 35 years of manure and chemical fertilizer application alters soil microbial community composition in a Fluvo-aquic soil in Northern China[J]. European Journal of Soil Biology, 2017, 82: 27-34 DOI:10.1016/j.ejsobi.2017.08.002 ( 0) |
| [22] |
刘明凤, 周桂香, 张佳宝, 等. 长期秸秆掩埋配施氮肥对土壤细菌群落特征的影响[J]. 土壤学报, 2024, 61(5): 1374-1385 ( 0) |
| [23] |
Li F, Chen L, Zhang J B, et al. Bacterial community structure after long-term organic and inorganic fertilization reveals important associations between soil nutrients and specific taxa involved in nutrient transformations[J]. Frontiers in Microbiology, 2017, 8: 187 ( 0) |
| [24] |
Chen J, Li J J, Shen W J, et al. The structure and species co-occurrence networks of soil denitrifying bacterial communities differ between a coniferous and a broadleaved forests[J]. Microorganisms, 2019, 7(9): 361 DOI:10.3390/microorganisms7090361 ( 0) |
| [25] |
Jiang Z M, Mou T, Sun Y, et al. Environmental distribution and genomic characteristics of Solirubrobacter, with proposal of two novel species[J]. Frontiers in Microbiology, 2023, 14: 1267771 DOI:10.3389/fmicb.2023.1267771 ( 0) |
| [26] |
方海瑞. 不同施肥措施对土壤微生物群落及生态功能的影响[D]. 哈尔滨: 黑龙江大学, 2024.
( 0) |
| [27] |
Ma Q X, Wen Y, Wang D Y, et al. Farmyard manure applications stimulate soil carbon and nitrogen cycling by boosting microbial biomass rather than changing its community composition[J]. Soil Biology and Biochemistry, 2020, 144: 107760 DOI:10.1016/j.soilbio.2020.107760 ( 0) |
| [28] |
Wang X Y, Bian Q, Jiang Y J, et al. Organic amendments drive shifts in microbial community structure and keystone taxa which increase C mineralization across aggregate size classes[J]. Soil Biology and Biochemistry, 2021, 153: 108062 DOI:10.1016/j.soilbio.2020.108062 ( 0) |
| [29] |
Wu D, Senbayram M, Well R, et al. Nitrification inhibitors mitigate N2O emissions more effectively under straw-induced conditions favoring denitrification[J]. Soil Biology and Biochemistry, 2017, 104: 197-207 DOI:10.1016/j.soilbio.2016.10.022 ( 0) |
| [30] |
Hu X J, Gu H D, Liu J J, et al. Metagenomic strategies uncover the soil bioavailable phosphorus improved by organic fertilization in Mollisols[J]. Agriculture, Ecosystems & Environment, 2023, 349: 108462 ( 0) |
| [31] |
Lin Y X, Ye G P, Kuzyakov Y, et al. Long-term manure application increases soil organic matter and aggregation, and alters microbial community structure and keystone taxa[J]. Soil Biology and Biochemistry, 2019, 134: 187-196 DOI:10.1016/j.soilbio.2019.03.030 ( 0) |
2. University of Chinese Academy of Sciences, Beijing 100049, China;
3. School of Ecology and Applied Meteorology, Nanjing University of Information Science and Technology, Nanjing 210044, China