 2026, Vol. 58


土壤酸化主要发生在我国南方热带和亚热带地区,以红壤和黄壤酸化较为严重,是土壤质量退化的主要形式之一,严重制约了区域农业的可持续发展[1]。据统计,1980—2000年我国农田土壤酸化显著,土壤pH下降了0.13~0.80个单位,平均下降0.5个单位[2]。不同地区均呈现一定程度的酸化态势。江西省余江县土壤pH由1982年的5.66降低至2007年的4.74,酸化显著[3];西南丘陵地区紫色土发生一定程度的酸化[4];河南省和山东省等北方地区耕地酸性土壤面积增加[5-6]。土壤酸化会产生一系列的负面影响,如植物根系生长受抑、土壤微生物多样性降低、土壤结构板结恶化、土壤重金属有效性增加等[7],过度酸化甚至加剧铝毒对作物根系生长的抑制[8],导致作物减产,从而威胁粮食安全[9-10]。因此,采取有效措施缓解土壤酸化刻不容缓。
除酸害和铝毒外,土壤酸化引起的土壤结构不良、微生物多样性降低均会降低土壤肥力,从而导致作物生长发育不良[11]。在高温多雨的南方地区,土壤结构不良,团聚体稳定性差,还会加剧水土流失和养分损失的风险[12]。土壤微生物在养分转化、储存和释放,有机质分解和污染物降解等生物化学过程中均发挥着举足轻重的作用[13]。良好的土壤微生物群落结构和丰富的多样性不仅能促进养分循环转化,还能改善土壤结构,为作物生长发育提供适宜的土壤环境[14]。而土壤酸化严重影响土壤微生物多样性,降低微生物功能的发挥和利用[15]。因此,通过缓解土壤酸化,改善微生物群落结构和多样性,对于南方酸性土壤改良具有重大意义。
熟石灰是一种传统的酸性土壤改良剂,其主要成分为氢氧化钙(Ca(OH)2),可快速显著地降低土壤酸度。但熟石灰改良土壤酸度的同时,刺激土壤硝化作用,又易导致土壤返酸[16],且由于缺乏有机质的供给,其长期施用可能会造成土壤板结[17],增加水土流失的风险。木质素磺酸盐主要来源于亚硫酸盐制浆过程的工业副产物,由苯丙烷链接枝亲水性磺酸基团和活性甲氧基苯酚基团组成[18],成本较低,是一种生物可降解的环境友好型材料,有利于提高土壤的肥力和养分[19]。聚氨基酸是由一种或多种氨基酸以酰胺键连接而成的聚合物,具有合成工艺成熟、原料来源广泛且价格低廉的优势,已在医疗、化妆品和食品等工农业生产领域得到了广泛的应用[20],也属于生物可降解性的无毒环境友好型材料。其中,聚天冬氨酸(PASP)和聚谷氨酸(γ-PGA)是农业生产中最常用的两种聚氨基酸,可分别作为氮肥增效剂和保水剂改良土壤理化性状和肥力[21-22]。
基于以上,本研究以传统无机改良剂氢氧化钙(Ca(OH)2)作为对照,采用盆栽试验,探究3种钙基高分子调理剂(木质素磺酸钙、聚天冬氨酸钙和聚谷氨酸钙)对酸性土壤团聚体结构、细菌群落多样性的改良效果,以及对植物生长及根系发育的影响,为酸性土壤农业可持续发展提供一定的理论依据和技术支撑。
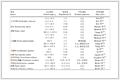
1 材料与方法 1.1 供试土壤与调理剂供试酸性土壤采自浙江省台州市黄岩区葡萄果园(28°62′N,121°24′E)。该区域属于典型的亚热带湿润季风气候,年平均温度和年平均降水量分别为17.9 ℃和1 264 mm。供试土壤系统分类名称为湿润铁铝土,美国土壤分类系统名称为老成土(Ultisol),采用五点取样法(分别取自中心点和四个对角线中点)取自果园土壤表层(0~20 cm)。为了尽量减少对土壤结构的破坏,新鲜土壤样品采用硬塑料容器储存并运输,之后在黑暗、通风处风干,剔除杂物和植物残体后,研磨过2 mm筛,充分混合均匀备用。土壤基础理化性质见表 1。
|
表 1 供试土壤基础理化性质 Table 1 Basic physicochemical properties of tested soil |
本研究选用木质素磺酸钙(CaLS)、聚天冬氨酸钙(PASP-Ca)和聚谷氨酸钙(γ-PGA-Ca)作为新型钙基高分子有机–无机土壤调理剂进行试验,采用氢氧化钙(Ca(OH)2)作为传统的无机调理剂进行对比。其中,木质素磺酸钙和原料聚谷氨酸(钠)购于上海阿拉丁生化科技股份有限公司,原料聚天冬氨酸(钾)购于上海麦克林生化科技有限公司,氢氧化钙(Ca(OH)2)购于国药集团化学试剂北京有限公司。强酸型阳离子交换树脂由上海阿拉丁生化科技股份有限公司生产,其结构为含磺酸基团的苯乙烯–二乙烯基苯(ST-DVB)共聚物。其他化学药剂(分析纯)均购自北京国药集团化学试剂北京有限公司,使用前未经任何预处理。
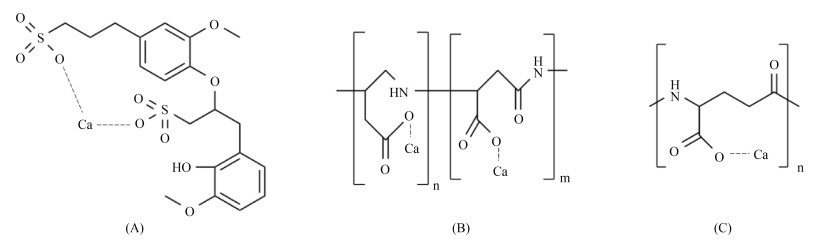
由于市场出售的聚天冬氨酸和聚谷氨酸产品均以钾盐或钠盐的形式存在,为了得到钙盐形式的聚天冬氨酸钙和聚谷氨酸钙,本研究采用以下方法自行制备。首先,用过量的氯化钙溶液通过阳离子交换树脂(钠型),得到钙离子吸附的阳离子交换树脂(钙型阳离子交换树脂);再用过量去离子水洗脱去除游离态氯化钙,将原料聚天冬氨酸钾(PASP-K)和聚谷氨酸钠(γ-PGA-Na)通过钙型阳离子交换树脂柱,得到聚天冬氨酸钙和聚谷氨酸钙水溶液;之后经过旋蒸和冷冻干燥,得到固态聚天冬氨酸钙(PASP-Ca)和聚谷氨酸钙(γ-PGA-Ca)粉末[23]。供试木质素磺酸钙、聚天冬氨酸钙和聚谷氨酸钙的分子结构式见图 1,相应水溶液pH以及钙、镁、钾、钠、铝、氮和磷含量见表 2。
|
图 1 木质素磺酸钙(A)、聚天冬氨酸钙(B)和聚谷氨酸钙(C)的分子结构式 Fig. 1 Molecular structures of CaLS (A), PASP-Ca (B) and γ-PGA-Ca (C) |
|
|
表 2 供试土壤调理剂的钙、镁、钾、钠和铝含量及水溶液pH Table 2 Contents of calcium, magnesium, potassium, sodium and aluminum in amendments tested and pH values of their aqueous solutions |
土壤培养试验使用花盆高13 cm、上底17 cm、下底12 cm。为了比较钙基高分子调理剂和传统熟石灰对土壤结构稳定性、细菌群落多样性和植物根系生长的提升效果,需要用Ca(OH)2将不加调理剂的土壤pH调节至与调理剂处理同一水平(由于不同调理剂对酸性土壤pH的提高效果存在差异,用Ca(OH)2调节pH至与聚天冬氨酸钙处理(pH最高)一致)。试验设置5个处理:①CK:不添加任何调理剂;②Ca(OH)2:添加氢氧化钙,添加量为1.1 g/kg;③CaLS:添加木质素磺酸钙,添加量为5 g/kg;④PASP-Ca:添加聚天冬氨酸钙,添加量为5 g/kg;⑤γ-PGA-Ca:添加聚谷氨酸钙,添加量为5 g/kg。每个处理设置3个重复。调理剂添加量均以风干土质量为基准,添加时与风干土壤(1 500 g)充分混合均匀后装盆,并添加去离子水至土壤田间持水量的70%,之后用保鲜膜封口(在顶端扎数个1 mm小孔以保持空气交换),置于25 ℃恒温培养箱中黑暗培养7 d。培养期间,每3 d通过称重法添加去离子水,以保持土壤含水量基本恒定。培养结束后,各处理土壤分为3部分:一部分用于测定土壤基础理化性质和团聚体结构;一部分冷冻用于测定土壤细菌群落结构多样性;剩余部分用于后续植物盆栽试验。
1.3 植物盆栽试验在正式种植植物前,向上述培养后的土壤中施入氮、磷、钾底肥,其中尿素添加量为N 150 mg/kg,过磷酸钙添加量为P2O5 100 mg/kg,硫酸钾添加量为K2O 100 mg/kg。各肥料均为分析纯,均购于北京国药集团化学试剂北京有限公司。
植物盆栽试验在中国农业大学西校区温室内进行。供试作物为小白菜,每盆均匀播种7~10粒,之后覆薄土(约2 cm),并用去离子水湿润,在小白菜长至四叶一心时,每盆保留长势一致的菜苗3株。小白菜在发芽期需水量不高,但要求土壤保持湿润,因此在播种前需用去离子水浇透土壤。在生长旺盛期,叶片面积大,蒸腾量大,光合作用强,需要每2~3 d通过称重法补水一次,使土壤湿度保持在田间最大持水量的70% 左右。收获后,将小白菜及其根系完整取出,测定整株小白菜(包括地上部和根系)的生物量。
1.4 测定项目与方法土壤pH采用pH计(pHS-3E,上海雷磁)测定。土壤交换性酸采用氯化钾交换–中和滴定法测定:称取5.0 g风干土置于漏斗滤纸中,用1 mol/L氯化钾溶液淋洗至250 mL容量瓶中,定容。其中取100 mL待测液用标准碱液(0.025 mol/L NaOH) 滴定至pH 7.8,经过计算得出交换性总酸含量(mmol(+)/kg);另取100 mL待测液先加过量的氟化钠溶液来充分络合Al3+,随后用标准碱液(0.025 mol/L NaOH) 滴定至pH 7.8,经过计算得出交换性H+含量(mmol(+)/kg);交换性Al3+含量(mmol(+)/kg)由交换性总酸与交换性H+含量的差值得到。土壤全氮和有机碳采用碳氮元素分析仪(Elementar,德国)测定。土壤有效磷采用钼锑抗比色法测定。土壤交换性盐基离子(Ca2+、Mg2+、K+、Na+)通过乙酸铵交换法浸提,采用原子吸收–火焰分光光度计(Z-2000,Hitachi,日本)测定。阳离子交换量(CEC)为交换性盐基离子(Ca2+、Mg2+、K+、Na+)含量与土壤交换性酸(Al3+和H+)含量的总和。土壤铵态氮和硝态氮的测定:将土样与氯化钾溶液(1.0 mol/L)按照m土∶V液=1∶20比例混合,于恒温振荡机中振荡1 h,上清液过0.45 μm滤膜后采用连续流动分析仪(AAS;San++,Skalar,荷兰)测定。
采用湿筛法测定土壤水稳性团聚体[24]。具体方法如下:首先,取50 g风干土置于湿筛团聚体分析仪的套筛顶部(套筛孔径从上到下依次为1、0.25、0.053 mm),沿套筛桶壁缓慢加入去离子水,直至刚好没过土样,浸泡5 min;再垂直上下振动套筛10 min,振幅为3 cm,频率为30次/min,振荡过程中始终保持土样完全浸没在水中;振荡结束后,将套筛从套筛桶中慢慢取出,静置待稍干,将1、0.25、0.053 mm筛上团聚体用去离子水转移至已称重的干燥铝盒中,同时用虹吸法移除套筛桶上层残留水,将 < 0.053 mm的团聚体洗入铝盒中。以上各组分在鼓风干燥机中105 ℃烘干48 h至恒重,称量各粒级的质量(精确到0.01 g),从而获得 > 1、0.25~1、0.053~0.25、< 0.053 mm四个粒级水稳性团聚体的含量及其比例。
土壤水稳性团聚体平均重量直径(MWD)和 > 0.25 mm水稳性团聚体比例(WSA)的计算公式如下:
| $ \mathrm{M}\mathrm{W}\mathrm{D}\left(\mathrm{m}\mathrm{m}\right)= = \mathop \sum \limits_{i = 1}^n {X_i}{W_i} $ | (1) |
| $ {\text{WSA}}\left( {\text{% }} \right) = \mathop \sum \limits_{i = 1}^2 {W_i} \times 100 $ | (2) |
式中:Wi为第i粒级团聚体质量所占百分比;n为粒级分级数量,本研究为4个粒级,依次为 > 1、0.25~1、0.053~0.25、< 0.053 mm;Xi为第i级团聚体粒径范围平均值,本研究分别取x1=1.500 mm,x2=0.625 mm,x3=0.152 mm,x4=0.027 mm。
土壤细菌群落结构分析:采用DNA试剂盒提取土壤细菌的总DNA,然后将土壤细菌的DNA运输至上海美吉生物医药科技有限公司,在Illumina MiSeq平台进行高通量测序和分析。
小白菜叶片叶绿素相对含量(SPAD值)测定:收获时,每盆选择长势一致的3个叶片,采用便携式叶绿素仪(SPAD-502plus)进行测定。株高和叶面积测定:每盆选取长势一致的小白菜,用直尺对小白菜株高进行测量,同时测量叶长、叶宽以及叶片面积。生物量测定:收获后的小白菜洗净、晾干后,将整株小白菜(包括地上部和根系)放置于烘箱先105 ℃烘约2 h,再调至75 ℃烘至恒重,测定小白菜生物量。
小白菜根系指标测定:从根基处剪断小白菜,采用根系扫描仪(型号Epson Expression 11000XL)扫描根系,通过WinRHIZO软件分析计算小白菜根系根长、根平均直径、根尖数、根表面积以及根体积等根系生长参数。
1.5 数据处理与统计分析采用Excel 2016对数据进行整理,运用SPSS 21.0软件进行统计分析,不同处理的差异采用单因素方差分析和Duncan新复极差法检验。点线图和柱状图由Origin 8.0软件绘制。文中数据均采用平均值±标准误(n=3)表示。
2 结果与分析 2.1 不同调理剂对土壤酸度和养分的影响土壤培养试验结束后,不同调理剂添加对土壤酸度(土壤pH、交换性酸)和养分(交换性Ca2+、铵态氮、硝态氮、全氮和有机碳)有显著不同的影响(表 3)。相比CK处理,其他不同调理剂处理均不同程度地显著提高了土壤pH(P < 0.05),其中以Ca(OH)2和PASP-Ca处理的提高幅度(约1.33~1.36个pH单位)最大,其次是CaLS和γ-PGA-Ca处理,分别提高了1.13个和0.79个pH单位。另外,相比CK处理,PASP-Ca和Ca(OH)2处理对土壤交换性Al3+含量的降低幅度(76.4%~ 79.1%)最大,其次是γ-PGA-Ca和CaLS处理,分别降低了68.7% 和31.1%。
|
|
表 3 不同调理剂添加对土壤酸度和养分的影响 Table 3 Soil acidity and nutrients under different amendments |
土壤铵态氮和硝态氮属于速效氮,易于被植物根系直接吸收和利用,供作物生长发育[25]。相比CK处理,PASP-Ca和γ-PGA-Ca处理均显著提高了土壤铵态氮、硝态氮和全氮含量(P < 0.05),其中PASP-Ca处理土壤铵态氮和硝态氮含量最高(表 3),表明无论是PASP-Ca还是γ-PGA-Ca均能显著提高土壤肥力,其中以PASP-Ca的效果最佳。此外,相比CK处理,PASP-Ca和γ-PGA-Ca添加均可显著提高土壤有机碳、交换性Ca2+含量,原因是这两种调理剂本身含有大量的碳和钙元素,可以快速补充至酸性土壤中。综上所述,钙基高分子调理剂添加显著促进了土壤全氮、有机碳、交换性Ca2+、铵态氮、硝态氮含量的提高,土壤肥力得到大幅提升,有利于作物生长发育。
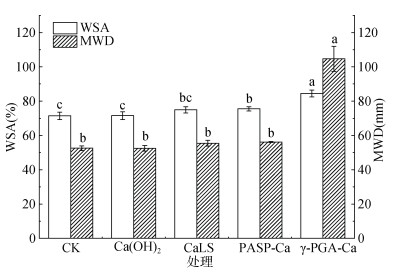
2.2 不同调理剂对土壤团聚体分布及稳定性影响> 0.25 mm水稳性团聚体比例(WSA)和水稳性团聚体平均重量直径(MWD)通常用来表征土壤团聚体结构的稳定性,其数值越大,土壤团聚体稳定性越强[26]。从图 2可以看出,CK、Ca(OH)2、CaLS、PASP-Ca和γ-PGA-Ca处理土壤WSA分别为71.5%、71.6%、74.9%、75.6% 和84.5%,MWD分别为52.6、52.5、55.5、56.2 mm和104.7 mm,说明无论是WSA还是MWD,不同调理剂处理排序均为:γ-PGA-Ca > PASP-Ca > CaLS > Ca(OH)2≈CK,其中γ-PGA-Ca处理的WSA和MWD显著高于其他处理(P < 0.05),表明添加γ-PGA-Ca不仅明显提高了水稳定性团聚体数量,还显著增强了团聚体稳定性。但添加PASP-Ca和CaLS对WSA和MWD的提高效果并不显著,这可能是因为γ-PGA-Ca的平均分子量远大于PASP-Ca和CaLS,且其本身黏度也较高[16],可以作为胶结剂黏结大量土壤细小颗粒,形成较大团聚体,而CaLS和PASP-Ca黏结作用较弱,团聚效果不显著。
|
(图柱上方不同小写字母表示同一指标不同处理间差异显著(P < 0.05),下同) 图 2 不同调理剂对土壤水稳定性团聚体比例及稳定性的影响 Fig. 2 Effects of different amendments on proportions and stability of soil water-stable aggregates |
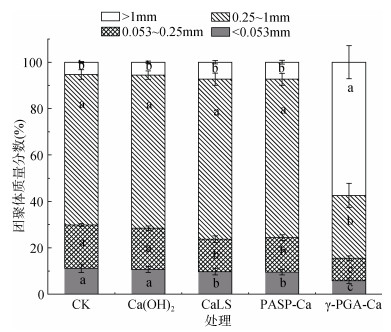
从图 3可以看出,γ-PGA-Ca的添加显著增加了粗大团聚体(> 1 mm)的比例(P < 0.05),而降低了其他粒级团聚体的比例。相比CK处理,PASP-Ca和CaLS的添加显著降低了微团聚体(0.053~0.25 mm)和粉黏粒(< 0.053 mm)的比例,但对大团聚体(> 0.25 mm)的比例提高效果不显著。以上结果进一步表明,γ-PGA-Ca比PASP-Ca和CaLS对土壤颗粒的黏结能力更强,从而有利于提高土壤大团聚体的数量和稳定性。综上所述,添加γ-PGA-Ca可显著提高水稳性大团聚体的比例和平均重量直径,从而改善土壤结构。
|
图 3 不同调理剂对土壤团聚体分布的影响 Fig. 3 Aggregate size distributions affected by different amendments |
α多样性常用于表征土壤微生物群落结构和多样性,其中,Chao1指数用于估计样品中所含OTU数目,反映了微生物群落物种数目,即物种丰富度;Shannon指数用于衡量微生物群落物种个体数分布的均匀程度;Simpson指数表征微生物群落的多样性,数值越低说明群落多样性越高[27]。如表 4所示,与CK处理相比,所有调理剂处理的Chao1指数和Shannon指数均不同程度增加,而Simpson指数略有降低,表明添加调理剂后土壤细菌群落的丰富度、均匀度和多样性均得到不同程度的提高。其中,PASP-Ca处理Chao1指数和Shannon指数均显著高于其他处理,表明PASP-Ca处理对细菌群落丰富度和均匀度的提升最为显著,其次是γ-PGA-Ca和Ca(OH)2处理,而CaLS处理的增幅略低。
|
|
表 4 不同调理剂对土壤细菌群落α多样性指数的影响 Table 4 α-diversity indexes of soil bacterial communities under different amendments |
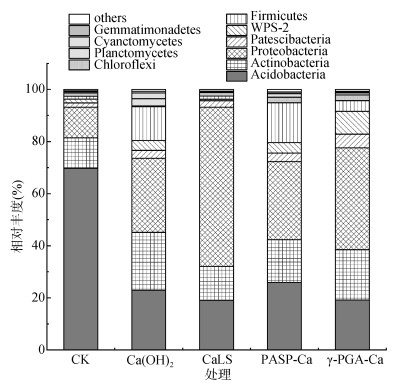
微生物相对丰度分析(图 4)表明,占主导地位的10种细菌类别分别为酸杆菌门(Acidobacteria)、变形菌门(Proteobacteria)、厚壁菌门(Firmicutes)、蓝细菌门(Cyanobacteria)、芽单胞菌门(Gemmatimonadetes)、浮霉菌门(Planctomycetes)、放线菌门(Actinobacteria)、绿湾菌门(Chloroflexi)、髌骨细菌门(Patescibacteria)、WPS-2菌门等。CK处理酸杆菌门占主要优势地位,而经过CaLS、PASP-Ca和γ-PGA-Ca改良处理大幅度增加了变形菌门和厚壁菌门细菌群落,甚至成为优势细菌门类。可见,经过土壤调理剂改良后,酸性土壤细菌群落分布更加均匀,细菌群落多样性得到显著提高。钙基高分子调理剂的添加对土壤微生物群落多样性和结构的改善均有明显促进效果。
|
图 4 不同调理剂处理土壤细菌在门水平下的群落结构组成 Fig. 4 Soil bacterial community compositions at phyla level under different amendments |
根系是占主导地位的养分吸收器官,负责营养物质从土壤介质进入植物体内的吸收过程。如表 5所示,不同调理剂添加均不同程度地显著促进了植物根长、根表面积、根体积和根尖数的增加,但对根直径没有显著影响,其中不同调理剂处理促进作用的大小顺序均为:γ-PGA-Ca > PASP-Ca > CaLS > Ca(OH)2,表明γ-PGA-Ca对作物根系的促进作用最为显著,其次是PASP-Ca和CaLS,均优于Ca(OH)2。因此,γ-PGA-Ca、PASP-Ca和CaLS均可作为高效的酸性土壤调理剂,缓解酸害和铝毒对根系生长发育的抑制作用,从而提高根系对养分的吸收,促进作物根系生长。
|
|
表 5 不同调理剂对小白菜根系发育的影响 Table 5 Root growth parameters of cabbage under different amendments |
植物生长状况可以反映酸性土壤改良后的肥力质量。表 6列出了不同调理剂添加后小白菜植物株高、生物量、叶面积和叶绿素含量情况,可见,不同类型调理剂均不同程度地促进了植物的生长发育。相比CK处理,γ-PGA-Ca处理的植物株高、生物量、叶面积和叶绿素含量分别增加了1.45倍、4.81倍、5.26倍和0.71倍,增加幅度高于其他处理,改良效果最佳,其次是PASP-Ca处理,CaLS和Ca(OH)2处理的促进作用较低且作用相当。综上所述,γ-PGA-Ca等钙基高分子调理剂的添加不仅促进植物根系的生长发育,还能提高植物株高、叶面积、叶绿素含量和生物量,从而促进植物全面生长发育。
|
|
表 6 不同调理剂对盆栽小白菜的株高、生物量、叶面积和叶绿素含量的影响 Table 6 Plant heights, biomass, leaf areas and chlorophyll contents of Pakchoi under different amendments |
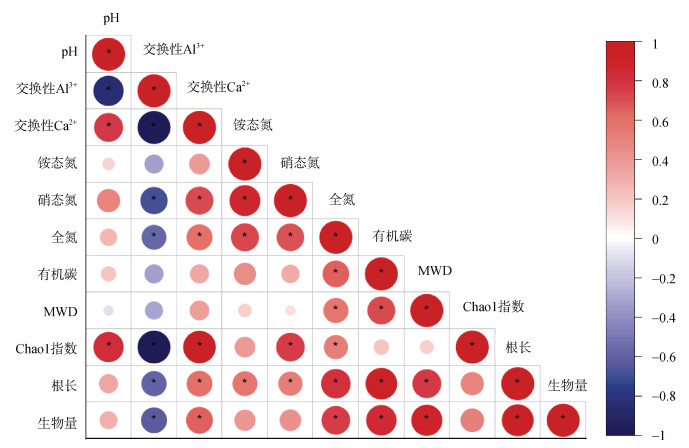
土壤团聚体是土壤结构的基本单元,是形成良好结构的物质基础,其稳定性对维持土壤健康和作物生产至关重要[28]。土壤板结阻碍根系生长,而增加团聚体数量和改善团聚体结构可增加土壤大孔隙数量,为植物根系生长创造空间、提供水分和热量[29]。据相关性分析(图 5),供试土壤水稳性团聚体MWD与土壤有机碳和全氮含量呈显著正相关(P < 0.05),表明γ-PGA-Ca和PASP-Ca的添加可通过提高土壤有机碳和氮的含量促进团聚体的形成。以往研究表明,有机质和钙作为胶结物质可黏合土壤颗粒,有利于形成土壤大团聚体[30]。聚谷氨酸的添加有利于增加农田土壤水稳性大团聚体的数量及其稳定性,从而提高土壤保持水分和养分的能力,降低水土流失的风险[31]。作物秸秆和畜禽粪便等有机物添加也能提高土壤团聚体稳定性,从而提升南方酸性红壤抗侵蚀能力[32]。土壤水稳定性团聚体比例及其稳定性的提高有利于增加土壤孔隙度,从而提高孔隙中氧气含量,有利于好氧微生物的生存和发展[33],对酸性土壤农业区可持续发展具有重要意义。
|
(*表示相关性达P < 0.05显著水平) 图 5 土壤酸度、养分、团聚体、微生物多样性、植物生长参数之间的相关性分析 Fig. 5 Correlation analysis among soil acidity, nutrients, aggregate stability, microbial diversity, and plant growth parameters |
生物多样性是生态系统稳定的基础。土壤微生物多样性可用于表征土壤肥力状况。同时,土壤微生物多样性也是驱动养分循环和维持生态平衡的关键因素[34]。据相关性分析(图 5),本研究中Chao1指数与土壤pH、交换性Ca2+、硝态氮、全氮呈显著正相关(P < 0.05),与交换性Al3+呈显著负相关(P < 0.05),表明CaLS、PASP-Ca和γ-PGA-Ca的添加通过提高酸性土壤pH和交换性Ca2+、硝态氮等营养[17, 23],为微生物提供良好的生长环境,从而促进了土壤细菌群落丰富度的提高,这与以往研究结果一致。有研究表明,决定酸性土壤细菌群落的首要因素是土壤pH,而土壤肥力的作用相对较弱[35]。土壤肥力的提升可以促进变形菌门和厚壁菌门等富营养型细菌的繁殖生长,从而提高土壤细菌群落的多样性和结构[36]。
土壤酸化可促进H+和Al3+从固相释放进入土壤溶液,从而导致土壤活性铝急剧增加,抑制植物根尖细胞分裂和生长,导致根系变短和根尖结构坏死,进而抑制根系对养分的吸收,阻碍作物生长发育,降低作物产量[37]。根据前期研究结果,3种钙基高分子调理剂均可显著降低土壤酸度,其中CaLS主要通过螯合Al3+来抑制Al3+水解产生H+,从而显著降低土壤交换性Al3+和交换性酸含量,提高土壤pH,有效缓解铝毒和酸胁迫对植物根系生长的抑制[17, 23]。本研究相关性分析表明,植物生物量和植物根长均与土壤铵态氮、硝态氮、交换性Ca2+、MWD呈显著正相关(P < 0.05),与交换性Al3+呈显著负相关(P < 0.05),表明钙基高分子调理剂的添加通过降低铝毒,提高铵态氮、硝态氮、交换性Ca2+等养分含量,缓解根系铝毒胁迫,促进根系的生长发育,从而促进作物生长[38]。钙基高分子调理剂不仅能缓解酸害和铝毒对植物根系的胁迫,还能改善土壤结构,缓解土壤板结对植物根系生长的抑制。相比Ca(OH)2和CaLS,PASP-Ca和γ-PGA-Ca本身含有大量的有机氮,在培养过程中可矿化释放较多的铵态氮等速效氮素(表 3),从而为微生物和植物提供有效氮源,有效促进植物的生长发育。前人研究也表明,聚天冬氨酸可作为氮肥增效剂施用于农田中,在改善土壤理化性质的同时,可为作物提供有效氮素和提高氮素利用率,有效促进植物生长发育[22]。而土壤微生物群落结构的改善也有利于加快物质循环,并分泌活性酶[39],为植物生长提供一个适宜生长的环境。
综上所述,γ-PGA-Ca对作物生长的促进作用最为显著,其次是PASP-Ca和CaLS,均优于Ca(OH)2。供试γ-PGA-Ca、PASP-Ca和CaLS均可作为高效的酸性土壤调理剂,显著促进团聚体的形成,提高土壤细菌群落多样性,为微生物和作物提供更为有利的生长环境,从而为农业可持续发展提供物质基础。
4 结论1) γ-PGA-Ca的添加增加了土壤中 > 0.25 mm水稳性团聚体比例,减少了 < 0.25 mm水稳性团聚体比例,促进了土壤水稳性大团聚体的形成,且有利于增强土壤团聚体结构的稳定性,提高土壤抗侵蚀能力。
2) PASP-Ca和γ-PGA-Ca的添加可显著改善土壤细菌群落多样性和物种组成,促进物质循环和养分的储存与释放。
3) γ-PGA-Ca等钙基高分子调理剂的添加主要通过缓解土壤酸害、铝毒等改良酸性土壤,同时提高土壤肥力,进而显著促进作物及其根系的生长发育。
| [1] |
Chen S C, Liang Z Z, Webster R, et al. A high-resolution map of soil pH in China made by hybrid modelling of sparse soil data and environmental covariates and its implications for pollution[J]. Science of the Total Environment, 2019, 655: 273-283 DOI:10.1016/j.scitotenv.2018.11.230 (  0) |
| [2] |
Guo J H, Liu X J, Zhang Y, et al. Significant acidification in major Chinese croplands[J]. Science, 2010, 327(5968): 1008-1010 DOI:10.1126/science.1182570 ( 0) |
| [3] |
Song F F, Xu M G, Duan Y H, et al. Spatial variability of soil properties in red soil and its implications for site-specific fertilizer management[J]. Journal of Integrative Agriculture, 2020, 19(9): 2313-2325 DOI:10.1016/S2095-3119(20)63221-X ( 0) |
| [4] |
Li A W, Li C J, Zhang Y Y, et al. The driving factors and buffering mechanism regulating cropland soil acidification across the Sichuan Basin of China[J]. Catena, 2023, 220: 106688 DOI:10.1016/j.catena.2022.106688 ( 0) |
| [5] |
杨歆歆, 赵庚星, 李涛, 等. 山东省土壤酸化特征及其影响因素分析[J]. 农业工程学报, 2016, 32(S2): 155-160 ( 0) |
| [6] |
张驭航, 李玲, 王秀丽, 等. 河南省土壤pH值时空变化特征分析[J]. 土壤通报, 2019, 50(5): 1091-1100 ( 0) |
| [7] |
张玲玉, 赵学强, 沈仁芳. 土壤酸化及其生态效应[J]. 生态学杂志, 2019, 38(6): 1900-1908 ( 0) |
| [8] |
李科伟, 徐仁扣. 碳循环在土壤酸化与调控中的作用[J]. 土壤, 2025, 57(3): 485-497 DOI:10.13758/j.cnki.tr.2025.03.001 ( 0) |
| [9] |
Zhu Q C, Liu X J, Hao T X, et al. Cropland acidification increases risk of yield losses and food insecurity in China[J]. Environmental Pollution, 2020, 256: 113145 DOI:10.1016/j.envpol.2019.113145 ( 0) |
| [10] |
康飞, 杜学军, 胡树文, 等. 基于Web of Science和万方专利对土壤酸化和改良材料研究的计量分析[J]. 土壤, 2021, 53(6): 1261-1270 DOI:10.13758/j.cnki.tr.2021.06.021 ( 0) |
| [11] |
陈山, 杨峰, 林杉, 等. 土地利用方式对红壤团聚体稳定性的影响[J]. 水土保持学报, 2012, 26(5): 211-216 ( 0) |
| [12] |
Xiao H, Liu G, Liu P L, et al. Developing equations to explore relationships between aggregate stability and erodibility in Ultisols of subtropical China[J]. Catena, 2017, 157: 279-285 DOI:10.1016/j.catena.2017.05.032 ( 0) |
| [13] |
淡俊豪, 齐绍武, 黎娟, 等. 生石灰对酸性土壤pH值及微生物群落功能多样性的影响[J]. 西南农业学报, 2017, 30(12): 2739-2745 ( 0) |
| [14] |
Bossolani J W, Crusciol C A C, Leite M F A, et al. Modulation of the soil microbiome by long-term Ca-based soil amendments boosts soil organic carbon and physicochemical quality in a tropical no-till crop rotation system[J]. Soil Biology and Biochemistry, 2021, 156: 108188 DOI:10.1016/j.soilbio.2021.108188 ( 0) |
| [15] |
Liu J, Liu M, Wu M, et al. Soil pH rather than nutrients drive changes in microbial community following long-term fertilization in acidic Ultisols of Southern China[J]. Journal of Soils and Sediments, 2018, 18(5): 1853-1864 DOI:10.1007/s11368-018-1934-2 ( 0) |
| [16] |
Kang F, Meng Y S, Ge Y N, et al. Calcium-based polymers for suppression of soil acidification by improving acid-buffering capacity and inhibiting nitrification[J]. Journal of Environmental Sciences, 2024, 139: 138-149 DOI:10.1016/j.jes.2023.05.025 ( 0) |
| [17] |
Kang F, Lv Q L, Liu J, et al. Organic-inorganic calcium lignosulfonate compounds for soil acidity amelioration[J]. Environmental Science and Pollution Research, 2022, 29(49): 74118-74132 DOI:10.1007/s11356-022-20461-1 ( 0) |
| [18] |
Liu Q J, Deng Y, Tang J P, et al. Potassium lignosulfonate as a washing agent for remediating lead and copper co-contaminated soils[J]. Science of the Total Environment, 2019, 658: 836-842 DOI:10.1016/j.scitotenv.2018.12.228 ( 0) |
| [19] |
Chowdhury M A. The controlled release of bioactive compounds from lignin and lignin-based biopolymer matrices[J]. International Journal of Biological Macromolecules, 2014, 65: 136-147 DOI:10.1016/j.ijbiomac.2014.01.012 ( 0) |
| [20] |
Numata K. Poly(amino acid)s/polypeptides as potential functional and structural materials[J]. Polymer Journal, 2015, 47(8): 537-545 DOI:10.1038/pj.2015.35 ( 0) |
| [21] |
Liang J P, Shi W J, He Z J, et al. Effects of poly-γ-glutamic acid on water use efficiency, cotton yield, and fiber quality in the sandy soil of southern Xinjiang, China[J]. Agricultural Water Management, 2019, 218: 48-59 DOI:10.1016/j.agwat.2019.03.009 ( 0) |
| [22] |
Deng F, Wang L, Ren W J, et al. Enhancing nitrogen utilization and soil nitrogen balance in paddy fields by optimizing nitrogen management and using polyaspartic acid urea[J]. Field Crops Research, 2014, 169: 30-38 DOI:10.1016/j.fcr.2014.08.015 ( 0) |
| [23] |
Kang F, Lv Q L, Fan J B, et al. Ameliorative effect of calcium poly(aspartic acid) (PASP-Ca) and calcium poly-γ-glutamic acid (γ-PGA-Ca) on soil acidity in different horizons[J]. Environmental Science and Pollution Research, 2023, 30(30): 75681-75693 DOI:10.1007/s11356-023-27713-8 ( 0) |
| [24] |
徐爽, 王益权. 湿筛过程中分散液的质量对土壤团聚体稳定性的影响[J]. 植物营养与肥料学报, 2014, 20(4): 1012-1020 ( 0) |
| [25] |
朱兆良. 中国土壤氮素研究[J]. 土壤学报, 2008, 45(5): 778-783 ( 0) |
| [26] |
尚杰, 耿增超, 赵军, 等. 生物炭对塿土水热特性及团聚体稳定性的影响[J]. 应用生态学报, 2015, 26(7): 1969-1976 ( 0) |
| [27] |
Matson A, Fantappiè M, Campbell G A, et al. Four approaches to setting soil health targets and thresholds in agricultural soils[J]. Journal of Environmental Management, 2024, 371: 123141 DOI:10.1016/j.jenvman.2024.123141 ( 0) |
| [28] |
刘亚龙, 王萍, 汪景宽. 土壤团聚体的形成和稳定机制: 研究进展与展望[J]. 土壤学报, 2023, 60(3): 627-643 ( 0) |
| [29] |
Mustafa A, Xu M G, Ali Shah S A, et al. Soil aggregation and soil aggregate stability regulate organic carbon and nitrogen storage in a red soil of Southern China[J]. Journal of Environmental Management, 2020, 270: 110894 DOI:10.1016/j.jenvman.2020.110894 ( 0) |
| [30] |
Hontoria C, Gómez-Paccard C, Mariscal-Sancho I, et al. Aggregate size distribution and associated organic C and N under different tillage systems and Ca-amendment in a degraded Ultisol[J]. Soil and Tillage Research, 2016, 160: 42-52 DOI:10.1016/j.still.2016.01.003 ( 0) |
| [31] |
Chen L, Fei L J, Wang Z L, et al. The effects of ploy (γ-glutamic acid) on spinach productivity and nitrogen use efficiency in North-West China[J]. Plant, Soil and Environment, 2018, 64(11): 517-522 DOI:10.17221/371/2018-PSE ( 0) |
| [32] |
Peng X, Zhu Q H, Xie Z B, et al. The impact of manure, straw and biochar amendments on aggregation and erosion in a hillslope Ultisol[J]. Catena <, 2016, 138: 30-37 ( 0) |
| [33] |
Lu S G, Malik Z, Chen D P, et al. Porosity and pore size distribution of Ultisols and correlations to soil iron oxides[J]. Catena <, 2014, 123: 79-87 ( 0) |
| [34] |
Shen J, Luo Y L, Tao Q, et al. The exacerbation of soil acidification correlates with structural and functional succession of the soil microbiome upon agricultural intensification[J]. Science of the Total Environment, 2022, 828: 154524 DOI:10.1016/j.scitotenv.2022.154524 ( 0) |
| [35] |
刘佳, 陈晓芬, 刘明, 等. 长期施肥对旱地红壤细菌群落的影响[J]. 土壤学报, 2020, 57(2): 468-478 ( 0) |
| [36] |
Guo H, Chen L Y, Wang Y X, et al. Combined application of biochar and magnesium fertilizer effectively improved the soil environment and the tea quality in southern strongly acidic tea garden[J]. Journal of Soils and Sediments, 2023, 23(7): 2798-2815 DOI:10.1007/s11368-023-03495-x ( 0) |
| [37] |
Wang P, Guo J, Xu X Y, et al. Soil acidification alters root morphology, increases root biomass but reduces root decomposition in an Alpine grassland[J]. Environmental Pollution, 2020, 265: 115016 DOI:10.1016/j.envpol.2020.115016 ( 0) |
| [38] |
Haling R E, Simpson R J, Delhaize E, et al. Effect of lime on root growth, morphology and the rhizosheath of cereal seedlings growing in an acid soil[J]. Plant and Soil, 2010, 327(1/2): 199-212 ( 0) |
| [39] |
Song W F, Shu A P, Liu J A, et al. Effects of long-term fertilization with different substitution ratios of organic fertilizer on paddy soil[J]. Pedosphere, 2022, 32(4): 637-648 DOI:10.1016/S1002-0160(21)60047-4 ( 0) |