 2026, Vol. 58


森林土壤有机碳库在全球碳循环中占据关键地位,其含量的微小变化便可能对陆地生态系统产生深远影响[1]。据估计,北方森林拥有全球陆地碳储量的30%,大部分以有机碳的形式储存在土壤中[2]。其中,惰性有机碳(Recalcitrant organic carbon,ROC)占土壤有机碳的60%~70%,难以被微生物降解,具有高度稳定性,在全球碳循环中起着重要的储碳作用[3]。因此,研究全球变化背景下ROC含量变化及其影响因素,对于理解和预测土壤碳动态至关重要。
随着全球经济发展,活性氮水平持续上升并显著高于自然本底值,其对全球碳循环的影响正日益凸显[4]。近几十年来,众多国内外学者研究了外源氮添加对土壤碳库和酶活性的影响并取得了显著进展。吴建波和王小丹[5]研究发现,氮添加会抑制木质素过氧化物酶、锰过氧化物酶、漆酶及多酚氧化酶等氧化还原酶活性,显著降低木质素及难降解有机碳的分解速率,进而促进ROC的积累[6]。冯继广等[7]和Xing等[8]的研究表明,氮添加会引发土壤酸化和养分失衡;可通过抑制微生物代谢活性来调控有机碳周转过程[9]。此外,Luo等[10]研究发现,氮沉降还可通过影响磷酸酶活性对土壤有机碳储量产生级联影响。
在氮沉降模拟试验中,NH4NO3常被用作外加氮源,其次是酰胺态氮(Urea)、铵态氮和硝态氮[11]。现有研究表明,不同氮源对土壤有机碳稳定性和相关过程的影响存在差异。Neff等[12]研究表明,施加Urea会显著增加ROC的含量,促进土壤有机碳储存。而简俊楠等[1]研究发现,Urea处理后,ROC含量呈现增加趋势,但不显著。Min等[13]试验发现,铵态氮添加通过抑制氧化酶活性,促进土壤有机碳的积累,而硝态氮施加对土壤有机碳的影响相对较弱。这些结果的差异可能源于硝态氮、铵态氮和Urea的化学性质不同:铵态氮在土壤中的转化会导致明显的土壤酸化现象,影响土壤微生物群落结构和功能;硝态氮在土壤中相对稳定,施加后土壤酸化程度较小;Urea在土壤中水解后才会被植物和微生物利用,通常不会导致明显的土壤酸化[14]。Meta分析发现,硝态氮比铵态氮更易淋失[11],这意味着硝态氮对生态系统的影响可能显著小于同等剂量的铵态氮。可见,在氮沉降模拟试验中,选择不同形态的外加氮源可能会导致不同的试验结果。然而,目前多数研究聚焦于单一氮源不同浓度梯度施加对土壤有机碳的影响,关于不同氮源类型对土壤有机碳库稳定性的差异化影响研究较少,且存在诸多不确定性。在全球氮沉降不断增加的背景下,深入了解外源氮添加对土壤有机碳库的影响及其机制至关重要,特别是探讨不同类型氮添加对ROC及相关酶活性的影响具有重要的科学意义。
我国华北地区作为重要的农业与经济核心区域之一,受人类活动影响大,是我国氮沉降较严重的区域之一。其不仅承载着密集的人口,还面临着森林生态空间相对不足的问题[15]。目前,该地区针对不同施氮类型对土壤ROC影响的研究较少,难以满足全面深入了解森林生态系统状况和应对相关问题的需求。基于此,本研究选取华北地区典型温带森林土壤为研究对象,通过施加不同种类的氮源,分析其对土壤ROC含量、其他理化性质以及酶活性的影响,以揭示不同类型外源氮添加对温带森林土壤ROC的潜在影响及其生态学机制,为精准预测氮沉降对土壤有机碳库的影响提供理论依据,为森林生态系统的长期可持续发展提供科学依据。
1 材料与方法 1.1 研究区概况试验样地位于河北省灵寿县五岳寨国家森林公园(38°42′ N,113°48′ E)。该地区年均温14.3 ℃,年降水量约为800 mm,具有华北地区典型的温带森林生态系统,包括阔叶林(白桦Betula platyphylla Sukaczev、山杨Populus davidiana Dode、椴树Tilia tuan Szyszyl、槭树Acer miyabei Maxim,等)、针叶林(油松Pinus tabuliformis Carrière、侧柏Platycladus orientalis (L.) Franco、华北落叶松Larix gmelinii var. principis-rupprechtii (Mayr) Pilger,等)、针阔混交林、灌丛、草甸等植被类型。试验样地大气氮沉降量约为N 2.8 g/(m2·a)[16],土壤以棕壤为主,土层较厚。
1.2 试验设计野外试验于2019年1月开始,在研究区内选取立地条件相同的白桦林为试验样地。试验采用随机完全区组设计,设置铵态氮(NH4Cl和(NH4)2SO4)、硝态氮(KNO3和NaNO3)、铵硝混合氮(NH4NO3)和酰胺态氮(Urea)为外加氮源处理,并以不施氮处理为空白对照(CK),共7个处理,每个处理3次重复。各样方(10.0 m×10.0 m)随机分布于试验样地。施氮处理时,首先将各类型氮肥溶解在2 000 mL无菌水中,再均匀地喷洒在样方土壤表面,而对于空白样地施用等量的无菌水。参考多数研究采用的施氮周期2~4个月,施氮量N 5~15 g/(m2·a) [17-18],本试验选取中等施氮方案,即每3个月施氮量为N 2.5 g/m2,年累计施氮量为N 10.0 g/(m2·a)。
土壤样品于2023年3月采集,为了避免各采样点之间的干扰,每个采样点在样地内间距50 m以上且随机分布。采样时,使用环刀以五点采样法采集深度不超过15 cm的土壤,每个样方随机采样5次,获得共约1 000 g土样。新鲜土样去除杂质,过2 mm筛,装入塑料自封袋运回实验室。一部分放置在避光通风处风干,用于测定土壤碳、氮、磷和pH等理化性质;另一部分在4 ℃下进行低温保存,用于测定土壤酶活性。
1.3 土壤指标测定土壤pH采用水浸提–电位法测定(土水质量比1∶2.5);全氮(TN)采用凯氏定氮法测定(KDN-08 A(04 A),上海力辰邦西仪器科技有限公司);铵态氮(AN)和硝态氮(NN)采用AMS Alliance FUTURA 3连续流动分析仪测定;有效磷(AP)采用碳酸氢钠提取–钼锑抗比色法测定[19]。
土壤木质素过氧化物酶(LiP)活性采用藜芦醇氧化速率法测定,其活性以1 g土壤每分钟氧化藜芦醇生成藜芦醛的量表示[20]。锰过氧化物酶(MnP)活性采用锰离子氧化法测定,其活性以1 g土壤每分钟氧化Mn2+生成Mn3+的量表示[20]。漆酶(Lac)活性采用ABTS法测定,其活性以1 g土壤每分钟氧化2, 2′-联氮-双-3-乙基苯并噻唑啉-6-磺酸(ABTS)生成ABTS自由基的量表示[21]。多酚氧化酶(PPO)活性通过邻苯三酚比色法测定,其活性以1 g土壤每小时催化邻苯三酚生成紫色没食子素的量表示[22]。磷酸酶(Pase)活性采用对硝基苯磷酸钠法测定,其活性以1 g土壤每小时释放1 mg对硝基苯酚的量表示[23]。
ROC采用酸水解法测定[24]:称取2 g风干土,用6 mol/L HCl在115 ℃下消煮16 h,待样品冷却后用蒸馏水洗至中性,风干,后续使用重铬酸钾氧化–分光光度法测定的有机碳含量即为ROC含量。总有机碳(TOC)使用重铬酸钾氧化–分光光度法测定[25]。此外,将ROC与TOC的比值定义为惰性碳指数(RI)[26],用于评估土壤有机碳的稳定性。
1.4 数据处理与分析使用R语言(R 4.2.3)对数据进行统计分析。利用单因素方差分析(One-way ANOVA)和最小显著差异法(LSD)比较不同处理间各指标的差异,显著性水平设置为P < 0.05。使用Mantel检验分析各土壤指标之间的关系,同时,构建随机森林模型分析各因子对ROC变化的影响并进行排序。使用的主要软件包包括lme4、AICcmodavg、reshape2、ggpubr、ggsignif、dplyr、agricolae、linkET、tidyverse、rfPermute、randomForest、ggplot2等。
2 结果与分析 2.1 土壤基本理化性质由表 1可知,不同施氮处理对土壤理化性质产生了显著影响(P < 0.05)。施氮后,土壤pH显著下降了8.4%~11.4%,其中铵态氮处理pH降幅最大,尤其是(NH4)2SO4处理,降幅为11.4%。施加硝态氮后,AP含量下降幅度最大,其中KNO3处理降幅为60.3%,NaNO3处理降幅为57.7%;同时N/P增幅最高,KNO3和NaNO3处理增幅分别为198.1% 和164.1%。
|
表 1 不同氮类型对土壤理化性质的影响 Table 1 Effects of different nitrogen types on soil physicochemical properties |
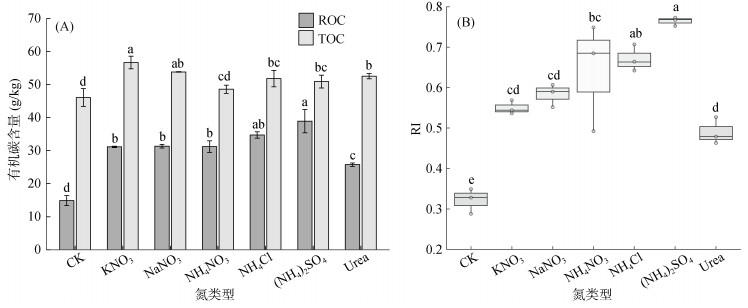
施氮后,土壤ROC含量及RI分别显著上升了73.4%~161.9% 和52.3%~137.4%(P < 0.05,图 1),不同施氮处理表现出差异化的效果。其中,ROC含量在铵态氮处理后增幅最大,NH4Cl和(NH4)2SO4处理增幅分别为133.7% 和161.9%,而Urea处理增幅最小,为73.4%。
|
(图中不同小写字母表示同一指标不同氮肥处理间差异显著(P < 0.05),下同) 图 1 不同氮类型对土壤惰性有机碳库的影响 Fig. 1 Effects of different nitrogen types on soil recalcitrant organic carbon pool |
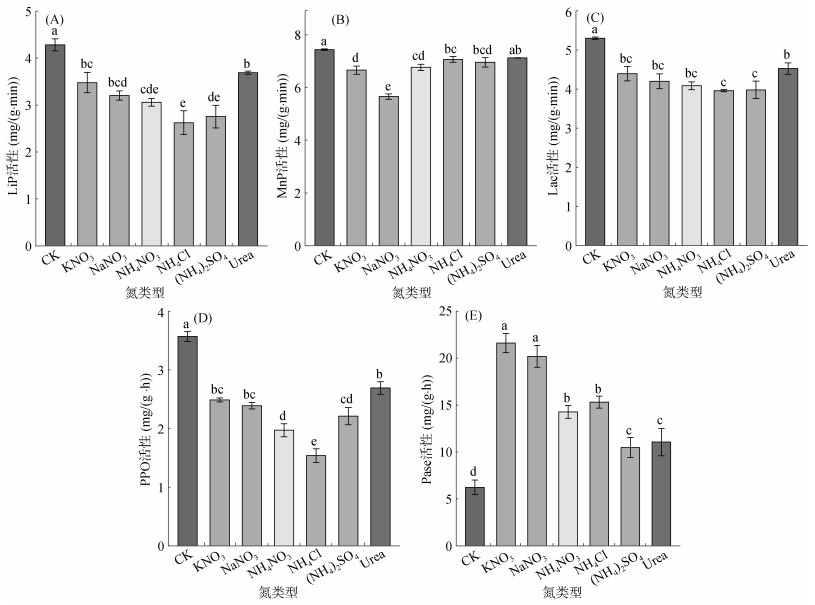
施氮后,LiP、MnP、Lac及PPO的活性分别显著降低了13.8%~38.7%、4.2%~24%、14.6%~25.3% 和24.6%~56.9%(P < 0.05,图 2A~2D)。其中,铵态氮处理下LiP、Lac及PPO的活性降幅最大,特别是NH4Cl处理,降幅分别为38.7%、25.3%、56.9%。硝态氮施加后MnP活性显著下降,KNO3和NaNO3处理分别下降了10.5% 和24%。Urea处理后,LiP、MnP、Lac和PPO活性分别显著下降了13.8%、4.2%、14.6% 和24.6%。而Pase活性在硝态氮处理后增幅最大,KNO3和NaNO3处理增幅分别为246.9% 和224.1% (P < 0.05,图 2E)。
|
图 2 不同氮类型对土壤酶活性的影响 Fig. 2 Effect of different nitrogen types on soil enzyme activities |
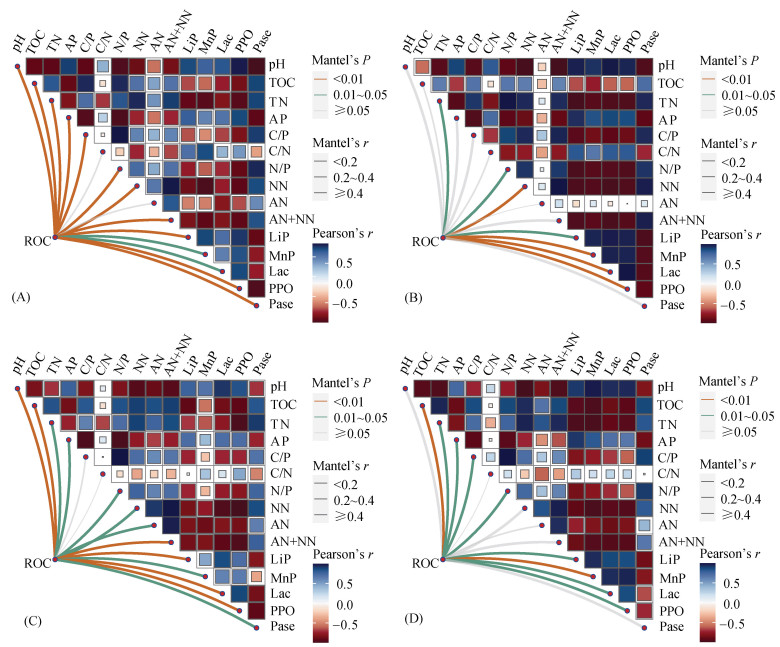
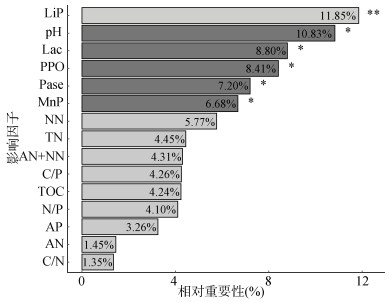
Mantel检验(图 3)表明,土壤酶之间呈现显著的相关性,Pase与氧化还原酶(LiP、Lac、MnP和PPO)之间呈显著负相关;氧化还原酶与ROC呈显著负相关;ROC与TOC呈显著正相关;AP与Pase呈显著负相关;pH与Pase呈显著负相关,与氧化还原酶呈正相关。此外,硝态氮处理下,Pase、AP与ROC存在极显著相关性(图 3A)。进一步的随机森林模型分析发现,施氮后土壤pH和氧化还原酶是影响ROC含量变化的主要驱动因素(图 4)。
|
(A:硝态氮处理;B:铵硝混合氮处理;C:铵态氮处理;D:酰胺态氮处理) 图 3 不同氮类型下ROC含量与土壤理化性质和酶活性相关性的Mantel检验 Fig. 3 Mantel test of correlation between ROC content and soil physicochemical properties and enzyme activities under different N types |
|
(*、**分别表示达P < 0.05、P < 0.01显著水平) 图 4 随机森林模型筛选的影响ROC的因子 Fig. 4 Factors affecting ROC screened by random forest model |
本研究发现,施氮显著促进ROC的积累。Mantel检验表明,ROC与TOC之间存在紧密关联,说明ROC含量在氮沉降驱动下的变化可作为土壤有机碳储量及组分变化的重要指示因子,这与裴志福等[27]的研究结果相符。进一步分析表明,氮添加通过影响土壤理化性质、氧化还原酶活性(LiP、Lac、MnP和PPO)以及养分平衡来调控ROC含量,且不同氮源类型调控效应存在显著差异。
首先,氮输入显著提高了土壤有效氮含量,促进了ROC积累,这与左超等[24]研究结论一致。土壤有效氮含量的增加会促进其与凋落物中的有机质发生缩合反应,生成难降解的杂环化合物和酚类物质,进而增加木质素等难降解有机碳含量[28],使ROC得到积累。其次,氮沉降导致的土壤酸化也会显著抑制氧化还原酶的活性,降低有机碳的分解速率,为ROC的储存创造条件,这与吴建波和王小丹[5]的研究结果一致。
本研究发现,LiP、Lac、MnP和PPO 4种氧化还原酶活性的变化是ROC积累的关键因素之一。氮添加显著抑制了上述酶的活性,从而限制了土壤中难降解有机碳的分解,加速了ROC的积累过程。其中,铵态氮对LiP、Lac、PPO活性的抑制尤为显著,这与Min等[13]的研究结果一致。这主要是由于NH4+在转化过程中会显著降低土壤pH[29],土壤的进一步酸化打破了这些酶的适宜环境,从而抑制了酶的活性[30]。此外,NH4Cl对酶活性的抑制作用要强于(NH4)2SO4,这与King等[31]的研究结果一致。这是由于Cl–自身的离子毒性要强于SO42–,会进一步破坏酶的蛋白质结构,影响其催化效率,加剧对土壤酶活性的抑制[32]。正是由于铵态氮处理下土壤酸化和LiP、Lac、PPO活性的大幅降低,抑制了土壤有机碳的分解过程,最终使ROC含量大幅增加。
硝态氮处理后MnP活性降幅最大,这是由于硝态氮施加导致土壤中Mn2+流失,使MnP的活性降低,最终导致ROC积累[33],这一结果与Zhang等[34]的研究结果相符。同时,硝态氮处理后N/P增幅最高,表明其更易诱导生态系统由氮限制向磷限制转变[35]。面对磷素供应不足,微生物会通过上调Pase活性以增强对磷的获取能力[5]。本研究中,硝态氮处理下Pase、AP与ROC存在极显著相关性,进一步表明土壤碳、磷循环之间存在相互影响机制[10]。在未来硝态氮持续增加的背景下,土壤磷的变化可能成为影响ROC含量的关键因素之一。
相比其他氮源,Urea对氧化还原酶活性的影响最小,这与Shi等[36]的研究结果相符。Urea在转化过程中对土壤酸化具有一定的缓冲作用,降低了对土壤酶活性的影响[37],因此有机碳分解过程受影响的程度较小,导致ROC的积累量相对较低。然而,自然条件下大气沉降到地面的氮素以无机氮为主,因此,仅施用Urea进行氮沉降模拟试验,可能会系统性低估氮沉降对生态系统的实际影响。
4 结论施氮显著促进了温带森林土壤ROC的积累,提高了RI,这主要是由于土壤酸化和氧化还原酶活性显著下降导致。不同施氮类型对ROC调控程度存在差异。铵态氮处理下ROC积累最多,Urea处理下ROC积累相对较少,硝态氮处理下ROC积累量居中。土壤pH和氧化还原酶是调控ROC含量变化的主导因子。本研究结果可为氮沉降对土壤有机碳库影响的精准预测提供参考。
| [1] |
简俊楠, 刘伟超, 朱玉帆, 等. 短期氮添加对黄土高原人工刺槐林土壤有机碳组分的影响[J]. 环境科学, 2023, 44(5): 2767-2774 (  0) |
| [2] |
Pan Y D, Birdsey R A, Fang J Y, et al. A large and persistent carbon sink in the world's forests[J]. Science, 2011, 333(6045): 988-993 DOI:10.1126/science.1201609 ( 0) |
| [3] |
陈梦蝶, 崔晓阳. 土壤有机碳矿物固持机制及其影响因素[J]. 中国生态农业学报(中英文), 2022, 30(2): 175-183 ( 0) |
| [4] |
Yang X M, Ma S H, Huang E H, et al. Nitrogen addition promotes soil carbon accumulation globally[J]. Science China Life Sciences, 2025, 68(1): 284-293 DOI:10.1007/s11427-024-2752-2 ( 0) |
| [5] |
吴建波, 王小丹. 藏北高寒草原土壤酶活性对氮添加的响应及其影响因素[J]. 草地学报, 2021, 29(3): 555-562 ( 0) |
| [6] |
元晓春, 张晓晴, 周茜, 等. 短期低氮添加改变黄山松土壤可溶性有机质的分子组成及稳定性[J]. 土壤学报, 2025, 62(2): 504-514 ( 0) |
| [7] |
冯继广, 张秋芳, 袁霞, 等. 氮磷添加对土壤有机碳的影响: 进展与展望[J]. 植物生态学报, 2022, 46(8): 855-870 ( 0) |
| [8] |
Xing W, Lu X M, Ying J Y, et al. Disentangling the effects of nitrogen availability and soil acidification on microbial taxa and soil carbon dynamics in natural grasslands[J]. Soil Biology and Biochemistry, 2022, 164: 108495 DOI:10.1016/j.soilbio.2021.108495 ( 0) |
| [9] |
武振丹, 马尚飞, 卢俊艳, 等. 贝加尔针茅草甸草原土壤有机碳组分对长期氮素添加的响应[J]. 土壤学报, 2023, 60(5): 1520-1530 ( 0) |
| [10] |
Luo M, Moorhead D L, Ochoa-Hueso R, et al. Nitrogen loading enhances phosphorus limitation in terrestrial ecosystems with implications for soil carbon cycling[J]. Functional Ecology, 2022, 36(11): 2845-2858 DOI:10.1111/1365-2435.14178 ( 0) |
| [11] |
Guo P, Kong D Y, Yang L F, et al. Differences in characteristics of sample sites explain variable responses of soil microbial biomass to nitrogen addition: A meta-analysis[J]. Ecosystems, 2023, 26(8): 1703-1715 DOI:10.1007/s10021-023-00859-9 ( 0) |
| [12] |
Neff J C, Townsend A R, Gleixner G, et al. Variable effects of nitrogen additions on the stability and turnover of soil carbon[J]. Nature, 2002, 419(6910): 915-917 DOI:10.1038/nature01136 ( 0) |
| [13] |
Min K, Kang H, Lee D. Effects of ammonium and nitrate additions on carbon mineralization in wetland soils[J]. Soil Biology and Biochemistry, 2011, 43(12): 2461-2469 DOI:10.1016/j.soilbio.2011.08.019 ( 0) |
| [14] |
Wang Z, Tao T T, Wang H, et al. Forms of nitrogen inputs regulate the intensity of soil acidification[J]. Global Change Biology, 2023, 29(14): 4044-4055 DOI:10.1111/gcb.16746 ( 0) |
| [15] |
孟晶. 华北地区林业生态修复技术及其应用[J]. 农村科学实验, 2025(3): 123-125 ( 0) |
| [16] |
林以真, 李凌, 赵园红, 等. 应用大气化学模型解析华北地区大气氮沉降时空分布特征及影响因素[J]. 地球环境学报, 2023, 14(2): 170-181 ( 0) |
| [17] |
徐玲, 薛丹, 孙嘉悦, 等. 氮添加对鄂西南贫营养型泥炭地碳组分的影响[J]. 应用与环境生物学报, 2025, 31(3): 412-421 ( 0) |
| [18] |
苏梓锐, 曾发旭, 郑成洋. 氮添加对亚热带常绿阔叶林土壤有机碳及土壤呼吸的影响[J]. 北京大学学报(自然科学版), 2022, 58(3): 517-525 ( 0) |
| [19] |
沈志群, 张琪, 刘琳娟, 等. 碳酸氢钠浸提-钼锑抗分光光度法测定土壤中的有效磷[J]. 环境监控与预警, 2011, 3(5): 12-15 ( 0) |
| [20] |
郝蓉, 康杰, 伍玉鹏, 等. 消落带土壤黑碳降解过程中真菌群落结构及酶活特征[J]. 生态环境学报, 2016, 25(7): 1140-1145 ( 0) |
| [21] |
刘海宇, 申露, 梁胜焕, 等. 铜锰离子添加下奶油栓孔菌的木质素降解酶活性、耐受性及移除能力[J]. 应用与环境生物学报, 2023, 29(5): 1211-1219 ( 0) |
| [22] |
张金钰, 邱新彩, 刘欣, 等. 间伐对塞罕坝华北落叶松人工林土壤酶活性的影响[J]. 应用与环境生物学报, 2022, 28(2): 300-307 ( 0) |
| [23] |
孔猛, 黄明镜, 张冬梅, 等. 黄土高原半干旱区覆膜和施磷对紫花苜蓿草地土壤磷组分的影响[J]. 中国生态农业学报(中英文), 2024, 32(8): 1377-1388 ( 0) |
| [24] |
左超, 罗彩云, 赵亮, 等. 不同土地利用方式对土壤惰性碳的影响[J]. 草原与草坪, 2024, 44(2): 96-105 ( 0) |
| [25] |
Xiao J N, Dong S K, Zhao Z Z, et al. Stabilization of soil organic carbon in the Alpine meadow is dependent on the nitrogen deposition level on the Qinghai-Tibetan Plateau[J]. Ecological Engineering, 2021, 170: 106348 DOI:10.1016/j.ecoleng.2021.106348 ( 0) |
| [26] |
张方方, 岳善超, 李世清. 土壤有机碳组分化学测定方法及碳指数研究进展[J]. 农业环境科学学报, 2021, 40(2): 252-259 ( 0) |
| [27] |
裴志福, 红梅, 武振丹, 等. 草甸草原土壤不同组分有机碳含量及化学结构对长期氮输入的响应[J]. 土壤, 2022, 54(3): 481-489 DOI:10.13758/j.cnki.tr.2022.03.007 ( 0) |
| [28] |
Berg B. Litter decomposition and organic matter turnover in northern forest soils[J]. Forest Ecology and Management, 2000, 133(1/2): 13-22 ( 0) |
| [29] |
Guo P, Yang L F, Kong D Y, et al. Differential effects of ammonium and nitrate addition on soil microbial biomass, enzymatic activities, and organic carbon in a temperate forest in North China[J]. Plant and Soil, 2022, 481(1/2): 595-606 ( 0) |
| [30] |
姜铭楷, 马书琴, 熊艳云, 等. 氮沉降驱动下凋落物分解对毛竹林土壤有机碳组分的影响[J]. 应用生态学报, 2024, 35(11): 2983-2991 ( 0) |
| [31] |
King G M, Schnell S. Effects of Ammonium and Non-Ammonium Salt Additions on Methane Oxidation by Methylosinus trichosporium OB3b and Maine Forest Soils[J]. Applied and Environmental Microbiology, 1998, 64(1): 253-257 DOI:10.1128/AEM.64.1.253-257.1998 ( 0) |
| [32] |
张桂玲. 渗透胁迫和离子毒害对转Bt基因棉幼苗生长及离子分布的影响[J]. 热带亚热带植物学报, 2012, 20(02): 156-162 ( 0) |
| [33] |
Whalen E D, Smith R G, Grandy A S, et al. Manganese limitation as a mechanism for reduced decomposition in soils under atmospheric nitrogen deposition[J]. Soil Biology and Biochemistry, 2018, 127: 252-263 DOI:10.1016/j.soilbio.2018.09.025 ( 0) |
| [34] |
Zhang Y Y, Hobbie S E, Schlesinger W H, et al. Exchangeable manganese regulates carbon storage in the humus layer of the boreal forest[J]. Proceedings of the National Academy of Sciences of the United States of America, 2024, 121(13): e2318382121 ( 0) |
| [35] |
李欣冉, 林浩, 曹平丽, 等. 长期施氮加剧亚热带米槠天然林不同深度土壤磷限制: 基于土壤胞外酶活性及其化学计量比角度[J]. 土壤, 2024, 56(5): 963-974 DOI:10.13758/j.cnki.tr.2024.05.006 ( 0) |
| [36] |
Shi J B, Rahman M K U, Ma R N, et al. Effects of nitrogen enrichment on soil enzyme activities in grassland ecosystems in China: A multilevel meta-analysis[J]. Pedosphere, 2025, 35(1): 84-96 DOI:10.1016/j.pedsph.2024.10.006 ( 0) |
| [37] |
杨昌富, 王好圆, 覃双结, 等. 氮肥形态及用量对坡耕地红壤pH的影响机理[J]. 植物营养与肥料学报, 2023, 29(6): 1168-1180 ( 0) |