 2026, Vol. 58


2. 中国科学院南京土壤研究所, 南京 211135;
3. 中国科学院大学南京学院, 南京 211135
自工业革命以来,化石燃料燃烧、工业生产和森林砍伐等人类活动导致大气中二氧化碳(CO2)、甲烷(CH4)、一氧化二氮(也称氧化亚氮,N2O)等温室气体浓度显著上升。CO2作为全球变暖的主要驱动因子,其浓度从工业革命前的279 ppm持续攀升:1760—1960年间增长约50 ppm,1960—2020年增速翻倍,累计增加100~417 ppm(https://climate.nasa.gov)[1]。最新监测显示,2024年4月全球平均CO2浓度已达427 ppm(美国国家海洋和大气管理局,NOAA,2024),而联合国政府间气候变化专门委员会(Intergovernmental Panel on Climate Change,IPCC)预测21世纪末全球地表温度升高幅度将达2.0~3.7 ℃。这种变化将导致极端气候事件频发,对生态系统和农业生产构成严峻挑战[2]。
植物对大气CO2浓度及温度升高的响应至关重要,直接影响农业可持续性与全球生态稳定。植物响应气候变化的定量研究始于20世纪80年代,开放式空气CO2浓度增高系统(Free Air Carbon-dioxide Enrichment,FACE)的建立突破了传统气室的微气候干扰局限[3]。从美国布鲁克海文国家实验室(Brookhaven National Laboratory)FACE平台到中国首个稻–麦轮作FACE试验系统(无锡,2001年),该技术已揭示一些C3/C4作物在CO2升高下的光合适应机制与产量增益规律[4-5]。大气CO2浓度升高可提升叶片光合效率及水分利用效率,增加植物生物量及土壤有机质含量。研究表明,C3植物在CO2浓度升高条件下光合速率提升,生物量增幅约33%;与C3植物类似,CAM(景天酸代谢)植物在CO2富集下生物量增幅35%;C4植物的FACE响应相对较弱,生物量增幅仅10% 左右[6]。植物生长加速伴随出现“养分稀释”效应,CO2浓度升高使C3植物组织N含量普遍下降,Ca、K、Zn、Fe等25种关键矿质元素平均浓度降低8%[7-8]。
大气CO2浓度升高正重塑全球植物生长与养分循环的基本模式。然而,CAM植物,尤其是Cd/Zn超积累植物伴矿景天(Sedum plumbizincicola)在大气CO2浓度升高下的生长与矿质元素吸收机制的研究尚未有报道。有研究表明,东南景天(Sedum alfredii)在FACE条件下净光合速率与Cd/Zn富集量同步提升[9]。但CO2浓度升高可能通过营养元素“稀释效应”,引发复杂的生长和生理权衡[10]。植物如何在碳增益和养分限制间实现资源最优分配,其在不同土壤中的动态响应如何,这严重制约着CAM植物修复技术在应对气候变化时的精准调控。
伴矿景天作为景天科兼性CAM植物,具有独特的环境适应性。目前,FACE条件对伴矿景天的生长和养分元素吸收的影响研究尚未见报道。因此,本研究以常湿淋溶土(pH 5.5)、潜育水耕人为土(pH 6.5)、湿润雏形土(pH 7.5)3种土壤为对象,结合短期与长期FACE处理,初步开展FACE条件对不同土壤上伴矿景天生长及营养元素吸收的影响研究,旨在阐明土壤类型与CO2处理的交互效应,为应对全球气候变化下的低碳型植物修复技术研发,以及生态安全与农业可持续发展提供理论依据和技术支撑。
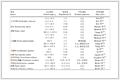
1 材料与方法 1.1 田间试验与样品采集试验于2024年8—11月在江苏省南京市江宁区淳化街道“土壤碳中和与气候变化适应研究”平台进行。该区属亚热带季风气候,年平均降水量1 073 mm,年极端最低气温–13.3 ℃,年极端最高气温40.4 ℃,平均无霜期为224 d。供试植物为伴矿景天,幼苗采自广东省韶关市仁化县董塘镇。本研究选取3类污染土壤:①常湿淋溶土(Perudic Luvisols,酸性土壤,pH 5.5),采集于贵州省贵阳市乌当区水田镇安多下寨,简称“WD”;②潜育水耕人为土(Hydragric Anthrosols,弱酸性土壤,pH 6.5),取自广东省韶关市仁化县董塘镇,简称“RH”;③湿润雏形土(Udic Cambisols,弱碱性土壤,pH 7.5),采自贵州省黔南布依族苗族自治州罗甸县罗沙乡翁定村,简称“LD”。供试土壤基本理化性质如表 1所示。
|
表 1 供试土壤基本理化性质 Table 1 Basic physicochemical properties of the tested soil |
盆栽试验设置两个CO2浓度处理:正常大气条件(CK,425 ppm)与FACE处理(FACE,625 ppm)。伴矿景天幼苗移栽后分别进行30 d(短期)与90 d(长期)FACE处理,每组处理重复3次。采用长15 cm、宽15 cm、高15 cm的塑料盆,每盆装入相当于烘干重2.5 kg的土壤。
短期试验时间为2024年8—9月,伴矿景天在FACE处理30 d后收获;长期试验时间为2024年9—11月,伴矿景天在处理90 d后收获。伴矿景天采收后,用去离子水多次冲洗地上部,冲洗干净后将叶片与茎分开并擦干,用精度为0.001 g的分析天平称量鲜物质量;之后将叶片与茎置于信封中放入烘箱,105 ℃杀青30 min,然后75 ℃烘干至恒重;记录生物量后,粉碎磨细,用于测定叶片和茎中重金属含量。
1.2 样品测定 1.2.1 生物量的测定用精度为0.01 cm的游标卡尺对伴矿景天鲜样进行植株高度和茎粗的测量,烘干后称量植株叶片和茎的干物质量。
1.2.2 样品消解与测定称取植物粉碎烘干后的样品0.50 g放入洗净并烘干的聚四氟乙烯消化罐中,然后在消化罐中加入8 mL硝酸(HNO3)和过氧化氢(H2O2)的混合溶液(体积比为3∶1,即HNO3为6 mL,H2O2为2 mL),之后将消化罐置于105 ℃烘箱中消化6 h后,取出消化罐并放在温度为180 ℃的电热板上进行赶酸操作,使酸蒸发至罐内溶液的剩余体积为1 mL左右;将剩余溶液转移至15 mL离心管中,用纯水反复多次冲洗消化罐内壁并转移到离心管中,定容到13 mL;将定容后的溶液经0.22 μm微孔滤膜过滤至10 mL离心管中,利用电感耦合等离子体发射光谱仪(ICP-OES,Avio 200,Perkin Elmer,美国)测定溶液中K、Ca、Mg、Fe、Mn、Zn和Cu浓度。
1.3 数据统计与分析数据采用Excel 2021软件进行处理,用SPSS 27.0软件进行独立样本t检验,并采用Graphpad Pism9.5进行图形绘制。
伴矿景天植株各器官(叶片、茎)的金属元素吸收量通过以下公式计算获得:金属元素吸收量(mg/plant)=金属元素含量(mg/g DW)×器官生物量(DW,g/plant)。
2 结果与分析 2.1 短期FACE处理对伴矿景天生物量的影响短期FACE处理(30 d,CO2浓度625 ppm)下,伴矿景天在潜育水耕人为土(RH)、常湿淋溶土(WD)和湿润雏形土(LD)3种土壤上的生长指标均呈上升趋势(表 2)。RH土壤,FACE处理组与CK组间伴矿景天叶和茎鲜物质量、株高、茎粗及干物质积累量(叶和茎干物质量)均无显著差异。而对于WD土壤,与CK组比较,FACE处理下株高、茎粗、叶鲜物质量、茎鲜物质量和叶干物质量分别显著提高38.2%、39.4%、250.7%、54.0% 和177.8%,但茎干物质量没有显著差异。LD土壤,FACE处理组植物茎鲜物质量、叶干物质量和茎干物质量均极显著高于CK组(P < 0.01),分别较CK提高93.6%、164.3% 和100%;叶鲜物质量和株高较CK组显著增加(P < 0.05);茎粗差异不显著。综上,短期FACE处理对伴矿景天生物量的促进效果具有土壤类型差异性,在常湿淋溶土(WD,酸性土壤)和湿润雏形土(LD,弱碱性土壤)上,FACE处理对伴矿景天生长的促进作用较强;在潜育水耕人为土(RH,弱酸性土壤)上对植物生长的促进作用最弱,其内在机制有待深入探究。
|
|
表 2 短期FACE处理对伴矿景天生物量的影响 Table 2 Effects of short-term FACE treatment on biomass of Sedum plumbizincicola |
长期FACE处理(90 d)下,各土壤伴矿景天的生长指标(茎、叶鲜物质量,株高,茎粗及干物质积累)仍普遍高于CK组(表 3),但增幅较短期处理有所降低。RH和WD土壤上,FACE处理所有指标与CK组均无显著差异。LD土壤上,株高、茎鲜物质量及茎干物质量均极显著高于CK(P < 0.01),分别较CK提高63.5%、118.6% 和154.5%。结合短期试验结果表明,FACE处理对伴矿景天早期生长的促进效应更明显,长期处理仅在弱碱性土壤(LD)上能维持部分指标的显著提升。
|
|
表 3 长期FACE处理对伴矿景天生物量的影响 Table 3 Effects of long-term FACE treatment on biomass of Sedum plumbizincicola |
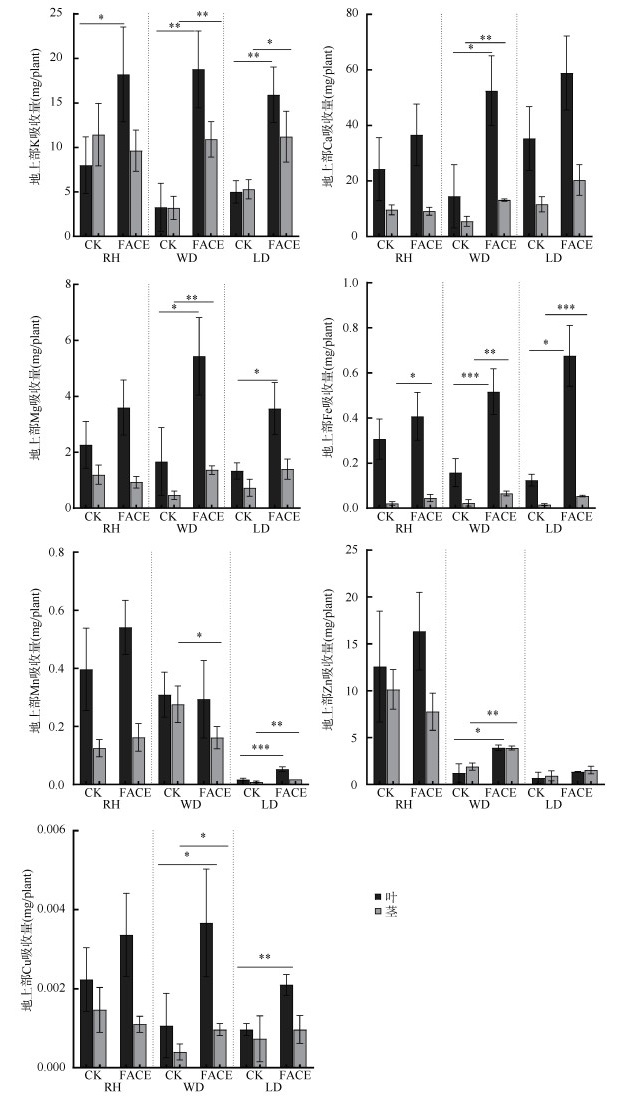
为探究短期FACE处理对伴矿景天金属元素吸收的影响,测定了不同土壤(RH、LD、WD)上生长的伴矿景天地上部K、Ca、Mg、Fe、Mn、Zn、Cu元素含量(表 4),并计算地上部金属元素吸收量(图 1)。结果表明,在3种土壤上,FACE处理下植株叶片的K、Fe和Cu元素含量均高于CK(表 4)。其中,RH、WD土壤中,FACE处理K元素含量分别是CK处理的1.54倍和1.24倍;而Mn和Zn元素含量均低于CK,其中,WD土壤中Mn元素含量显著降低54.6%,RH和LD土壤中Zn元素含量分别显著降低18.9% 和55.1%。另外,FACE处理下,伴矿景天叶片Mg元素含量在RH和WD土壤中降低,在LD土壤中升高;Ca元素含量则在LD和WD土壤中降低,RH土壤中升高;但差异均不显著。
|
|
表 4 短期FACE处理对伴矿景天茎叶金属元素含量的影响 Table 4 Effects of short-term FACE treatment on metal element concentrations in stems and leaves of Sedum plumbizincicola |
|
图 1 短期FACE处理对伴矿景天金属元素吸收量的影响 Fig. 1 Effects of short-term FACE treatment on metal element absorption amount in stems and leaves of Sedum plumbizincicola |
对于植株的茎杆部分,3种土壤中FACE处理K、Ca、Mg和Fe元素含量均高于CK(表 4)。其中,RH土壤中,FACE处理K、Ca、Mg、Fe元素含量分别是CK的1.17倍、1.17倍、9.56倍和2.07倍;WD土壤中,K、Ca、Fe元素含量分别是CK的1.35倍、1.20倍和1.89倍;LD土壤中,K元素含量比CK高0.19倍,Fe元素含量较CK提高1.02倍。对于Mn元素,则在WD土壤中,FACE处理比CK显著降低58.3%(P < 0.001)。在3种土壤中,与CK相比,FACE处理的Zn、Cu元素含量差异均不显著。
3种土壤上,短期FACE处理对元素吸收量也有显著影响(图 1)。WD土壤中,伴矿景天叶和茎的K、Ca、Mg、Fe、Zn、Cu吸收量分别较CK显著提高4.74倍、2.41倍,2.62倍、1.39倍,2.26倍、1.93倍,2.27倍、1.81倍,2.18倍、1.04倍,2.44倍、1.42倍;而茎秆Mn的吸收量则较CK显著降低了41.56%。RH土壤中,仅叶片K吸收量较CK提高1.28倍以及茎秆Fe吸收量较CK提高1.11倍(P < 0.05),其余重金属元素吸收量差异均不显著。LD土壤中,叶片和茎的K、Fe、Mn和Cu吸收量分别较CK提高2.18倍、1.11倍,4.43倍、2.38倍,2.04倍、1.01倍和1.17倍、0.32倍。以上结果表明:在3种土壤上,短期FACE处理(30 d)显著促进了伴矿景天对多种金属元素的吸收;其中,K、Ca、Mg和Fe元素的增幅最为突出。
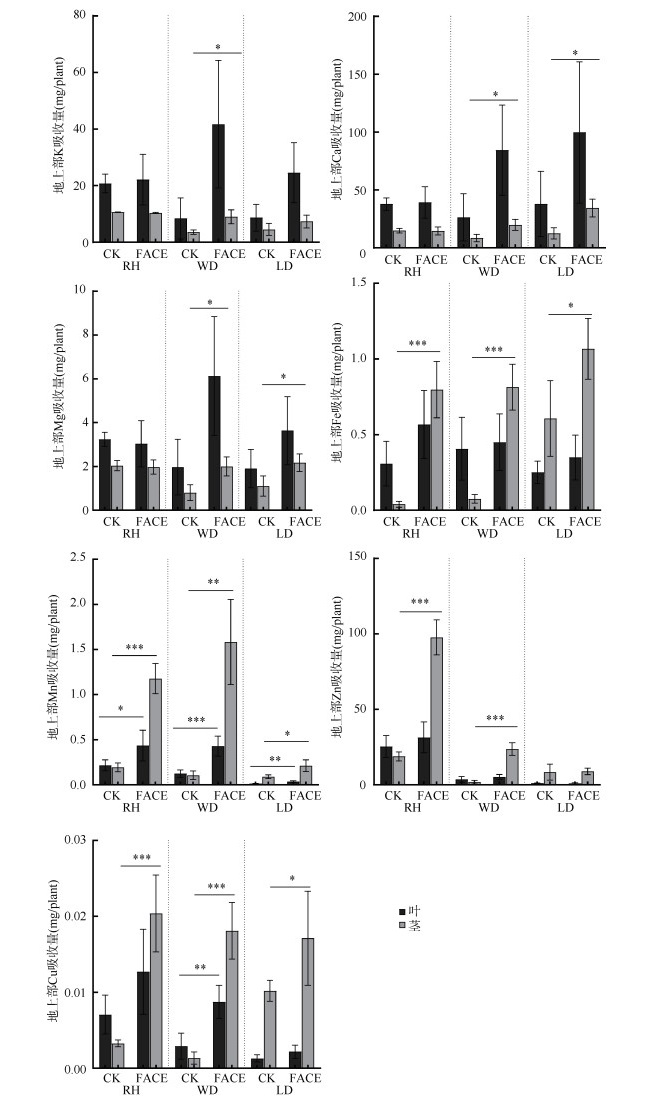
2.4 长期FACE处理对伴矿景天养分吸收的影响为阐明长期高CO2环境对伴矿景天金属元素吸收的影响,本研究测定了长期FACE条件(625 ppm,持续90 d)下3种典型污染土壤上植株地上部K、Ca、Mg、Fe、Mn、Zn、Cu等元素含量(表 5),并基于元素含量与干物质量的乘积计算器官特异性吸收量(图 2)。
|
|
表 5 长期FACE处理对伴矿景天茎叶金属元素含量的影响 Table 5 Effects of long-term FACE treatment on metal element concentrations in stems and leaves of Sedum plumbizincicola |
|
图 2 长期FACE处理对伴矿景天金属元素吸收量的影响 Fig. 2 Effects of long-term FACE treatment on metal element absorption amount in stems and leaves of Sedum plumbizincicola |
相较于短期处理(30 d),长期FACE处理(90 d)对金属元素吸收的促进作用显著减弱。长期FACE处理下,在RH土壤中,茎秆中Zn含量较CK降低92.5%(P < 0.001)。在WD土壤中,茎秆Mg含量提高11.7%,但是叶中Zn和Cu含量分别较CK降低46.8% 和62.4%。在LD土壤中,茎秆Mn含量提高114.4%,但叶片Mg含量较CK降低了51.0%(表 5)。
3种土壤中,仍是WD土壤FACE处理对伴矿景天金属元素吸收的促进效果更显著(图 2),相比CK,FACE处理伴矿景天茎的K、Ca、Mg、Fe、Mn、Zn、Cu吸收量分别提高1.53倍、1.32倍、1.50倍、9.81倍、13.83倍、12.42倍和12.62倍。RH土壤中,茎秆的Fe、Mn、Zn和Cu元素的吸收量均极显著高于CK(P < 0.001),分别提高19.02倍、5.08倍、4.18倍和5.21倍;叶片仅有Mn的吸收量比CK显著提高2.01倍(P < 0.05);K、Ca、Mg的吸收量与CK处理差异不显著。在LD土壤中,FACE处理各元素的吸收量均高于CK,茎秆Ca、Mg、Fe、Mn和Cu的吸收量分别较CK显著提高1.74倍、0.97倍、0.76倍、1.39倍和0.68倍(P < 0.05);叶片Mn的吸收量极显著高于CK,提高2.54倍(P < 0.01)。以上结果表明,相对短期高CO2处理,长期高CO2环境降低了伴矿景天对金属元素的吸收优势,但其吸收效率受土壤理化性质的影响。
3 讨论 3.1 FACE处理对伴矿景天生物量及金属元素吸收的影响本试验结果显示,短期FACE处理对伴矿景天生物量的提升效果更显著,长期处理下生物量提升幅度降低,仅LD土壤(弱碱性)维持部分显著差异,这与Purcell等[11]的研究结果相似,可能是植物逐渐适应高CO2浓度的结果。CO2作为植物光合作用的底物,其浓度的增减会对植物光合作用产生直接影响[12]。大气CO2浓度的增加,促使叶片光合作用加强、水分利用效率提高,并增加了植物生长、植被生物量及土壤有机质积累的潜力,从而将更多碳从大气转移到陆地生态系统,减缓气候变化[13]。例如,CO2浓度升高提高了CAM植物东南景天的净光合速率[9,14]。虽然高浓度CO2最初会促进植物的光合作用,但随着植物对CO2浓度增加逐渐产生光合适应的现象,这种促进作用会逐步消失,这可能是由于1, 5-二磷酸核酮糖羧化酶的羧化速度降低所致[6]。此外,长期处于高浓度CO2环境中的CAM植物的气孔导度逐渐降低,限制CO2的吸收,从而导致碳同化效率的增长逐渐趋于平缓[11]。同样,高浓度CO2下CAM植物碳同化产物的积累可能会超过其自身代谢和生长的需求,植物受到反馈信号后,抑制光合作用相关基因的表达,以降低碳同化效率[11]。
在金属元素吸收方面,本研究中短期FACE处理显著增加了伴矿景天对K、Ca、Mg等元素的吸收量,这可能是因为短期高浓度CO2处理通过增强蒸腾作用促进了这些金属元素的运输;长期FACE处理下元素的吸收优势减弱,且金属元素的器官积累模式发生改变,这可能与长期处理下土壤养分耗竭程度较高、气孔导度降低限制吸收效率,以及碳获取与营养元素吸收不平衡产生的稀释效应有关。大气CO2浓度升高不仅影响植物的生物量,而且影响植物组织的化学组成,对植物矿质元素的吸收、利用和分配产生显著影响,导致植物中矿质元素含量的显著变化[15-16]。除C、H、O外,其他大量及微量元素的变化趋势与生物量的增加往往呈相反趋势。研究表明,植物中N、P、K 3种主要营养元素的含量在FACE处理下分别下降了7%~15 %、1%~7.5% 和10 % 左右[15, 17-18]。FACE处理下大多数作物的营养水平也降低,特别是Zn和Fe元素,非豆科作物种子中的N和蛋白质含量降低[19-20]。这是CO2浓度升高导致植物碳获取增加与土壤中元素吸收不匹配,产生稀释效应的结果[21]。此外,当植物暴露于高CO2时,气孔导度显著降低导致蒸腾作用随之降低,因此根系吸收并运输到地上部分的矿质元素受到限制,导致作物籽粒中营养物质(如蛋白质、Fe、Zn)含量普遍较低[16, 22]。植物可能通过根系形态变化或生理活动调节来部分补偿营养元素吸收的不足。如高CO2浓度下Ca、Mg在黄瓜植株内浓度降低,此时Ca、Mg转运蛋白的表达上调[23];而Mn、Cu的器官重分配(茎 > 叶)则可能与长期CO2诱导的木质部运输调控有关。
3.2 土壤类型对FACE处理效应的影响本研究表明,伴矿景天对高CO2环境的生长响应具有显著的土壤差异性。短期处理(30 d)下,常湿淋溶土(WD,pH 5.5)与湿润雏形土(LD,pH 7.5)植株生物量显著提升(P < 0.05),而潜育水耕人为土(RH,pH 6.5)的FACE促进效应不显著;长期处理下,常湿淋溶土与潜育水耕人为土的生物量增益均消失,仅湿润雏形土还保持着一定的显著差异。伴矿景天生长的这种动态差异与土壤pH调控的矿质元素有效性及微生物代谢功能密切相关。具体而言:酸性土壤中,磷酸盐易与Fe、Al形成难溶沉淀(如AlPO4、FePO4),导致有效磷供给不足,K+因淋溶加剧而匮乏,同时高浓度Al3+、Mn2+的根系毒性进一步削弱CO2施肥效应[24];碱性土壤中,Fe、Zn因羟基化或碳酸盐结合(如Fe(OH)3、ZnCO3)有效性下降,且土壤反硝化作用导致氮素损失增加,制约植株对高CO2环境的生长响应[25, 26];而中性土壤因N、P、K等离子处于最佳溶解态范围,Ca、Mg通过稳定细胞膜系统促进碳-养分协同积累,从而维持长期CO2增益。此外,土壤pH通过塑造微生物功能间接影响植物响应,如酸性土壤中真菌介导的凋落物分解受抑,导致氮矿化速率降低[27];而弱碱性土壤中氨氧化菌活性虽较高,但反硝化导致的氮流失仍限制养分平衡[28]。综上,长期高CO2环境下,弱碱性土壤(LD)通过矿质元素有效性与微生物功能的协同调控,成为伴矿景天适应性生长的最适生境,使其保持稳定的CO2增益效应;而酸性(WD)或弱酸性(RH)土壤中,可能因元素有效性失衡与代谢抑制共同削弱了CO2的生理增益效应。
4 结论本研究揭示了土壤理化性质(尤其是pH)在高CO2环境与伴矿景天修复功能耦合系统中的核心调控作用。短期CO2升高(30 d)通过增强碳同化作用显著促进伴矿景天生物量与金属吸收,但其增益效应呈现显著的土壤差异性:酸性土壤因P、K有效性受限及Al、Mn毒害作用导致响应微弱,而弱碱性土壤因Ca、Mg的稳定效应使生物量提升最显著。长期暴露(90 d)下,CO2施肥效应普遍衰减,但诱导了金属器官分配的重编程策略,茎对Mn、Cu积累增加,这种适应性调整部分补偿了吸收总量优势的丧失,同时凸显了弱碱性土壤在维持碳-养分协同中的独特优势。未来植物修复技术的优化需重点关注长期CO2暴露下重金属转运相关蛋白的时空表达调控,以及土壤微生物介导的碳氮循环与金属生物有效性的互作机制,以提升植物修复技术的可持续性。
| [1] |
Ainsworth E A, Lemonnier P, Wedow J M. The influence of rising tropospheric carbon dioxide and ozone on plant productivity[J]. Plant Biology, 2020, 22(S1): 5-11 DOI:10.1111/plb.12973 (  0) |
| [2] |
IPCC. Global warming of 1.5 ℃: An IPCC special report[R]. Cambridge University Press, 2018, 1: 1–100.
( 0) |
| [3] |
Allen L H. Free-air CO2 enrichment field experiments: An historical overview[J]. Critical Reviews in Plant Sciences, 1992, 11(2): 121 DOI:10.1080/713608021 ( 0) |
| [4] |
Lewin K F, Hendrey G R, Kolber Z. Brookhaven national laboratory free-air carbon dioxide enrichment facility[J]. Critical Reviews in Plant Sciences, 1992, 11(2/3): 135-141 ( 0) |
| [5] |
胡君利, 褚海燕, 林先贵, 等. 大气CO2浓度增高对农田土壤硝化活性的影响[J]. 生态环境, 2005, 14(3): 329-332 ( 0) |
| [6] |
Drennan P M, Nobel P S. Responses of CAM species to increasing atmospheric CO2 concentrations[J]. Plant, Cell & Environment, 2000, 23(8): 767-781 ( 0) |
| [7] |
Loladze I. Hidden shift of the ionome of plants exposed to elevated CO2 depletes minerals at the base of human nutrition[J]. eLife, 2014, 3: e02245 DOI:10.7554/eLife.02245 ( 0) |
| [8] |
柴如山, 牛耀芳, 朱丽青, 等. 大气CO2浓度升高对农产品品质影响的研究进展[J]. 应用生态学报, 2011, 22(10): 2765-2775 ( 0) |
| [9] |
狄贞珍. 高浓度CO2对东南景天生长和镉积累的影响及机制研究[D]. 杭州: 浙江大学, 2012.
( 0) |
| [10] |
Ceusters J, Borland A M. Impacts of elevated CO2 on the growth and physiology of plants with crassulacean acid metabolism[M]//Lüttge U E, Beyschlag W, Büdel B, et al. Progress in Botany 72. Berlin, Heidelberg: Springer, 2011: 163–181.
( 0) |
| [11] |
Purcell C, Batke S P, Yiotis C, et al. Increasing stomatal conductance in response to rising atmospheric CO2[J]. Annals of Botany, 2018, 121(7): 1427 DOI:10.1093/aob/mcy023 ( 0) |
| [12] |
Jablonski L M, Wang X Z, Curtis P S. Plant reproduction under elevated CO2 conditions: A meta-analysis of reports on 79 crop and wild species[J]. New Phytologist, 2002, 156(1): 9-26 DOI:10.1046/j.1469-8137.2002.00494.x ( 0) |
| [13] |
Walker A P, De Kauwe M G, Bastos A, et al. Integrating the evidence for a terrestrial carbon sink caused by increasing atmospheric CO2[J]. New Phytologist, 2021, 229(5): 2413-2445 DOI:10.1111/nph.16866 ( 0) |
| [14] |
舒丽娜. 锌胁迫下CO2浓度升高对三种不同光合途径植物生长发育和锌积累的影响[D]. 武汉: 华中农业大学, 2010.
( 0) |
| [15] |
Dong J L, Gruda N, Lam S K, et al. Effects of elevated CO2 on nutritional quality of vegetables: A review[J]. Frontiers in Plant Science, 2018, 9: 924 DOI:10.3389/fpls.2018.00924 ( 0) |
| [16] |
Myers S S, Zanobetti A, Kloog I, et al. Increasing CO2 threatens human nutrition[J]. Nature, 2014, 510(7503): 139-142 DOI:10.1038/nature13179 ( 0) |
| [17] |
Deng Q, Hui D F, Luo Y Q, et al. Down-regulation of tissue N: P ratios in terrestrial plants by elevated CO2[J]. Ecology, 2015, 96(12): 3354-3362 DOI:10.1890/15-0217.1 ( 0) |
| [18] |
Sardans J, Grau O, Chen H Y H, et al. Changes in nutrient concentrations of leaves and roots in response to global change factors[J]. Global Change Biology, 2017, 23(9): 3849-3856 DOI:10.1111/gcb.13721 ( 0) |
| [19] |
Ainsworth E A, Long S P. 30 years of free-air carbon dioxide enrichment (FACE): What have we learned about future crop productivity and its potential for adaptation?[J]. Global Change Biology, 2021, 27(1): 27-49 DOI:10.1111/gcb.15375 ( 0) |
| [20] |
Weyant C, Brandeau M L, Burke M, et al. Anticipated burden and mitigation of carbon-dioxide-induced nutritional deficiencies and related diseases: A simulation modeling study[J]. PLoS Medicine, 2018, 15(7): e1002586 DOI:10.1371/journal.pmed.1002586 ( 0) |
| [21] |
Natali S M, Sañudo-Wilhelmy S A, Lerdau M T. Plant and soil mediation of elevated CO2 impacts on trace metals[J]. Ecosystems, 2009, 12(5): 715-727 DOI:10.1007/s10021-009-9251-7 ( 0) |
| [22] |
McGrath J M, Lobell D B. Reduction of transpiration and altered nutrient allocation contribute to nutrient decline of crops grown in elevated CO2 concentrations[J]. Plant, Cell & Environment, 2013, 36(3): 697-705 ( 0) |
| [23] |
Li X, Dong J L, Gruda N, et al. Does the short-term fluctuation of mineral element concentrations in the closed hydroponic experimental facilities affect the mineral concentrations in cucumber plants exposed to elevated CO2?[J]. Plant and Soil, 2021, 465(1/2): 125-141 ( 0) |
| [24] |
Kochian L V, Hoekenga O A, Piñeros M A. How do crop plants tolerate acid soils? mechanisms of aluminum tolerance and phosphorous efficiency[J]. Annual Review of Plant Biology, 2004, 55: 459-493 DOI:10.1146/annurev.arplant.55.031903.141655 ( 0) |
| [25] |
Ranieri A, Castagna A, Baldan B, et al. Iron deficiency differently affects peroxidase isoforms in sunflower[J]. Journal of Experimental Botany, 2001, 52(354): 25-35 DOI:10.1093/jexbot/52.354.25 ( 0) |
| [26] |
Fernandez C W, See C R. The pH influence on ectomycorrhizal nitrogen acquisition and decomposition[J]. New Phytologist, 2025, 246(3): 867-875 DOI:10.1111/nph.70021 ( 0) |
| [27] |
Rousk J, Bååth E, Brookes P C, et al. Soil bacterial and fungal communities across a pH gradient in an arable soil[J]. The ISME Journal, 2010, 4(10): 1340-1351 DOI:10.1038/ismej.2010.58 ( 0) |
| [28] |
Huang R, Wu Y C, Zhang J B, et al. Nitrification activity and putative ammonia-oxidizing Archaea in acidic red soils[J]. Journal of Soils and Sediments, 2012, 12(3): 420-428 DOI:10.1007/s11368-011-0450-4 ( 0) |
2. Institute of Soil Science, Chinese Academy of Sciences, Nanjing 211135, China;
3. University of Chinese Academy of Sciences, Nanjing, Nanjing 211135, China