 2026, Vol. 58


2. 中国科学院大学, 北京 100049;
3. 福建农林大学资源与环境学院, 福州 350002
蚯蚓表皮黏液是蚯蚓在运动、摄食和防御过程中分泌的一种富含有机物的胶状物质,在土壤生态系统中发挥着重要作用。黏液的主要组成成分包括多糖、蛋白质、氨基酸、有机酸和类黏液素等[1]。其中,多糖和蛋白质是微生物易降解的碳源,有机酸能调节土壤pH并促进矿物溶解,而类黏液素则有助于土壤团聚体的形成和稳定[2]。蚯蚓表皮黏液的分泌受多种因素调控,包括蚯蚓栖型(土壤生态类型)、土壤环境条件(湿度、pH、养分状况)和蚯蚓活动模式。表栖型蚯蚓,如赤子爱胜蚓(Eisenia fetida)生活在富含有机质的表层枯落物中,其黏液富含多糖和有机酸,能加速枯落物分解,提高土壤微生物活性;内栖型蚯蚓,如东方伊蚓(Metaphire guillelmi)主要生活在矿质土层,分泌的黏液具有较高的蛋白质和氨基酸含量,能够提高土壤团聚体稳定性,增强土壤碳持留能力[3];深栖型蚯蚓,如深掘蚓(Lumbricus terrestris)能构建垂直通道,其黏液富含黏多糖和腐殖质前体,能增强有机质向深层土壤的转移[4]。土壤环境因素同样影响蚯蚓黏液的组成。土壤湿度高时,蚯蚓黏液分泌增加,有利于形成稳定的微生物生物膜,加速有机碳矿化[5]。酸性土壤中,蚯蚓黏液的有机酸成分增加,促进矿物风化和养分释放。富含有机质的土壤可促使蚯蚓分泌更多碳源丰富的黏液,提高微生物活性[6]。
蚯蚓表皮黏液在土壤碳循环中起着关键作用,其不仅是土壤微生物群落的重要底物,还能通过物理、化学和生物途径调控土壤碳库的稳定性。研究表明,蚯蚓黏液能够提供易降解的碳源,快速激活土壤细菌和真菌,提高微生物生物量碳含量和酶活性[2]。蚯蚓活动可增加土壤β-葡萄糖苷酶、过氧化物酶等碳循环相关酶的活性,增强有机碳的分解与转化[1]。蚯蚓黏液还影响土壤碳稳定与团聚体形成。蚯蚓黏液中的黏多糖能促进土壤颗粒的胶结,提高水稳性团聚体的含量,从而减少土壤有机碳的流失[4]。在红壤地区,蚯蚓黏液与腐殖质结合可增强矿物结合态有机碳的积累,提高土壤碳固存能力[5]。蚯蚓在进食和爬行过程中,可将枯落物和有机碳转移至深层土壤,促进土壤碳的垂直分布,提高碳库稳定性[7]。此外,在农业系统中,蚯蚓活动可增强秸秆还田和有机肥施用的碳固定效应,减少CO2释放[8]。
蚯蚓表皮黏液不仅促进土壤碳循环,还在生物培肥和养分循环中发挥关键作用。研究表明,蚯蚓黏液富含溶磷有机酸(如柠檬酸、苹果酸),能溶解难溶性磷,提高磷有效性[5];能促进固氮微生物的活性,增加可利用氮的供应,提高作物氮吸收效率[2];能促进有益微生物的生长,如溶磷菌、固氮菌和纤维素分解菌,提高有机肥和绿肥的利用效率[8];可通过改变根际微生物群落,提高作物对养分的吸收能力[5]。此外,蚯蚓黏液还能增强团聚体稳定性,提高土壤持水性,为微生物活动提供良好环境[1];促进土壤通气性,优化根系生长环境,提高作物耐旱能力[7]。
综上可见,蚯蚓表皮黏液在土壤碳循环和生物培肥过程中起着重要作用,其组成成分及其在不同土壤环境和蚯蚓栖型下的分泌模式直接影响碳的分解、稳定与储存。通过促进微生物活性、增强土壤团聚体稳定性和提高养分循环效率,蚯蚓黏液为农业可持续发展提供了重要的生态学支撑。然而,目前有关蚯蚓黏液的前期研究仅主要关注了黏液的组成成分及其对土壤养分的潜在影响,并未深入剖析蚯蚓黏液介导土壤养分循环的作用机制,尤其是不同类型蚯蚓的黏液代谢在土壤碳固存方面发挥的功能。因此,本研究依托中国科学院红壤生态实验站试验平台,在生物引种试验地开展了不同栖型蚯蚓表皮黏液代谢对土壤碳代谢功能的影响及其机制研究。通过收集两种不同栖型蚯蚓的表皮黏液代谢物,利用代谢组学分析检测了黏液的组成成分,深入探讨了蚯蚓栖型对黏液组成和功能的影响,并进一步剖析了蚯蚓表皮黏液代谢物在土壤碳代谢过程中的作用,以为深入理解土壤生物在土壤生态系统碳循环中的作用机制提供科学依据。
1 材料与方法 1.1 田间试验设计和土壤样本采集田间试验在位于江西省鹰潭市的中国科学院红壤生态实验站(116°55′E,28°13′N)进行。该区属中亚热带季风气候,年平均气温17.8 ℃,年均降水量1 795 mm,50% 的降水主要集中在4—6月,年均蒸发量1 318 mm,无霜期261 d。试验土壤发育自第四纪红黏土,属黏化湿润富铁铝土(红壤),酸性强,有机质含量低,氮磷储存能力较弱。长期定位试验中生物有机培肥的试验小区每年施用一次化肥、有机肥、解磷细菌和线虫,其中化肥施用量为尿素153 kg/hm2、钙镁磷肥116 kg/hm2、氯化钾166 kg/hm2;有机肥为猪粪堆肥,施用量为11 250 kg/hm2(按干物质计),其养分含量平均为全氮13.6 g/kg、全磷2.67 g/kg、全钾1.51 g/kg。在生物有机培肥试验小区(2011年)基础上设置对照(CK)和添加蚯蚓(E)两个处理,每个处理4个平行。添加蚯蚓处理同时添加表栖蚯蚓(Duplodicodrilus sp.)和深栖蚯蚓(Metaphire californica),添加量均为60 g/m2,对照不添加蚯蚓。
2023年7月玉米收获前,分别在对照和添加蚯蚓处理的田间试验小区采集玉米根际土壤(0~20 cm),作为后续分析的土壤样本。采用“S”形取样法,随机选择10株植株,拔出后抖落表面土壤,收集根际土壤并混匀,装入无菌自封袋密封,并置于带干冰的采样箱中,在24 h内运回实验室。各处理样品过4 mm筛去除石块和植物细根后,均分为3部分:一部分经自然风干、过筛后用于土壤理化性质分析;一部分存于4 ℃冰箱并在一周内测定土壤酶活性;剩余部分存于−80 ℃冰箱用于土壤基因组总DNA提取与分析。
1.2 土壤理化性质测定和生物功能指标检测土壤理化性质测定指标及方法[9]如下:pH采用土水质量比1∶2.5浸提电位法测定;含水量(SMC)通过烘干法测定;有机碳(SOC)采用重铬酸钾外加热法测定;全氮(TN)使用凯氏定氮法测定;碱解氮(AN)通过碱解扩散法测定;全磷(TP)采用高氯酸–硫酸消解–钼锑抗比色法测定;有效磷(AP)采用碳酸氢钠提取–钼锑抗比色法测定;速效钾(AK)采用乙酸铵浸提–原子吸收分光光度法测定。
土壤碳代谢相关酶活性检测:①土壤中β-葡萄糖苷酶(β-glucosidase,BG)活性通过测定其催化p-硝基苯基-β-D-葡萄糖苷(pNP-β-D-glucoside)水解生成的p-硝基苯酚(pNP)的量来评估。称取1 g过2 mm筛风干土于50 mL离心管中,加入4 mL 0.1 mol/L pH 6.0的磷酸盐缓冲液混匀,再加入1 mL 5 mmol/L pNP-β-D-葡萄糖苷底物溶液,振荡混匀后在37 ℃恒温孵育1 h。反应结束后,加入1 mL 0.1 mol/L NaOH(或Na2CO3)终止反应,4 000 r/min离心5 min,取上清液在405 nm波长下测定吸光度,并通过pNP标准曲线计算酶活性(U/(g·h))[10]。②多酚氧化酶(polyphenol oxidase,PPO)活性通过测定其催化邻苯二酚(catechol)氧化生成醌类化合物的量来评估。称取1 g过2 mm筛风干土于50 mL离心管中,加入4 mL 0.1 mol/L pH 6.5的磷酸盐缓冲液混匀,再加入1 mL 25 mmol/L邻苯二酚溶液,振荡混匀后在30 ℃孵育2 h (或37 ℃孵育1 h)。之后,4 000 r/min离心5 min,取上清液在525 nm波长下测定吸光度,并通过醌类化合物标准曲线计算PPO活性(U/(g·h))[11]。试验过程需严格控制反应温度和时间,使用标准品(pNP和邻苯二酚)绘制标准曲线,以确保数据的准确性和可比性。
1.3 土壤宏基因组分析首先,按照DNA提取试剂盒的操作说明提取土壤样品的基因组DNA。提取完成后,使用1% 琼脂糖凝胶电泳检测DNA质量,并利用Covaris M220将DNA片段化至约450 bp。随后,进行PE文库构建:连接“Y”形接头,并通过磁珠筛选去除接头自连片段;采用PCR扩增以富集文库模板,并通过氢氧化钠变性生成单链DNA片段。所用试剂为TruSeqTM DNA Sample Prep Kit。接着,进行桥式PCR扩增。DNA片段的一端与芯片上的引物碱基互补固定,另一端随机结合邻近引物并固定,形成“桥(bridge)”结构,随后进行PCR扩增以生成DNA簇,并将扩增子线性化为单链DNA。该过程采用cBot Truseq PE Cluster Kit v3-cBot-HS试剂。然后,进行二代测序。加入经过修饰的DNA聚合酶及带有4种荧光标记的dNTP,每次循环仅合成一个碱基。通过激光扫描检测反应板表面的荧光信号,以读取每个模板序列的核苷酸种类。之后,通过化学方法去除荧光基团和终止基团,使DNA 3′端恢复黏性,并继续延伸下一个核苷酸。最终,统计每轮荧光信号以解析模板DNA序列。所用试剂为Truseq SBS Kit v3-HS(200 cycles)。数据分析从获取原始序列开始,首先进行去接头、质量剪切及去除污染等优化处理,随后,利用高质量序列进行拼接组装和基因预测,并对所得基因进行物种分类与功能注释,包括KEGG中碳代谢通路分析和碳代谢相关酶分析。
1.4 蚯蚓黏液收集与检测为了收集蚯蚓黏液,首先,从田间通过手捡法收集健康的成年蚯蚓,并使用去离子水清洗表面,以去除附着的土壤和杂质。随后,将蚯蚓转移至铺有湿润滤纸的培养皿(每个培养皿放置2条蚯蚓),在黑暗环境下清肠处理48 h,并每天更换2次滤纸,防止蚯蚓摄食自身排泄物。清空肠道后,再次用去离子水冲洗蚯蚓,并用吸水纸轻轻吸干其表面水分。随后,将蚯蚓转移至500 mL烧杯中(每个烧杯50条,总鲜重约200 g),在其表面均匀撒入10 g磨细的石英砂(粒径 < 0.2 mm),利用微刺激作用诱导蚯蚓分泌黏液,并在22 ℃的黑暗培养箱中培养4 h。然后,用300 mL去离子水分5次缓慢洗涤蚯蚓、烧杯及石英砂,每次轻轻搅拌,以促进黏液溶解于洗涤液中,并收集所有洗涤液。随后,通过无菌滤纸或0.45 μm滤膜过滤,去除砂粒和杂质,将过滤后的蚯蚓黏液溶液分装至无菌离心管,并立即置于–20 ℃冰箱中保存,以备后续分析。整个过程中严格使用去离子水,保持无菌操作,避免外源污染和微生物干扰,同时进行空白对照测定,以校正背景干扰,确保蚯蚓黏液提取的效率和质量。
蚯蚓黏液的代谢物分析遵循Faulkes等[12]的方法,采用液相色谱–质谱联用(LC-MS)技术进行非靶向代谢组学分析。首先,将蚯蚓黏液样品(100 mg)在液氮中研磨粉碎,并加入500 µL 80% 甲醇水溶液,充分混匀后置于冰浴中。随后,样品离心并收集上清液,引入LC-MS进行代谢物分析。数据文件导入CD3.1数据库检索软件进行处理,并设置峰提取参数。色谱分离后的馏分依次进入质谱仪,质谱仪对数据进行连续扫描,并生成总离子流图(TIC)。通过比对mzCloud、mzVault和MassList数据库对代谢物进行鉴定,并利用KEGG、HMDB和LipidMaps数据库进行功能和分类注释。数据处理方面,使用CD3.1软件对检测到的色谱峰进行积分,并通过空白样品去除背景离子干扰。最后,以总峰面积对原始定量结果进行标准化,并保留质量控制样品中变异系数小于30% 的代谢物,最终获得代谢物的鉴定及相对定量结果。
1.5 蚯蚓黏液添加室内培养试验蚯蚓黏液添加室内试验设置对照(T0,添加等量无菌水)、表栖蚯蚓黏液添加(Epi)和内栖蚯蚓黏液添加(End)3个处理。供试土壤采自田间试验CK处理小区0~20 cm表层,风干并过2 mm筛。供试蚯蚓黏液通过收集田间试验E处理小区表栖蚯蚓和内栖蚯蚓表皮黏液,并用无菌生理盐水稀释(1∶10)获得。试验时,称取等量土壤(100 g)分装于培养皿中,加无菌水保持土壤湿度在60% 田间持水量。蚯蚓黏液处理土壤均匀喷洒一定量黏液(2 mL/100 g土壤),对照土壤喷洒等量无菌水。所有样品在25 ℃恒温培养20 d,每5 d补水1次。培养结束后,分别测定土壤β-葡萄糖苷酶和多酚氧化酶活性。
1.6 数据统计与分析在R软件[13]中,使用LEfSe分析(LDA effect size)酶或代谢物丰度数据,将非参数的Kruskal-Wallis以及Wilcoxon秩和检验与线性判别分析(Linear discriminant analysis,LDA)效应量(Effect size)相结合,对所有分类单元丰度同时进行差异分析,寻找组间稳健的差异酶或代谢物。Pearson相关性分析用于评估变量间的线性关系,最小二乘回归拟合用于计算调整后的r值及P值,并结合单侧F检验和双侧t检验进行统计验证[14],统计分析程序为SPSS 24,P < 0.05表示有统计学显著差异[15]。
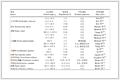
2 结果与分析 2.1 不同处理土壤理化性质通过检测田间试验CK和E处理土壤的理化性质(表 1),发现添加两种栖型蚯蚓后,土壤中有机碳和全氮含量分别显著提高了11.37% 和30.47% (P < 0.05)。
|
表 1 不同处理土壤的理化性质 Table 1 Soil physicochemical properties in different treatments |
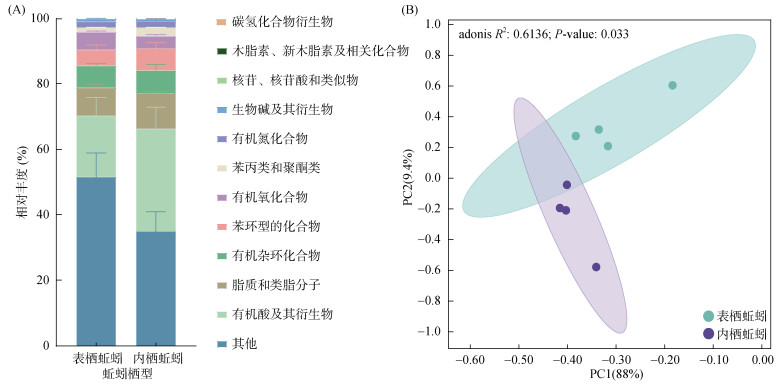
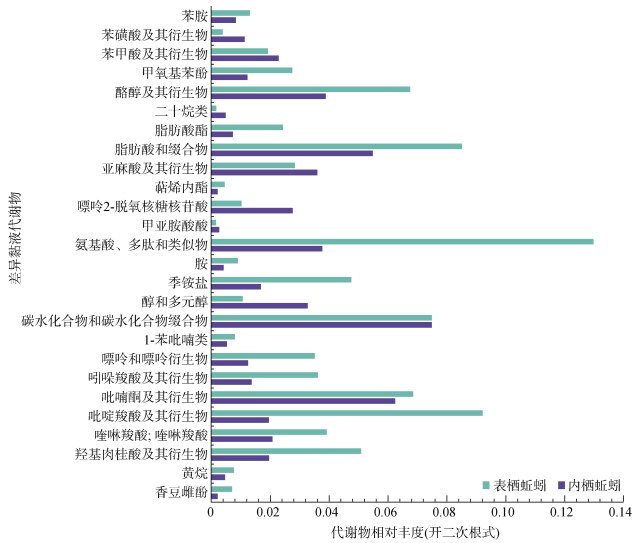
如图 1所示,表栖和内栖蚯蚓表皮分泌的黏液组分主要为11大类,包括有机酸及其衍生物(24.95%),脂质和类脂分子(9.75%),有机杂环化合物(6.80%),苯环型的化合物(5.81%),有机氧化合物(4.56%),苯丙类和聚酮类(1.98%),有机氮化合物(1.83%),生物碱及其衍生物(0.71%),核苷、核苷酸和类似物(0.19%),木脂素、新木脂素及相关化合物(0.01%)和碳氢化合物衍生物(2.29×10⁻⁵)。其中,表栖和内栖蚯蚓黏液组分均以有机酸及其衍生物(18.65% 和31.26%)、脂质和类脂分子(8.57% 和10.93%)、有机杂环化合物(6.70% 和6.89%)为主。表栖和内栖型蚯蚓分泌的黏液组成差异显著(P < 0.05,图 2),差异代谢物有26种,主要为氨基酸、多肽和类似物(表栖,1.69%;内栖,0.14%),吡啶羧酸及其衍生物(表栖,0.85%;内栖,0.04%),脂肪酸和缀合物(表栖,0.73%;内栖,0.30%)等。
|
(A:蚯蚓黏液组成和丰度;B:表栖蚯蚓和内栖蚯蚓表皮黏液组成的主成分分析) 图 1 表栖蚯蚓和内栖蚯蚓表皮黏液组成 Fig. 1 Compositions of epidermal mucous of epigeic and endogeic earthworms |
|
图 2 表栖蚯蚓和内栖蚯蚓表皮黏液中丰度差异显著的代谢物 Fig. 2 Metabolites with significant abundance difference in epidermal mucus between epigeic and endogeic earthworms |
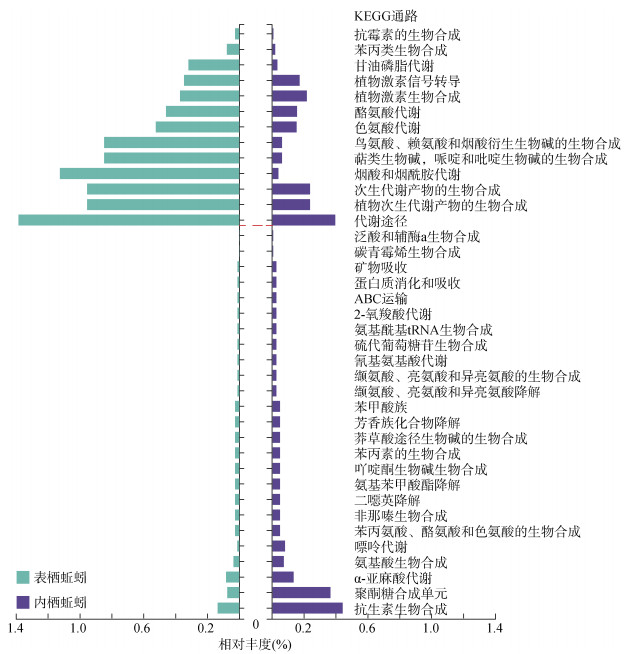
表栖蚯蚓和内栖蚯蚓表皮黏液中丰度差异显著的代谢物富集通路分析结果(图 3)显示,表栖蚯蚓表皮黏液中代谢途径(1.38%)、烟酸和烟酰胺代谢(1.12%)、次生代谢产物的生物合成(0.95%)和植物次生代谢产物的生物合成(0.95%)等代谢通路显著高于内栖蚯蚓(0.39%、0.04%、0.23% 和0.23%,P < 0.05)。内栖蚯蚓表皮黏液中抗生素生物合成(0.44%)、聚酮糖合成单元(0.36%)、α-亚麻酸代谢(0.13%)和氨基酸生物合成(0.08%)等代谢通路显著高于表栖蚯蚓(0.13%、0.07%、0.08% 和0.04%)。
|
图 3 表栖蚯蚓和内栖蚯蚓表皮黏液中丰度差异显著的代谢物富集通路(KEGG) Fig. 3 Significant difference in abundance of metabolite enrichment pathway (KEGG) in epidermal mucus between epigeic and endogeic earthworms |
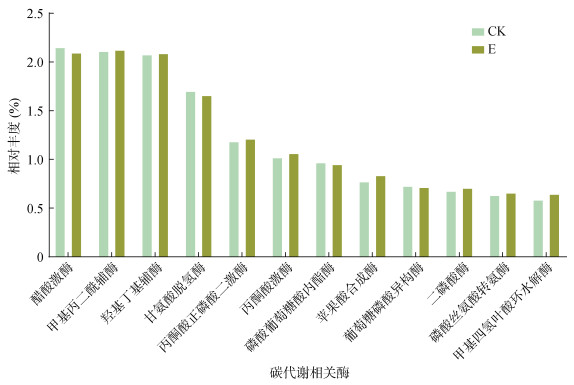
对CK和E处理田间试验土样分析发现,蚯蚓添加引起了土壤中12种碳代谢相关酶相对丰度的显著变化(图 4,P < 0.05))。相对于CK处理,E处理土壤中甲基丙二酰辅酶(2.13%)、羟基丁基辅酶(2.09%)、丙酮酸正磷酸二激酶(1.21%)、丙酮酸激酶(1.06%)、苹果酸合成酶(0.84%)、二磷酸酶(0.71%)、磷酸丝氨酸转氨酶(0.66%)和甲基四氢叶酸环水解酶(0.65%)相对丰度依次显著升高了0.59%,0.68%、2.24%、4.35%、8.38%、4.73%、3.70% 和10.25%,而土壤中甘氨酸脱氢酶(1.66%)、磷酸葡萄糖酸内酯酶(0.95%)、葡萄糖磷酸异构酶(0.72%)和醋酸激酶(2.95%)相对丰度依次显著降低了2.43%、2.00%、1.68% 和2.61%。
|
图 4 不同处理中丰度差异显著的土壤碳代谢相关酶的相对丰度 Fig. 4 Relative abundances of soil carbon metabolism-related enzymes with significant differences in abundance in different treatment groups |
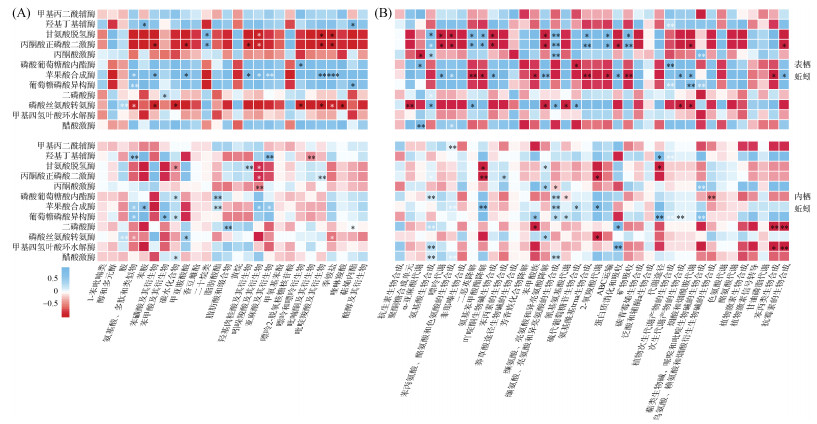
为了进一步探讨蚯蚓黏液与土壤碳循环功能的联系,对两种栖型蚯蚓黏液的差异代谢物与土壤碳代谢相关酶进行了相关性分析(图 5A)。结果表明,表栖和内栖蚯蚓黏液代谢物中的胺与土壤磷酸丝氨酸转氨酶显著(P < 0.05)正相关(表栖,r=0.35;内栖,r=0.32);氨基酸、多肽和类似物与磷酸丝氨酸转氨酶显著负相关(表栖,r= –0.98;内栖,r= –0.37),与苹果酸合成酶和葡萄糖磷酸异构酶显著正相关(表栖,r=0.69和0.97;内栖,r=0.62和0.52);吲哚羧酸及其衍生物与苹果酸合成酶显著正相关(表栖,r=0.99;内栖,r=0.77),与甘氨酸脱氢酶和丙酮酸正磷酸二激酶显著负相关(表栖,r= –0.97和–0.98;内栖,r= –0.72和–0.74);亚麻酸及其衍生物与苹果酸合成酶显著正相关(表栖,r=0.82;内栖,r =0.57)。此外,蚯蚓表皮黏液代谢物富集通路与土壤碳代谢相关酶的相关性分析表明(图 5B),氨基酸生物合成与丙酮酸正磷酸二激酶和二磷酸酶显著正相关(表栖,r=0.84和0.15;内栖,r=0.10和0.30);苯丙氨酸、酪氨酸和色氨酸的生物合成与苹果酸合成酶和醋酸激酶显著正相关(表栖,r=0.96和0.52;内栖,r=0.15和0.15);植物次生代谢产物的生物合成与葡萄糖磷酸异构酶和羟基丁基辅酶显著正相关(表栖,r=0.38和0.28;内栖,r=0.16和0.15);萜类生物碱、哌啶和吡啶生物碱的生物合成与丙酮酸激酶和葡萄糖磷酸异构酶显著正相关(表栖,r=0.91和0.53;内栖,r=0.66和0.78)。
|
(*、**分别表示达P < 0.05、P < 0.01显著水平) 图 5 土壤碳代谢相关酶与蚯蚓表皮黏液代谢物(A)和代谢物富集通路(B)丰度的相关性分析 Fig. 5 Correlation analysis of soil carbon metabolism-related enzymes with the abundance of epidermal mucus metabolites (A) and metabolic pathway enrichment (B) of earthworms |
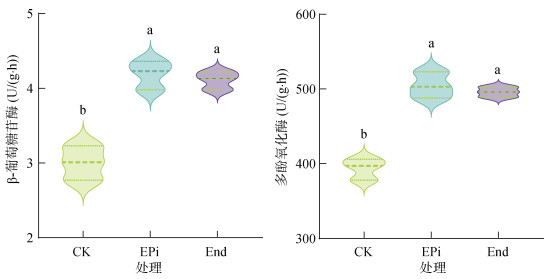
为了进一步验证蚯蚓黏液代谢物对土壤碳循环的影响,在室内进行了黏液添加试验。结果发现,无论是添加表栖蚯蚓黏液还是内栖蚯蚓黏液,均显著提高了土壤中β-葡萄糖苷酶(39.51% 和36.85%)和多酚氧化酶(94.20% 和90.87%)的活性(图 6)。
|
(T0,不添加蚯蚓黏液处理;Epi,添加表栖蚯蚓黏液处理;End,添加内栖蚯蚓黏液处理。图中不同小写字母表示处理间差异显著(P < 0.05)) 图 6 添加蚯蚓黏液对土壤碳代谢相关酶活性的影响 Fig. 6 Effects of adding earthworm mucus on soil carbohydrate enzyme activies |
本研究结果表明,表栖与内栖蚯蚓黏液在代谢组学组成上存在显著差异。作为蚯蚓与外界环境直接交互的重要介质,表皮黏液不仅反映蚯蚓生态行为与生理特征,还可能深刻影响土壤微生物群落结构、有机质分解过程以及碳氮循环等关键生态功能。代谢谱分析显示,两种栖型蚯蚓黏液的主要代谢物均包括有机酸及其衍生物、脂质及类脂分子,以及有机杂环化合物,但各类物质在不同蚯蚓中的相对丰度存在显著差异。其中,有机酸及其衍生物在内栖蚯蚓黏液中占比高达31.26%,显著高于表栖蚯蚓。考虑到有机酸可有效促进土壤中矿物养分的溶解,同时增强微生物对有机质的分解能力[16],这可能反映出内栖蚯蚓通过分泌较多有机酸来调节其生活环境中微生物群落结构,提升有机质的生物可利用性,从而满足其在深层土壤中较低资源环境下的营养需求[17]。此外,内栖蚯蚓黏液中脂质和类脂分子的相对丰度也高于表栖蚯蚓,提示其可能需分泌更具黏附性和屏障功能的黏液,以应对深层土壤中更大的摩擦力和水分散失[18]。相比之下,表栖蚯蚓生存于有机质丰富的表层土壤,其黏液成分或许更侧重于调节微生物活性与有机质转化速率,以适应动态变化的地表生态环境。尽管有机杂环化合物在两类蚯蚓黏液中的丰度相近,内栖蚯蚓略高于表栖蚯蚓,但其在微生物代谢调控及土壤–蚯蚓互作中的潜在作用仍值得关注[19]。差异代谢物分析表明,表栖蚯蚓黏液中氨基酸、多肽及其衍生物含量显著高于内栖蚯蚓,同时吡啶羧酸类、脂肪酸及其缀合物亦存在明显差异。氨基酸和多肽可直接作为微生物的碳氮源[20],其高水平的分泌可增强表层微生物活性,加快有机质的降解,进而加速表层土壤中养分的循环与释放。相对而言,内栖蚯蚓的黏液代谢特征更倾向于稳定深层土壤中的微生物生态系统,这与其低扰动性和对深层土壤环境的长期适应机制密切相关。综上所述,蚯蚓的生活类型在一定程度上决定了其黏液代谢组的组成差异,进而影响其与土壤微生物群落的互作关系。表栖蚯蚓黏液有利于促进表层土壤中有机质的快速分解,而内栖蚯蚓则可能通过分泌高比例的有机酸及其衍生物和脂质类分子,增强土壤微生物的功能稳定性与养分利用效率。
代谢通路富集分析结果显示,表栖蚯蚓黏液中多个代谢途径的相对丰度显著高于内栖蚯蚓,主要包括烟酸和烟酰胺代谢、次生代谢产物生物合成以及植物次生代谢产物生物合成等。这些代谢通路在土壤生态系统中具有重要生态功能。烟酸和烟酰胺代谢在调控微生物能量代谢过程中发挥关键作用,其在表栖蚯蚓黏液中的富集可增强土壤表层微生物的代谢活性,从而加速有机质的分解与养分循环[21-22]。相对而言,内栖蚯蚓黏液中则显著富集了抗生素生物合成、聚酮糖合成单元、α-亚麻酸代谢以及氨基酸生物合成等代谢通路,其丰度均高于表栖蚯蚓。其中,抗生素生物合成途径的增强可有助于内栖蚯蚓在地下土壤中调控微生物群落结构,抑制潜在病原菌的增殖[23],进而维持其肠道与周围土壤微生态的稳定性。此外,α-亚麻酸代谢的富集可能反映了内栖蚯蚓对低氧、闭塞土壤环境的生理适应策略[24]。上述差异性的代谢通路富集特征不仅为理解蚯蚓在土壤碳循环与微生物网络调控中的生态功能提供了新视角,也为靶向构建基于生物培肥的土壤改良策略提供了理论依据。
3.2 蚯蚓黏液代谢影响土壤碳循环本研究结果表明,表栖与内栖蚯蚓黏液中不同类型的代谢产物与关键土壤碳循环酶之间存在显著关联,且黏液添加试验验证了其在调控土壤碳循环中的潜在机制。胺类化合物与磷酸丝氨酸转氨酶之间的显著正相关性,表明蚯蚓黏液可通过提供氨基酸类前体化合物来调控土壤氨基酸代谢,从而影响碳素循环及微生物生长。该相关性在表栖与内栖蚯蚓中均表现一致,凸显了胺类代谢物在蚯蚓–土壤系统互作中的关键作用。表栖蚯蚓黏液中的氨基酸与多肽类代谢物与苹果酸合成酶及葡萄糖磷酸异构酶呈显著正相关,提示这些代谢物可能作为有机碳底物,促进三羧酸循环(TCA循环)和糖酵解等核心代谢通路,从而增强土壤微生物的碳利用能力与代谢活性[25]。内栖蚯蚓黏液中的吲哚羧酸及其衍生物与苹果酸合成酶也显著相关,提示芳香族代谢物亦可能通过调控有机酸代谢过程,参与碳转化机制[26]。本研究中,无论来源于表栖还是内栖蚯蚓,黏液处理均显著提升了β-葡萄糖苷酶与多酚氧化酶的活性。前者在纤维素分解和碳水化合物转化中发挥关键作用,其活性增强表明土壤有机碳分解速率的提升,从而加快微生物对有机质的利用;后者则参与木质素及腐殖质等难降解有机物的分解,促进难降解碳库向可利用碳源转化,提升了土壤有机碳的积累与循环效率[27-28]。综上,蚯蚓黏液不仅富含多种功能性代谢物,还显著增强了土壤碳循环相关酶的表达与活性,可能通过提供底物、调控微生物代谢通路等机制,促进土壤有机碳的生物转化与高效利用。这些发现拓展了对蚯蚓在土壤碳循环过程中的生态功能的理解,并为提升土壤碳利用效率与优化农业土壤管理策略提供了理论支撑。
4 结论不同栖型蚯蚓黏液在氨基酸合成、植物次生代谢产物合成等功能通路上呈现出明显的分化特征,反映其黏液组分对微生物功能调控的差异性。蚯蚓黏液显著提升了土壤中碳代谢关键酶苹果酸合成酶、磷酸丝氨酸转氨酶的相对丰度,以及β-葡萄糖苷酶和多酚氧化酶的活性,从而显著增强了土壤中有机碳的积累与转化能力。因此,蚯蚓黏液可通过调节土壤微生物群落功能和关键酶活性,介导其生态功能的实现。本研究为深入理解蚯蚓调控土壤碳循环的生物化学机制提供了新的视角,并为红壤生态系统中实现生物培肥与固碳功能提供了理论依据。
| [1] |
Li Y X, Feng S Y, Wang L, et al. Improvement and stability of soil organic carbon: The effect of earthworm mucus organo-mineral associations with montmorillonite and hematite[J]. Sustainability, 2024, 16(13): 5458 DOI:10.3390/su16135458 (  0) |
| [2] |
Singh A, Singh G S. Is earthworm a protagonist or an antagonist in greenhouse gas (GHG) emissions from the soil?[J]. International Journal of Environmental Science and Technology, 2019, 16(2): 1145-1158 DOI:10.1007/s13762-018-1922-5 ( 0) |
| [3] |
Scheu S. Effects of earthworms on plant growth: Patterns and perspectives The 7th international symposium on earthworm ecology·Cardiff · Wales · 2002[J]. Pedobiologia, 2003, 47(5/6): 846-856 ( 0) |
| [4] |
Adhikari K, Hartemink A E. Linking soils to ecosystem services—a global review[J]. Geoderma, 2016, 262: 101-111 DOI:10.1016/j.geoderma.2015.08.009 ( 0) |
| [5] |
Aira M, Monroy F, Domínguez J. Eisenia fetida (Oligochaeta: Lumbricidae) modifies the structure and physiological capabilities of microbial communities improving carbon mineralization during vermicomposting of pig manure[J]. Microbial Ecology, 2007, 54(4): 662-671 DOI:10.1007/s00248-007-9223-4 ( 0) |
| [6] |
Szlavecz K, Chang C H, Bernard M J, et al. Litter quality, dispersal and invasion drive earthworm community dynamics and forest soil development[J]. Oecologia, 2018, 188(1): 237-250 DOI:10.1007/s00442-018-4205-4 ( 0) |
| [7] |
Don A, Steinberg B, Schöning I, et al. Organic carbon sequestration in earthworm burrows[J]. Soil Biology and Biochemistry, 2008, 40(7): 1803-1812 DOI:10.1016/j.soilbio.2008.03.003 ( 0) |
| [8] |
Bhadauria T, Saxena K G. Role of earthworms in soil fertility maintenance through the production of biogenic structures[J]. Applied and Environmental Soil Science, 2010, 2010: 816073 ( 0) |
| [9] |
鲁如坤
. 土壤农业化学分析方法[M].
中国农业科学技术出版社, 北京, 2000
( 0) |
| [10] |
王彬彬, 林启美, 陈源泉, 等. 微池板比色法在多酚氧化酶和β葡萄糖苷酶研究中的应用[J]. 土壤学报, 2012, 49(4): 773-779 ( 0) |
| [11] |
Queiroz C, Mendes Lopes M L, Fialho E, et al. Polyphenol oxidase: Characteristics and mechanisms of browning control[J]. Food Reviews International, 2008, 24(4): 361-375 DOI:10.1080/87559120802089332 ( 0) |
| [12] |
Faulkes C G, Eykyn T R, Miljkovic J L, et al. Naked mole-rats have distinctive cardiometabolic and genetic adaptations to their underground low-oxygen lifestyles[J]. Nature Communications, 2024, 15: 2204 DOI:10.1038/s41467-024-46470-x ( 0) |
| [13] |
Wickham H. ggplot2[J]. WIREs Computational Statistics, 2011, 3(2): 180-185 DOI:10.1002/wics.147 ( 0) |
| [14] |
Benesty J, Chen J D, Huang Y T, et al. Pearson correlation coefficient[M]//Noise Reduction in Speech Processing. Berlin, Heidelberg: Springer, 2009: 1–4.
( 0) |
| [15] |
DeCoster J. Data analysis in SPSS[M]. Academia, 2004. https://www.academia.edu/15281435/Data_analysis_in_SPSS.
( 0) |
| [16] |
Zhu G F, Chao H Z, Sun M M, et al. Toxicity sharing model of earthworm intestinal microbiome reveals shared functional genes are more powerful than species in resisting pesticide stress[J]. Journal of Hazardous Materials, 2023, 446: 130646 DOI:10.1016/j.jhazmat.2022.130646 ( 0) |
| [17] |
Zhu G F, Schmidt O, Luan L, et al. Bacterial keystone taxa regulate carbon metabolism in the earthworm gut[J]. Microbiology Spectrum, 2022, 10(5): e01081-e01022 ( 0) |
| [18] |
Wang X Y, Liang C, Dini-Andreote F, et al. Impacts of trophic interactions on carbon accrual in soils[J]. Trends in Microbiology, 2025, 33(3): 277-284 DOI:10.1016/j.tim.2024.10.009 ( 0) |
| [19] |
Traoré S, Guébré D, Hien E, et al. Nutrient cycling and microbial responses to termite and earthworm activity in soils amended with woody residues in the Sudano-Sahel[J]. European Journal of Soil Biology, 2022, 109: 103381 DOI:10.1016/j.ejsobi.2021.103381 ( 0) |
| [20] |
孙月, 潘彦硕, 曾军, 等. 木质素与蚯蚓对黑麦草生物量及土壤微生物群落的影响[J]. 土壤, 2021, 53(2): 313-320 DOI:10.13758/j.cnki.tr.2021.02.014 ( 0) |
| [21] |
Guhra T, Stolze K, Schweizer S, et al. Earthworm mucus contributes to the formation of organo-mineral associations in soil[J]. Soil Biology and Biochemistry, 2020, 145: 107785 DOI:10.1016/j.soilbio.2020.107785 ( 0) |
| [22] |
Guhra T, Wonneberger A, Stolze K, et al. The functional role of earthworm mucus during aggregation[J]. Journal of Plant Nutrition and Soil Science, 2024, 187(1): 63-76 DOI:10.1002/jpln.202300100 ( 0) |
| [23] |
Hussain M, Liaqat I, Hanif U, et al. Medicinal perspective of antibacterial bioactive agents in earthworms (clitellata, Annelida): A comprehensive review[J]. Journal of Oleo Science, 2022, 71(4): 563-573 DOI:10.5650/jos.ess21379 ( 0) |
| [24] |
Clause J, Forey E, Eisenhauer N, et al. Seed selection by earthworms: Chemical seed properties matter more than morphological traits[J]. Plant and Soil, 2017, 413(1/2): 97-110 ( 0) |
| [25] |
Cao J, Wang Q, Lei Y M, et al. Accumulation of microplastics and Tcep pollutants in agricultural soil: Exploring the links between metabolites and gut microbiota in earthworm homeostasis[J]. Environment International, 2022, 170: 107590 DOI:10.1016/j.envint.2022.107590 ( 0) |
| [26] |
关强, 蒲瑶瑶, 张欣, 等. 长期施肥对水稻根系有机酸分泌和土壤有机碳组分的影响[J]. 土壤, 2018, 50(1): 115-121 DOI:10.13758/j.cnki.tr.2018.01.016 ( 0) |
| [27] |
刘魏魏, 尹睿, 林先贵, 等. 生物表面活性剂强化微生物修复多环芳烃污染土壤的初探[J]. 土壤学报, 2010, 47(6): 1118-1125 ( 0) |
| [28] |
Wang S, Wang N, Xu J P, et al. Contribution of microbial residues obtained from lignin and cellulose on humus formation[J]. Sustainability, 2019, 11(17): 4777 DOI:10.3390/su11174777 ( 0) |
2. University of Chinese Academy of Sciences, Beijing 100049, China;
3. College of Resources and Environment, Fujian Agriculture and Forestry University, Fuzhou 350002, China