 2026, Vol. 58


2. 贵州师范大学喀斯特研究院/国家喀斯特石漠化防治工程技术研究中心, 贵阳 550025;
3. 贵州省林业调查规划院, 贵阳 550003
土壤是一个极其复杂的生态系统,受母岩、生物、地形、气候等多种因素影响。作为土壤生态系统的核心生物组分,真菌、细菌、放线菌及藻类等微生物类群不仅参与土壤有机质的分解和矿化作用,还促进了养分循环[1],显著提升土壤养分生物有效性,进而提高植物营养吸收效率。此外,土壤作为地球表层系统的核心界面,通过与大气圈、岩石圈、生物圈及水圈等关键圈层发生复杂的交互作用,其所孕育的微生物是地球生态系统的重要组成部分,微生物群落结构和功能在土壤肥力形成与维持、有机质分解和养分循环等方面发挥着重要作用[2]。土壤微生物能够直接影响碳、氮、磷等有效养分的循环和流通[3]。不同岩性发育的土壤,由于其成土过程和自身养分、水分、透水性等理化性质的差异,尤其是不同母岩类型所提供的基质各异,影响土壤的有效养分含量,进而对土壤微生物群落产生深远影响。
土壤微生物作为调控有效养分和植物生长的关键生物因子[4],通过矿化作用、养分循环等过程,维持生态系统功能,其相关作用机理已成为土壤微生物生态学的前沿研究领域。有研究表明,岩石的理化性质影响土壤微生物种类,而土壤微生物又影响其有效养分的提升[5],揭示土壤微生物和有效养分之间存在耦合关系。目前,学者们以顶坛花椒为对象,围绕其与土壤的相互关系开展研究,主要涉及叶片功能性状[6]、土壤养分对微生物的响应[7]、果实品质[8]等方面。然而,针对不同岩性发育的土壤,其微生物群落特征及对有效养分的响应,尚缺乏系统研究。
我国西南地区独特的地质背景与水文结构,使喀斯特地貌发育典型,进而塑造出极为脆弱的生态环境[9]。在此过程中,受碳酸盐岩基质及特殊水文地质条件的影响,该区域喀斯特生境呈现出裸岩覆盖率居高不下、土层分布浅薄且缺乏连续性、土壤环境普遍具有高pH与高钙镁含量的特性,而氮(N)、磷(P)等关键营养物质的有效供给水平却处于较低利用水平[10]。值得注意的是,作为区域代表性土壤类型,石灰土与黄壤约占贵州省土壤总面积的83%[11]。为协同生态修复与经济发展,贞丰县和关岭县在石漠化连片地区,大规模种植特色乡土植物顶坛花椒(Zanthoxylum planispinum var.dingtanensis)。该物种在喀斯特生境中演化出独特的喜钙和耐旱习性[12],并且还具有抗病力强、隐芽寿命长、能在贫瘠土壤生长等特点[13]。其养分供应主要来源于基岩风化过程,不同岩性的矿物会根据其脆弱性进行化学和机械分解,将营养物质释放到土壤中[14],进而形成不同的微生物群落,促进植物吸收养分。顶坛花椒作为贵州喀斯特区经济价值较高的先锋树种,用于石漠化治理和土壤生态系统修复,被认为是典型石质荒漠化地区适宜生态恢复的树种[15],同时也被认为是石漠化山区生态恢复过程中优先考虑的植被类型[16]。此外,它还通过调控土壤有机质的矿化过程,影响生态与农业可持续发展,有助于土壤养分科学管理和控制全球气候变暖。
土壤作为陆地生态系统的核心生物地球化学营养库[17],其养分赋存特征与地球化学循环过程,制约着生态系统的结构与功能。岩性作为成土过程的物质基础,通过调控矿物风化和元素释放通量,为植物提供大量营养元素[18]。然而,在岩性背景差异显著的生态系统中,有效养分对土壤微生物的响应机制仍存在诸多不确定性。基于此,通过选取不同母岩发育的土壤,测定其速效养分和微生物群落多样性等指标,旨在阐明不同母岩发育土壤中微生物群落的差异及其对土壤有效养分的响应规律,助力顶坛花椒高效培育。
1 材料与方法 1.1 样地概况研究区位于贵州省花江示范区,属典型的喀斯特地貌,地势西高东低,最高海拔1 473 m,最低海拔530 m。该区地处中亚热带季风湿润气候,年均降水量1 100 mm,水热同季;光热资源丰富,年均气温18.4 ℃,极端最高、最低气温分别为32.4、6.6 ℃,无霜期288 d。成土母质主要为白云岩、石灰岩和砂页岩,土壤类型以石灰土和黄壤为主。该区石漠化严重,植被覆盖率低,基岩裸露率为50%~80%,是贵州省石漠化发育较为严重的地区之一。自1992年起,当地开始大规模种植顶坛花椒,促进了生态环境修复和石漠化治理,同时还有力支撑经济社会发展,已成为石漠化治理的优势树种。
1.2 样地设置与样品采集本试验以不同母岩发育的土壤作为研究对象,各设置3个样地(表 1)。于2024年3月采集土壤样品,此时顶坛花椒处于盛花期,土壤养分含量显著影响顶坛花椒的产量与品质。在每个样地选定生长状况与地径相近的植株,距树干30~50 cm范围内,尽量避免施肥的影响,按20 cm土层深度采集土壤样品。共9个样本(3个样地×3个样方),每份样品约450 g,所有样品人工去除石块及动植物残体。土样分为两份,一份迅速低温冷藏后用于提取土壤DNA;另一份自然风干,用于测定土壤有机碳、有效磷、速效钾、pH和交换性钙。由于研究区属喀斯特高原峡谷,土体破碎不连续,加之青壮年外出务工导致劳动力匮乏,“以剪代采”的采摘模式导致氮肥需求量大,因而种植过程中对高氮化肥的需求量较大。然而,区内10月至次年5月降雨量≈0,导致氮大量富余,后期枝条旺长,表明氮素受耕作制度影响较大,因此该研究未分析土壤微生物对有效氮的响应[19]。
|
表 1 各样地基本概况 Table 1 Basic information of sample plots |
土壤理化性质的测定参照《土壤农化分析》[20],pH采用电位法测定,有机碳采用重铬酸钾氧化–外加热法测定,速效钾采用酸熔法和中性乙酸铵浸提–火焰光度计法测定,有效磷采用酸熔法和盐酸–硫酸浸提法测定,交换性钙采用原子吸收分光光度法测定。
1.4 DNA提取和高通量测序对于各种不同来源的微生物组样本,适合采用总DNA提取方法,利用Nanodrop对DNA进行定量,并通过1.2% 琼脂糖凝胶电泳检测DNA提取质量。根据序列中的保守区域设计相应引物,并添加样本特异性Barcode序列,对细菌16S rRNA基因V3~V4区域进行扩增,引物为338F(ACTCCTACGGGAG GCAGCA)和806R(GGACTACHVGGGTWTCTAAT);同时,对真菌ITS区域进行扩增,引物为ITS1(GGAA GTAAAAGTCGTAACAAGG) 和ITS2(GCTGCGTT CTTCATCGATGC)。随后,利用磁珠(Vazyme VAHTSTM DNA Clean Beads)进行扩增产物纯化回收,并应用Quant-iT PicoGreen dsDNA Assay Kit在Microplate reader(BioTek,FLx800)上进行荧光定量。之后,采用Illumina公司的TruSeq Nano DNA LT Library Prep Kit制备测序文库,并上机进行DNA的高通量测序。
1.5 数据处理与统计分析采用Excel 2020对数据进行初步整理,使用SPSS 22.0对土壤化学性状和微生物群落多样性指数进行单因素方差分析。通过主坐标分析(Principal coordinate analysis,PCoA)和非度量多维尺度分析(Nonmetric multidimensional scaling,NMDS)获得样本的二维散点图,比较每组3个重复样本之间的差异性;利用Canoco 5.0对土壤优势菌门和土壤理化性质进行冗余分析。数据以平均值±标准差表示,显著性水平设为P<0.05和P<0.01。
2 结果与分析 2.1 不同岩性发育土壤的化学性质土壤中有效养分含量随岩性不同而表现出差异。与石灰岩相比,白云岩与砂页岩发育土壤的有机碳、速效钾、有效磷、交换性钙含量均下降,其中,有效磷含量分别显著降低14.71、14.39 mg/kg,但三者的速效钾含量差异不显著。对于白云岩,其发育土壤的有机碳和交换性钙含量均与石灰岩和砂页岩发育土壤差异显著,其有机碳含量比砂页岩发育土壤显著提高10.01 g/kg,但比石灰岩发育土壤显著降低2.94 g/kg;交换性钙含量则分别比石灰岩和砂页岩发育土壤显著降低15.11 cmol/L和9.82 cmol/L。
|
|
表 2 不同岩性发育土壤的化学性质 Table 2 Soil chemical properties under different lithologies |
α多样性反映群落的物种丰富度和多样性,其中Chao1指数反映微生物群落丰富度,Shannon和Simpson指数反映微生物群落多样性。对于细菌而言,白云岩和石灰岩的α多样性指数低于砂页岩,且总体表现为砂页岩>白云岩>石灰岩(表 3);除石灰岩Chao1指数显著低于白云岩和砂页岩外,不同岩性间土壤细菌α多样性差异不显著。
|
|
表 3 岩性对土壤细菌、真菌α多样性的影响 Table 3 Effects of lithology on α-diversity of soil bacteria and fungi |
对于真菌而言,不同岩性土壤真菌α多样性无显著差异。但总体来说,Chao1指数表现为白云岩>石灰岩>砂页岩,说明白云岩发育的土壤更有利于提高真菌群落的丰富度;Shannon和Simpson指数表现为石灰岩>白云岩>砂页岩,说明相对于其他岩性,石灰岩发育的土壤更有利于真菌物种多样性的提升。
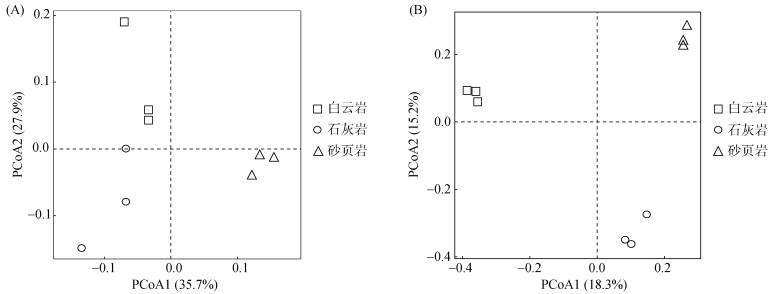
2.2.2 不同岩性发育土壤微生物群落的聚类分析基于Bray-Curtis距离的UPGMA聚类算法对不同样品间群落组成差异进行层级聚类分析,结果表明岩性显著影响顶坛花椒人工林的土壤微生物群落。如图 1所示,细菌群落结构第1主成分和第2主成分的解释量分别为35.7% 和27.9%,两者的总贡献率为63.6%;真菌群落结构第1和第2主成分的解释量分别为18.3% 和15.2%,两者的总贡献率为33.5%。进一步Adonis差异分析表明,不同岩性发育的土壤中细菌(R2=0. 331 7,P=0. 005)和真菌(R2=0. 335 1,P= 0.003)群落组成存在显著差异。并且白云岩、石灰岩和砂页岩各样本组间分布距离较远,且均无重叠。综上,在不同岩性发育的土壤中,微生物群落的组成差异显著,且样本在空间上呈离散分布,表明受到岩性支配较强。
|
图 1 不同岩性发育土壤细菌(A)和真菌(B)群落组成PCoA分析 Fig. 1 PCoA analysis of bacterial (A) and fungal (B) community compositions in soils derived from different lithologies |
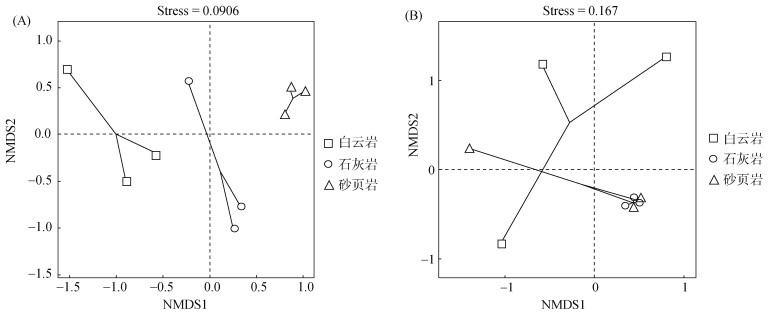
对各岩性发育土壤微生物群落进行NMDS分析(图 2),在真菌群落中,石灰岩与砂页岩样本相互重叠,表明两组微生物群落结构无明显差异,但不同岩性的细菌群落样点分布较散且距离较大,也说明了岩性对土壤细菌群落结构有显著的影响。综上,不同岩性的土壤微生物群落结构具有显著差异,表明岩性是影响土壤微生物群落结构的重要因素。
|
图 2 不同岩性发育土壤细菌(A)和真菌(B)群落的NMDS分析 Fig. 2 NMDS analysis of bacterial (A) and fungal (B) communities in soils derived from different lithologies |
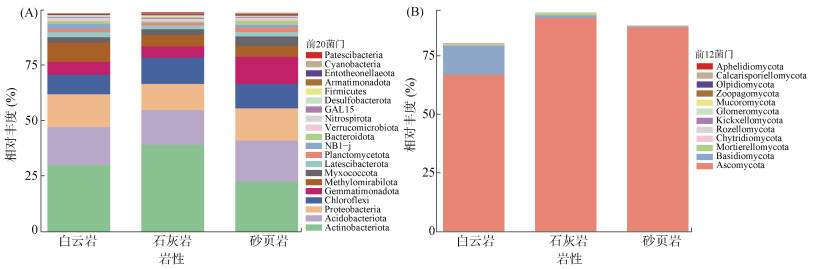
土壤细菌隶属于38门、122纲、284目、461科、908属,优势菌门主要为放线菌门(Actinobacteriota)、酸杆菌门(Acidobacterioa)、变形菌门(Proteobacteria)、绿弯菌门(Chioroflexi)、芽单胞菌门(Gemmatimonadota)、Methylomirabilota(图 3A)。上述6个门的细菌OTUs数分别占白云岩、石灰岩、砂页岩发育土壤细菌OTUs总数量的86.58%、89.65%、84.94%。其中放线菌的相对丰度最高,其OTUs数量分别占白云岩、石灰岩、砂页岩3组土壤细菌总OTUs数量的30.55%、39.61%、22.75%,而酸杆菌次之。芽单胞菌在砂页岩的相对丰度显著高于白云岩和石灰岩,酸杆菌门相对丰度则为石灰岩显著高于白云岩和砂页岩。
|
图 3 门水平的土壤细菌(A)和真菌(B)群落组成 Fig. 3 Compositions of soil bacterial (A) and fungal (B) communities at phylum level |
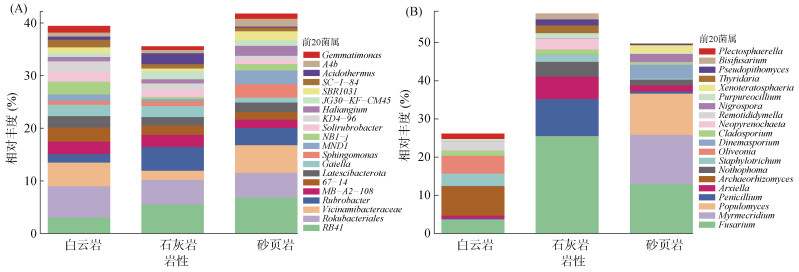
在属水平上,相对丰度>3%的优势细菌属主要有RB41(7.69%~16.36%)、Rokubacteriales (11.26%~ 15.14%)、Vicinamibacteraceae(4.85%~12.59%)、喜木聚糖红色杆形菌属(Rubrobacter)(4.05%~12.74%)、MB-A2-108(3.78%~6.72%)(图 4A)。相较于白云岩和砂页岩,石灰岩中Vicinamibacteraceae相对丰度显著降低,而Rubrobacter则显著富集。
|
图 4 属水平的土壤细菌(A)和真菌(B)群落组成 Fig. 4 Compositions of soil bacterial (A) and fungal (B) communities at genus level |
顶坛花椒人工林土壤真菌隶属于15门、48纲、401属。如图 3B所示,在门水平上,主要为子囊菌门(Ascomycota)和担子菌门(Basidiomycota)。顶坛花椒林土壤真菌群落组成特征呈现腐生营养型为优势功能类群,其在凋落物分解过程中发挥核心驱动作用。在真菌属水平上,相对丰度>20% 的为镰刀菌属(Fusarium)、Myrmecridium、钻形无孔菌属(Populomyces)、青霉菌属(Penicillium)(图 4B),相对丰度分别为13.59%~44.16%、0.09%~25.85%、0.02%~ 21.60%、0.91%~16.90%。在真菌群落中,石灰岩显著提高了镰刀菌属、青霉菌属的相对丰度,显著降低了Myrmecridium、钻形无孔菌属的相对丰度。结果表明,镰刀菌属的相对丰度在石灰岩和砂页岩之间存在显著差异(P<0.05),石灰岩是砂页岩的1.69倍。
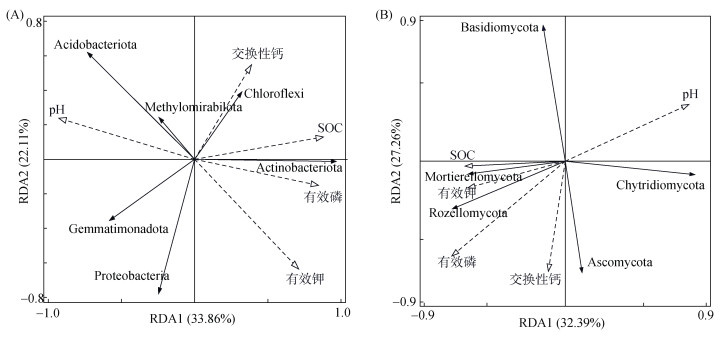
2.4 土壤化学性质与微生物群落的冗余分析在门水平上,以土壤样品中各优势菌门为响应变量,5个土壤化学指标为解释变量进行冗余分析(图 5)。如图 5A所示,土壤细菌第1排序轴和第2排序轴的特征值分别为33.86% 和22.11%,解释了细菌菌群结构变化总方差值的55.97%。其中,pH与细菌群落的变化极显著相关,并与酸杆菌门、变形菌门、芽单胞菌门、Methylomirabilota呈正相关,与放线菌门、绿弯菌门呈负相关。土壤真菌第1排序轴和第2排序轴的特征值分别为32.39% 和27.26%(图 5B),解释了真菌菌群结构变化总方差值的59.65%。RDA分析表明,土壤有机碳、有效钾、pH和交换性钙与真菌群落结构的变化无显著相关,而有效磷与罗兹菌门、被孢霉门、子囊菌门呈正相关,与担子菌门、壶菌门呈负相关。综上表明,pH与有效磷是影响土壤微生物群落结构的最主要因子(表 4)。
|
(A. 细菌;B. 真菌) 图 5 土壤化学性质与微生物群落的冗余分析 Fig. 5 Redundancy analysis between soil chemical properties and microbial communities |
|
|
表 4 RDA分析得到的Eigen值、F值和P值 Table 4 Eigenvalues, F-values, and P-values from RDA analysis |
土壤微生物作为维持和稳定生态系统的重要因子,在不同岩性发育的土壤中扮演着重要角色。不同岩性土壤中的有效养分(表 2)、细菌丰度和多样性(表 3)均存在显著差异,间接表明岩性通过介导土壤有效养分,进而影响土壤微生物丰度[21]。推测是不同岩性风化速率的差异,可能通过矿物养分释放机制而影响土壤微生物,具体表现为:较高风化速率的岩层可通过加速矿物质分解,释放大量速效钾、有效磷等营养元素,从而提升表层土壤的养分库容[22],使得微生物大量富集,最终构建了促进微生物多样性形成与维持的理化环境。本研究还表明,白云岩和砂页岩发育土壤的有效养分含量低于石灰岩,而细菌多样性则呈相反趋势。分析其原因:与白云岩相比,石灰岩裂隙有利于根系延伸和土壤养分的贮存与富集,从而支持多样化物种的定居和植物生长[23],进而形成养分富集的生态系统。然而,有效养分的大量富集却降低了细菌多样性,这与Hu等[24]的结果基本一致。这可能是因为养分富集不仅诱导了土壤酸化,还可能降低了与碳和养分循环相关的微生物功能类群的多样性,进而导致整体细菌多样性下降。
不同岩性发育土壤的化学性质,如交换性钙、有效磷、速效钾、有机碳等都会显著影响微生物的丰度[25],并直接或间接影响土壤微生物的结构和功能。本研究发现,白云岩土壤中的真菌丰度高于石灰岩,究其原因,可能是石灰岩分布在河谷底部,降水量较低,抑制了岩石风化,抑制有效养分积累。但由于石灰岩区的岩石裸露率(70%~80%)大于白云岩区(20%~30%),且具有大量的石缝、石槽、石沟等小生境,使得微生物、水、土壤能够得以积累,导致石灰岩更容易增加有效养分和生物碳含量。
3.2 土壤有效养分对微生物的影响本研究中,岩性不仅显著改变了土壤理化性质(有效磷、pH和速效钾)及微生物优势种群丰度(放线菌门、酸杆菌门),还通过影响土壤底物的供应与微环境,进而调控了顶坛花椒的生长和对有效养分的吸收。这与王琪等[26]的研究结论一致,说明岩性可通过风化程度驱动有效养分与微生物群落的演变。土壤中有效磷、速效钾及交换性钙等元素的赋存状态,主要受控于成土母质的矿物组成,及其风化速率所决定的土壤发育阶段,这种研究对象的本质区别,可能导致最终研究结果呈现系统性差异。与其他岩性相比,石灰岩发育的土壤显著提高了放线菌门的相对丰度,而降低酸杆菌门相对丰度。已有研究表明,放线菌不仅可以分解纤维素等复杂化合物[27],还具有固氮和固土保水作用,参与土壤养分(碳、钾、磷)等的转化与循环,一定程度上提高了有效养分含量[28];而酸杆菌门属于典型的寡营养型细菌,喜欢生存在养分匮乏的环境中[29]。研究还表明土壤酸杆菌的相对丰度与其pH呈显著负相关[30],但Jones等[31]发现pH与酸杆菌呈正相关,本文结果支持Jones等的观点,说明放线菌和酸杆菌作为细菌群落的优势菌种,通过自身功能促进养分循环,从而影响顶坛花椒的生长和发育。据此,岩性会因风化后产生不同的理化性质,进而影响土壤微生物的种类和分布,表明微生物丰度变化极大程度上受到岩性的影响。
胥娇和李强[32]研究发现,土壤性质会影响生境而导致微生物群落结构分异,但优势类群基本相似,本文结果与此一致。子囊菌门、被孢霉门和担子菌门作为真菌的优势菌门,其中子囊菌门具有降解木质素、纤维素、果胶等有机物的能力[33],常富集在养分含量较高的土壤中;担子菌门能够有效降解土壤中难以降解的有机质[34],有利于提升土壤养分含量,从而促进土壤微生物的集聚。石灰岩土壤中的子囊菌门高于其他组,推测与其本身的有机质含量有关。子囊菌门在土壤中扮演重要的分解角色,同时在干旱系统中可促进碳、氮循环。此外,土壤养分越丰富,子囊菌门的丰度就会越高,这也说明石灰岩发育的土壤中养分含量较高。综上所述,放线菌门与子囊菌门作为土壤微生物群落中的优势菌群,其相对丰度越高,土壤中有效养分含量通常也越高;但在不同岩性背景下,该规律也存在差异:与白云岩发育土壤相比,砂页岩发育土壤中各有效养分含量普遍偏低。产生这一现象的原因可能在于,砂页岩发育的土壤中虽然微生物丰度较高,但旺盛的微生物活动加速了土壤养分的循环,从而降低了有效养分的积累。
3.3 岩性对微生物群落组成结构及多样性的影响岩性作为影响土壤微生物群落的重要因素之一,不仅影响土壤有效养分的含量,还直接影响微生物的生存环境,这与岩性的基质特性密切相关[35]。土壤微生物能够维持生态系统的结构与功能,既参与养分循环,又影响着各种生物反应[36]。由于岩性不同,风化产生的养分种类和含量存在显著差异[37],进而导致土壤微生物群落也发生显著改变。此外,土层厚度及岩石裸露率使得土壤与岩石有更为直观的营养元素关系。本研究中,与其他岩性相比,砂页岩发育土壤细菌Chao1、Shannon和Simpson指数均有所提升(表 3)。究其原因,砂页岩土层厚、颗粒孔隙大、透水性好,为细菌提供适宜的生存环境,从而增加了细菌的丰富度和多样性[38];而白云岩水土迁移少、岩石紧密、裂隙少,导致土壤养分存储量低,限制细菌的生存环境,从而降低细菌的丰度和多样性。
土壤细菌的优势菌门是放线菌门、酸杆菌门、变形菌门和绿弯菌门,这与Yu等[39]研究结果一致,并且石灰岩绿弯菌门的丰度最高。究其原因,是石灰岩风化形成的土壤具有高钙含量的特征,为绿弯菌门等适应高钙环境的类群提供了适宜的生态位。本研究还发现,石灰岩发育土壤的真菌Shannon和Simpson指数在数值上最高,这是由于石灰岩溶蚀发育产生的石槽、石缝等为真菌的积累与富集提供了场所,促进真菌的繁衍和生长,进而提高真菌丰富度和多样性。已有研究表明,土壤pH是影响真菌丰富度、多样性的主要因素之一[40],土壤pH会促使土壤形成与之相适应的微生物群落[41]。砂页岩土壤的pH高于白云岩和石灰岩,使得土壤养分利用率大大降低,导致真菌难以获取足够的养分,从而影响菌群的代谢和生长。以上结果表明,岩性通过自身特性和有效养分共同影响土壤微生物的多样性,是一种复合作用。
4 结论岩性对土壤微生物群落结构具有显著的调控作用,且受到土壤pH与有效磷的影响更大;顶坛花椒人工林中,相较于白云岩和砂页岩,石灰岩发育的土壤具有更高的有效养分含量与真菌多样性,可优先用于顶坛花椒培育。
| [1] |
Sneha G R, Swarnalakshmi K, Sharma M, et al. Soil type influence nutrient availability, microbial metabolic diversity, eubacterial and diazotroph abundance in chickpea rhizosphere[J]. World Journal of Microbiology and Biotechnology, 2021, 37(10): 167 DOI:10.1007/s11274-021-03132-0 (  0) |
| [2] |
余高, 赵仕龙, 孙约兵, 等. 覆盖材料对云贵高原柑橘园土壤理化性质和细菌群落特征以及柑橘品质的影响[J]. 生态学报, 2024, 44(8): 3408-3422 ( 0) |
| [3] |
García-Palacios P, Vandegehuchte M L, Shaw E A, et al. Are there links between responses of soil microbes and ecosystem functioning to elevated CO2, N deposition and warming A global perspective[J]. Global Change Biology, 2015, 21(4): 1590-1600 DOI:10.1111/gcb.12788 ( 0) |
| [4] |
Liu J L, Li S Q, Yue S C, et al. Soil microbial community and network changes after long-term use of plastic mulch and nitrogen fertilization on semiarid farmland[J]. Geoderma, 2021, 396: 115086 DOI:10.1016/j.geoderma.2021.115086 ( 0) |
| [5] |
魏书蒙, 陈详腾, 赵光宇, 等. 杉木人工林近自然改造对土壤化学性质及酶活性的影响[J]. 生态学报, 2024, 44(10): 4277-4287 ( 0) |
| [6] |
Li Y T, Yu Y H, Song Y P. Leaf functional traits of Zanthoxylum planispinum 'dintanensis' plantations with different planting combinations and their responses to soil[J]. Forests, 2023, 14(3): 468 DOI:10.3390/f14030468 ( 0) |
| [7] |
Li Y T, Yu Y H, Song Y P, et al. Stoichiometry of soil, microorganisms, and extracellular enzymes of Zanthoxylum planispinum var. dintanensis plantations for different allocations[J]. Agronomy, 2022, 12(7): 1709 DOI:10.3390/agronomy12071709 ( 0) |
| [8] |
Yu Y H, Song Y P, Li Y T. Management practices effects on Zanthoxylum planispinum 'dintanensis' fruit quality[J]. Agronomy Journal, 2022, 114(4): 2095-2104 DOI:10.1002/agj2.21034 ( 0) |
| [9] |
杨源峰, 杨岚惠, 张诗琴, 等. 喀斯特区生物结皮对不同岩性发育土壤分离过程的阻控效应研究[J]. 土壤学报, 2026, 63(1): 179-194 ( 0) |
| [10] |
肖灿, 肖丹, 孙明明, 等. 喀斯特植被恢复土壤固氮菌和丛枝菌根真菌的研究进展[J]. 贵州师范大学学报(自然科学版), 2026, 44(2): 31-43 ( 0) |
| [11] |
张伟, 刘丛强, 李晓东, 等. 喀斯特坡地土壤硫同位素变化指示的土壤硫循环[J]. 环境科学, 2010, 31(2): 415-422 ( 0) |
| [12] |
Wu Y G, Yu Y H, Wu Y G, et al. Soil carbon, nitrogen and phosphorus fractions and response to microorganisms and mineral elements in Zanthoxylum planispinum 'dintanensis' plantations at different altitudes[J]. Agronomy, 2023, 13(2): 558 DOI:10.3390/agronomy13020558 ( 0) |
| [13] |
喻阳华, 王璐, 钟欣平, 等. 贵州喀斯特山区不同海拔花椒人工林土壤质量评价[J]. 生态学报, 2018, 38(21): 7850-7858 ( 0) |
| [14] |
Fang Q, Lu A H, Hong H L, et al. Mineral weathering is linked to microbial priming in the critical zone[J]. Nature Communications, 2023, 14: 345 DOI:10.1038/s41467-022-35671-x ( 0) |
| [15] |
Yu Y H, Song Y P, Zhong X P, et al. Growth decline mechanism of Zanthoxylum planispinum var. dintanensis in the canyon area of Guizhou Karst Plateau[J]. Agronomy Journal, 2021, 113(2): 852-862 DOI:10.1002/agj2.20510 ( 0) |
| [16] |
龙健, 廖洪凯, 李娟, 等. 基于冗余分析的典型喀斯特山区土壤-石漠化关系研究[J]. 环境科学, 2012, 33(6): 2131-2138 ( 0) |
| [17] |
马进鹏, 吴梦瑶, 张雅琪, 等. 宁夏不同草地类型土壤微生物残体碳积累特征及其影响因素[J]. 生态学报, 2024, 44(20): 9300-9313 ( 0) |
| [18] |
杨金玲, 张甘霖, 黄来明. 典型亚热带花岗岩地区森林流域岩石风化和土壤形成速率研究[J]. 土壤学报, 2013, 50(2): 253-259 ( 0) |
| [19] |
白晓永, 冉晨, 陈敬安, 等. 中国喀斯特生态系统健康诊断的方法、进展与展望[J]. 科学通报, 2023, 68(19): 2550-2568 ( 0) |
| [20] |
鲍士旦. 土壤农化分析(3版)[M].
中国农业出版社, 北京, 2000
( 0) |
| [21] |
Yang T, Zhang H R, Zheng C H, et al. Bacteria life-history strategies and the linkage of soil C-N-P stoichiometry to microbial resource limitation differed in karst and non-karst plantation forests in southwest China[J]. Catena, 2023, 231: 107341 DOI:10.1016/j.catena.2023.107341 ( 0) |
| [22] |
Peng Y, Yang J X, Seabloom E W, et al. Multiple nutrient additions homogenize multidimensional plant stoichiometry in a meadow steppe[J]. Global Change Biology, 2025, 31(3): e70123 DOI:10.1111/gcb.70123 ( 0) |
| [23] |
Jiao M, Yan J W, Zhao Y, et al. Dominance of rock exposure and soil depth in leaf trait networks outweighs soil quality in karst limestone and dolomite habitats[J]. Forest Ecosystems, 2024, 11: 100220 DOI:10.1016/j.fecs.2024.100220 ( 0) |
| [24] |
Hu Z K, Delgado-Baquerizo M, Fanin N, et al. Nutrient- induced acidification modulates soil biodiversity-function relationships[J]. Nature Communications, 2024, 15: 2858 DOI:10.1038/s41467-024-47323-3 ( 0) |
| [25] |
田美洁, 郭俊丽, 黎娟, 等. 长期施肥对水稻土剖面氨氧化古菌和细菌丰度及组成的影响[J]. 土壤学报, 2022, 59(1): 285-296 ( 0) |
| [26] |
王琪, 徐佳慧, 程诚, 等. 不同风化程度凝灰岩表生细菌群落结构与功能比较[J]. 土壤, 2024, 56(3): 517-524 DOI:10.13758/j.cnki.tr.2024.03.008 ( 0) |
| [27] |
Zhang B L, Wu X K, Tai X S, et al. Variation in actinobacterial community composition and potential function in different soil ecosystems belonging to the arid Heihe River Basin of northwest China[J]. Frontiers in Microbiology, 2019, 10: 2209 DOI:10.3389/fmicb.2019.02209 ( 0) |
| [28] |
崔熙雯, 林小锐, 李家兵, 等. 抗逆放线菌的多样性、功能特性及其在环境修复中的应用[J]. 微生物学报, 2023, 63(5): 1930-1943 ( 0) |
| [29] |
Wu H W, Cui H L, Fu C X, et al. Unveiling the crucial role of soil microorganisms in carbon cycling: A review[J]. Science of the Total Environment, 2024, 909: 168627 DOI:10.1016/j.scitotenv.2023.168627 ( 0) |
| [30] |
Chu H Y, Fierer N, Lauber C L, et al. Soil bacterial diversity in the Arctic is not fundamentally different from that found in other biomes[J]. Environmental Microbiology, 2010, 12(11): 2998-3006 DOI:10.1111/j.1462-2920.2010.02277.x ( 0) |
| [31] |
Jones R T, Robeson M S, Lauber C L, et al. A comprehensive survey of soil acidobacterial diversity using pyrosequencing and clone library analyses[J]. The ISME Journal, 2009, 3(4): 442-453 DOI:10.1038/ismej.2008.127 ( 0) |
| [32] |
胥娇, 李强. 石灰土演替过程中颗粒态有机质和矿物结合态有机质的微生物群落特征[J]. 微生物学报, 2023, 63(6): 2153-2172 ( 0) |
| [33] |
杨凯, 杜延全, 张西兴, 等. 不同有机物料与化肥配施对土壤真菌群落结构和生态功能的影响[J]. 土壤, 2024, 56(1): 222-228 DOI:10.13758/j.cnki.tr.2024.01.027 ( 0) |
| [34] |
马义淑, 曹亚鑫, 牛敏, 等. 太岳山不同林龄人工油松林土壤微生物特征[J]. 环境科学, 2024, 45(4): 2406-2416 ( 0) |
| [35] |
夏热克亚木·伊提尼牙孜, 董发勤, 李琼芳, 等. 高寒岩溶土壤微生物群落组成及其多样性[J]. 中国岩溶, 2024, 43(2): 364-378 ( 0) |
| [36] |
Wei X P, Xie B K, Wan C, et al. Enhancing soil health and plant growth through microbial fertilizers: Mechanisms, benefits, and sustainable agricultural practices[J]. Agronomy, 2024, 14(3): 609 DOI:10.3390/agronomy14030609 ( 0) |
| [37] |
李为, 刘彦, 吴耿, 等. 桂林毛村不同地质背景主要元素迁移特征及与植物蒸腾作用的相关性[J]. 土壤, 2007, 39(5): 746-752 DOI:10.3321/j.issn:0253-9829.2007.05.013 ( 0) |
| [38] |
Wei H, Yang Y F, Wang J Y, et al. A comparison of preferential flow characteristics and influencing factors between two soils developed in the karst region of Southwest China[J]. Soil and Tillage Research, 2024, 241: 106132 DOI:10.1016/j.still.2024.106132 ( 0) |
| [39] |
Yu Y L, Zhang L P, Li Y P, et al. Silicon fertilizer and microbial agents changed the bacterial community in the consecutive replant soil of lilies[J]. Agronomy, 2022, 12(7): 1530 DOI:10.3390/agronomy12071530 ( 0) |
| [40] |
Wang J T, Zheng Y M, Hu H W, et al. Soil pH determines the alpha diversity but not beta diversity of soil fungal community along altitude in a typical Tibetan forest ecosystem[J]. Journal of Soils and Sediments, 2015, 15(5): 1224-1232 DOI:10.1007/s11368-015-1070-1 ( 0) |
| [41] |
Naz M, Dai Z C, Hussain S, et al. The soil pH and heavy metals revealed their impact on soil microbial community[J]. Journal of Environmental Management, 2022, 321: 115770 DOI:10.1016/j.jenvman.2022.115770 ( 0) |
2. School of Karst Science / State Engineering Technology Institute for Karst Decertification Control, Guizhou Normal University, Guiyang 550025, China;
3. Guizhou Institute of Forest Inventory and Planning, Guiyang 550003, China