 2026, Vol. 58


目前,大气二氧化碳(CO2)浓度正持续攀升,加剧了全球气候变化危机。为有效减缓大气CO2浓度变化,固碳成为全球应对气候变化、维护地球生命可持续发展的核心策略。而自养微生物是全球碳循环的重要组成部分,具有独特的生理生态功能,能够利用无机碳作为碳源合成细胞生物质[1]。光合细菌、化能自养菌及微藻类等微生物是水生生态系统中最主要的固碳生物,每年能够固定全球约40% 的CO2。在陆地生态系统中,自养细菌已在森林、滨海盐碱地、荒漠、农田等生境中被检测到,展现出了对大气CO2的显著吸收潜力。
因此,从整个生物圈的物质循环和能量流动的角度来看,探究微生物固碳的生态环境效益具有重要的现实意义和深远影响。本文将深入探讨自养微生物的固碳途径及其内在机理,综述典型生态系统中微生物固碳研究的最新进展及影响因素,同时对微生物固碳研究的前景进行展望,以期为自然界微生物固碳研究领域提供参考。
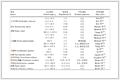
1 自养微生物固碳途径微生物进行CO2固定的过程也称微生物固碳或碳同化过程。根据能量获取途径不同,可将自养微生物分为两类:光能自养微生物和化能自养微生物[2]。目前已经发现7条主要微生物固碳途径(表 1),分别为:卡尔文循环(Calvin–Benson–Bassham cycle,CBB)、还原型三羧酸循环(Reductive tricarboxylic acid cycle,rTCA)、厌氧乙酰辅酶A途径(Reductive acetyl-CoA pathway,WL)、3-羟基丙酸双循环(3-Hydroxypropionate bicycle,3HP)、3-羟基丙酸/4-羟基丁酸循环(3-Hydroxypropionate/4- Hydroxybutylate cycle,3HP/4HB)、二羧酸/4-羟基丁酸循环(Dicarboxylate/4-Hydroxybutyrate cycle,DC/4HB)、反向甘氨酸裂解途径(rGlyP)[3-4]。
|
表 1 自养微生物固碳途径 Table 1 Carbon sequestration pathways for autotrophic microorganisms |
卡尔文循环(CBB)发现于20世纪40年代,是首个被报道的微生物碳固定途径。在此后很长一段时间,CBB循环被认为是地球上唯一的碳固定途径。直至目前,CBB循环仍然被认为是分布最广泛的生物固碳途径[5],地球上超过90% 的碳固定均由CBB循环完成[6]。该循环普遍存在于植物、藻类以及蓝细菌、变形菌和厚壁菌等光合自养和化能自养细菌中[7]。CBB循环可以分为3个阶段:碳固定、碳还原和底物(RuBP)再生,包含11个酶参与的13步反应,循环每进行1次,可固定1个CO2分子,循环6次生成1分子葡萄糖。其中关键酶为核酮糖-1, 5-二磷酸羧化酶/加氧酶(RubisCO酶),目前已知的RubisCO酶可以被分为4种不同的类型:Ⅰ、Ⅱ、Ⅲ和Ⅳ型。然而,其中只有Ⅰ、Ⅱ、Ⅲ型参与催化羧化反应,而Ⅳ型(也称RubisCO类似蛋白)不具备催化羧化反应的功能[8]。cbbL是RubisCO酶编码基因之一,因其具有高度保守性,常被作为环境自养固碳微生物研究的分子标志物。
1.2 还原型三羧酸循环(Reductive tricarboxylic acid cycle,rTCA)rTCA循环是1966年由Evans在绿硫细菌中发现并提出,挑战了当时公认的卡尔文循环固碳理论。该循环与柠檬酸循环(TCA,异养菌细胞呼吸的一个阶段,将乙酰辅酶A氧化为CO2,产生还原力合成三磷酸腺苷)的方向相反,由2分子CO2形成1分子乙酰CoA。在这个循环过程中,铁氧化还原蛋白氧化还原酶、2-氧戊二酸∶铁氧还原蛋白氧化还原酶和柠檬酸裂解酶是3个最关键的酶,编码基因分别为porCDAB/nifJ、oorDABC和aclAB[9]。rTCA循环存在于许多细菌和古细菌类群中,其中涉及对氧敏感的酶。因此,该循环常见于生活于低氧环境(氧浓度低于空气)的厌氧菌或兼性厌氧菌中,如湖泊、河流等水体底泥和深海热泉中的微生物[10-11]。
1.3 厌氧乙酰辅酶A途径(Reductive acetyl-CoA pathway,WL)1986年,Harland G. Wood和Lars G. Ljungdahl发现产乙酸菌和产甲烷菌(厌氧菌)能够利用H2和CO2来合成乙酸和甲烷,从而揭示了第3条重要的固碳途径:厌氧乙酰辅酶A途径。这种非循环途径发生在厌氧微生物中,是一种较为简单的途径,即2分子CO2以非循环的方式直接结合生成乙酰辅酶A[12]。该途径的关键酶是CO脱氢酶和乙酰辅酶A合成酶,该酶催化CO2还原为CO,并催化甲基和羰基残基合成乙酰辅酶A[13]。由于该途径的关键酶对氧气含量特别敏感,因此需要在极其严格的厌氧条件下进行,如海洋沉积物、半干旱沙漠环境[14]。
1.4 3-羟基丙酸双循环(3-Hydroxypropionate bicycle,3HP)3HP循环于1989年由Helge Holo以及Georg Fuchs在绿色非硫细菌绿屈挠菌科中首次发现并提出。然而,Georg Fuchs又花了20年时间才完全阐明了这一途径[15]。在该途径中,2个HCO3–分子通过分为两个循环的路线合成乙醛酸盐,其中包括19个步骤和13个酶,所有的步骤对氧气都不敏感,所有的酶都需要在有氧条件下工作。该途径的关键酶是丙二酸单酰辅酶A还原酶和丙酰辅酶A合成酶,目前主要可以在南极和半干旱沙漠等极端自然生态环境中发现该途径[16]。
1.5 3-羟基丙酸/4-羟基丁酸循环(3-Hydroxypropionate/ 4-Hydroxybutylate cycle,3HP/4HB)3HP/4HB循环在细胞内将1个四碳的酯类物质(如丁酸盐或琥珀酸盐)转化为三碳的丙酮酸,关键酶为4-羟基丁酸酰基-CoA脱水酶。该循环被认为是最节能的好氧碳固定途径,偏好在贫营养环境中发生[17]。目前可以在硫化叶菌目以及部分古细菌中被发现,主要存在于农田土壤、海洋、湖泊等环境中。
1.6 二羧酸/4-羟基丁酸循环(Dicarboxylate/ 4Hydroxybutyrate cycle,DC/4HB)DC/4HB循环于2008年由Huber等[18]在超嗜热泉古菌中阐明。该循环可以分为两部分:第一部分,乙酰辅酶A和CO2以及碳酸盐经C4-二羧酸循环转化为琥珀酰辅酶A;第二部分,琥珀酰辅酶A经4-羟基丁酸变为2分子乙酰辅酶A,其中1分子可用于之后生物合成,另1分子继续作为下一轮循环的CO2受体[19]。该循环部分步骤涉及rTCA循环和3HP/4HB循环中的酶,其特征性关键酶包括丙酮酸合成酶和磷酸烯醇式丙酮酸羧化酶。
1.7 反向甘氨酸裂解途径(rGlyP)rGlyP途径是近年来提出的第7种固碳途径,鲜有研究。2017年,Figueroa等[20]通过对厌氧消化过程中以CO2为唯一电子受体的活性污泥微生物进行基因组解析,发现无机碳能够通过还原性甘氨酸途径同化,该途径可能在自然系统中发挥固碳作用。该途径的关键酶为甲酸脱氢酶和甘氨酸还原酶,目前该途径主要发现于废水、污泥中。
2 不同生态系统中微生物固碳特征早期微生物固碳研究多侧重于海洋生态系统,近年来研究重心已逐渐向陆地生态系统转移,发现土壤是陆地生态碳平衡中不可忽视的重要组成部分。全球土壤微生物固碳通量可达0.6~4.9 Pg/a[21],甚至高于海洋(0.1~2.0 Pg/a) [22-23] (表 2)。
|
|
表 2 不同生态系统自养微生物固碳特征差异 Table 2 Differences in carbon sequestration characteristics of autotrophic microorganisms in different ecosystems |
海洋总面积约为3.61亿km2,占地球表面积约71%。海洋生态系统中的自养微生物,通过光合作用和化能合成作用固定CO2实现碳的固定和储存。同时还通过消耗水中的营养物质来限制碳的释放,有助于减缓全球气候变暖的趋势[24]。
海洋生态系统中自养微生物的固碳途径主要包括CBB、rTCA、3HP/4HB、DC/4HB和WL,其中rTCA和3HP/4HB循环主要存在于黑暗海洋中,WL循环主要存在于海洋沉积物中[10]。据估算,在海洋微生物固碳通量中,化能自养固碳总量为0.77 Pg/a,其中约52% (透光层中为37%,深海区中为15%)的化能自养固碳由水柱中的硝化微生物所驱动。硝化古菌是通过氨氧化作用吸收溶解无机碳的主导类群[25-26]。虽然海洋透光层中化能自养总固碳量(0.25~0.35 Pg/a)显著低于海洋光能自养固碳量(54 Pg/a),但其量级与河流有机碳输入通量(0.4~0.5 Pg/a)及海洋沉积物有机碳埋藏速率(0.20~0.79 Pg/a)相当,表明长期以来被低估的化能自养过程在全球碳循环中扮演着与陆源输入和沉积埋藏同等重要的生物地球化学驱动角色。而深海沉积物中的无机碳固定十分有限,近岸、陆架和陆坡沉积物以浅层氧渗透为特征,大部分有机质(主要是硫化物)在厌氧环境中降解,将产生还原性代谢物促进硫细菌的化能自养过程[22-23]。
2.1.2 冰川冰川是地球上最大的淡水水库,也是地球上重要的碳汇之一,能够吸收和储存大量CO2,持续封存长达数千年。冰川生态系统中微生物是固碳的重要力量,对于减缓全球气候变暖和预测未来碳释放趋势具有重要意义。
极地冰盖和山地冰川覆盖了大约11% 的地球陆地表面,储存了来自本地和远源的有机碳,并将其释放到下游环境中[27]。冰川生态系统中有着多样化的栖息环境,主要包括冰川表面雪和冰、冰川径流,这些区域是许多微生物的栖息地,同时部分地衣和苔藓也形成于冰川表面,形成独特的生态群落。冰川中碳储量最多的是冰川沉积物,仅南极冰川沉积物中颗粒有机碳(POC)储量就高达6×10³~2.1×10⁴ Pg,比北半球永久冻土中POC储量(1 672 Pg)高1~2个数量级。冰尘穴沉积物是冰川沉积物的重要组成,也是冰川表面碳积累的主要生境[28]。Anesio等[29]研究发现,冰尘穴沉积物的初级生产力(CO2固定速率)为11.2~2 059 μg/(g·d),群落呼吸速率为6.23~44.8 μg/(g·d),冰尘穴初级生产力高于群落呼吸,生态系统表现为净自养过程。基于目前研究进展,冰川生态系统中主要的固碳途径包括CBB循环、rTCA循环以及WL途径。以上所述固碳途径中主要以CBB循环为主,rTCA循环以及WL途径主要分布在冰川沉积物以及冰川内部冰等厌氧环境中,因此固碳贡献相对较少[30]。
2.2 陆地生态系统 2.2.1 农田土壤有机碳(SOC)作为陆地最大碳库,对土壤肥力、气候变化和生态系统服务起着至关重要的作用。全球土壤碳储量约为1.5×10³ Pg,约为大气碳储量的2倍,其中,农田土壤是构成土壤有机碳库的关键部分。全球农田土壤碳储量约为142 Pg,占全球陆地碳储量的8%~10%[45];农田土壤自养微生物碳同化的年速率约为100~450 kg/hm2,对于碳循环的年贡献率可达0.9%~4.1%[46]。农田土壤中水分及其他条件不仅对其作物生长有着至关重要的影响,同时与微生物群落特征有着密切关联。
在农田生态系统中,旱地以及水田的固碳潜力有所差异,总体表现为水田高于旱地。Yuan等[31]将农田土壤在连续标记14C-CO2大气中培养80 d,SOC14和MBC14分别增加8.44~64.61 mg/kg和1.55~10.36 mg/kg;同时,不同土壤在SOC和MBC中的14C同化量存在显著差异,总体表现为水稻土高于旱地土壤。在水田土壤中,固持的有机碳中植物残体来源碳占33%~ 54%,微生物残体来源碳占28%~36%;而旱地土壤有机碳中的植物残体来源碳占19%~42%,微生物残体来源碳占40%~59%;在水田土壤中植物残体的固碳作用高于旱地土壤,而在旱地土壤中微生物固碳作用明显大于水田土壤[39]。Liao等[21]采集108个分别来自稻田和旱地的土壤测定了CO2固定速率,发现水稻土固碳速率平均为0.67 mg/(kg·d),显著高于旱地土壤(0.16 mg/(kg·d))。Ge等[32]以中国亚热带5种旱地和5种水稻土为研究对象,通过连续14CO2标记技术测定土壤CO2同化速率,表明旱地土壤平均固碳速率为0.18 mg/(kg·d),水田土壤平均为1.10 mg/(kg·d)。初步估算,在理想状态下,农田土壤微生物固碳量约在0.3~0.8 Pg/a[33-34]。同时,水稻土中自养微生物的共现网络较旱地土壤更为复杂。
2.2.2 荒漠与植物固碳相比,在植物受限制、有胁迫条件的生态系统中,如冷荒漠、热荒漠等,土壤自养微生物在碳固定中发挥着更主要的作用。此外,微生物的固碳过程还有助于改善土壤结构,提高土壤肥力,为荒漠地区的植被恢复和生物多样性保护奠定基础。
荒漠生态系统中主要的自养微生物隶属于蓝藻门,同时存在部分兼养微生物,它们是生物结皮和恶劣环境中关键的光能自养微生物。这些自养微生物驱动了细菌、真菌及土壤动物的代谢过程,影响土壤微生物群落演替,加速生物土壤结皮中碳、氮、磷等养分转化,并促进地表生物结皮的形成、发展及理化性质(温度、碳、氮养分)的有序变化[36, 47]。
Zhao等[37]采用定量PCR、cbbL基因测序和稳定同位素方法对青藏高原荒漠、草原和草甸3种类型土壤进行研究,发现青藏高原土壤中自养微生物具有较强的固碳能力,显著高于已报道的旱田和水田土壤(表 2)。同时,荒漠和草原土壤自养微生物丰度显著低于草甸土壤,但两者大气13CO2固定速率(7.91 mg/(kg·d))却显著高于草甸土壤(4.91 mg/(kg·d)),凸显了贫营养土壤微生物CO2固定的重要性,各自养型(形成IAB和IC)微生物的13CO2固定速率与cbbL基因丰度均无显著相关性,表明土壤自养型微生物对CO2的固定是复杂的。
2.2.3 岩溶岩溶生态系统是地球表层系统中的重要组成部分,全球岩溶面积达2 200万km2,占陆地面积的12%。碳酸盐岩是岩溶生态系统的物质基础,而碳酸盐岩的形成过程对大气CO2浓度降低产生重要的作用,目前地球上99.5% 的碳被封存在碳酸盐岩中,碳酸盐岩中碳储量约达6.1×10¹⁶ t。此外,碳酸盐岩对气候和环境变化响应较为敏感,岩溶作用每年可回收大气约0.6 Gt CO2,与全球碳循环密切相关[48]。
张双双等[38]对岩溶生态系统的固碳微生物群落结构进行调查,分别在岩溶区、混合区与非岩溶区采集表层土壤样本,通过利用cbbL基因高通量测序方法,对比3个区域土壤中固碳细菌的群落丰度、组成及多样性特征。结果表明,3个区域土壤中固碳细菌均属于变形菌门和放线菌门。其中,α-变形菌纲(α-Proteobacteria,24.6%)为3个区域土壤中的优势纲,以根瘤菌为主的兼性自养菌是主要的固碳细菌类群。目前岩溶生态系统微生物固碳途径的研究报道以CBB循环为主,其余几种固碳途径鲜少涉及。
2.2.4 森林森林生态系统是陆地生态系统中重要的碳汇。2020年联合国粮农组织发布的《全球森林资源评估报告》中指出,全球森林总碳储量达到6 620亿t,其中森林土壤碳储量约占45%。微生物在森林土壤固碳中起重要作用,同时微生物丰度以及群落结构也会受到森林地表植被类型的影响。
森林土壤中微生物主要的固碳途径为CBB循环。刘茗等[40]选取毛竹林、阔叶林、杉木林和马尾松林4种森林植被,以CBB循环中的关键酶RubisCO酶的cbbL基因为固碳细菌指示基因,利用荧光定量PCR和高通量测序技术探究不同森林植被类型土壤固碳微生物特征及其影响因子。研究表明,4种森林植被类型的16S rRNA基因和固碳细菌cbbL基因丰度范围分别是(0.54~2.81)×1011 copies/g和(0.46~ 3.53)×109 copies/g,其中,毛竹林土壤的微生物基因丰度显著高于其他3种林分,而杉木林土壤固碳细菌多样性显著低于其他3种林分,并且毛竹林对土壤肥力以及固碳微生物影响效果最好,固碳微生物对毛竹林土壤有机质积累贡献大于阔叶林。造成这种差异主要是由于4种林分之间土壤理化性质存在显著差异,毛竹林和阔叶林表层土壤各项指标(pH、有机碳、全氮、碱解氮、速效钾等)总体较高,而杉木林和马尾松林土壤总体较低,尤其是杉木林土壤除pH和碱解氮外的其他指标均为最低。Liao等[21]定量化研究了51个不同纬度地区森林土壤的CO2固定速率,据估算,森林土壤固碳速率为0.09~0.86 mg/(kg·d),最低固碳速率出现在23°N~29°N地区,土壤CO2固定速率与土壤总碳呈显著正相关。
2.2.5 草地草地生态系统覆盖了地球陆地面积的40% 左右。据估算,土壤微生物CO2固定作用对半干旱草原总初级生产力的贡献约为18.2%[49]。
Huang等[42]通过13C标记示踪半干旱至半湿润草原土壤CO2固定通量,利用宏基因组分析证明rTCA、CBB和3HP循环为草地生态系统中3条主要固碳途径,其中rTCA循环最为丰富,从半干旱到半湿润条件,其相对丰度增加了3.6%,土壤固碳速率0.02~ 0.10 mg/(kg·d),可为全球提供约8.1~27 mg/(m2·d)的输入。Liu等[43]研究表明,干旱或半干旱草原土壤CO2固定速率约为22 mg/(m2·d),与上述结果较为一致;同时通过宏基因组测序发现,rTCA循环是养分贫瘠、降水稀少的半干旱至半湿润草原土壤CO2固定的主要途径。主导的CO2固定途径可能取决于当地生态系统类型,因为各自微生物群落成员的选择驱动了相应的途径,而这些途径取决于生境中可用能量来源不同的三磷酸腺苷(ATP)需求。与rTCA循环相比,CBB循环是一种更耗能的CO2固定策略,能量成本的差异很大程度上归因于该途径的RubisCO酶需要更多的能量。因此,低能耗(2 ATP)很可能是rTCA循环成为半干旱草地土壤微生物首选代谢途径的原因之一。本研究团队通过13CO2示踪微宇宙培养技术结合稳定同位素核酸探针(DNA-SIP)技术研究发现,新西兰草地土壤自然条件下固碳速率约为0.15 mg/(kg·d),氮素投入可使固碳速率提升1.9倍以上[44],化能自养的硝化菌群是驱动高氮条件下土壤固碳的主要动力,但其他生境中硝化作用对土壤固碳的贡献鲜见报道。
3 微生物固碳速率的影响因素 3.1 土壤性质土壤为微生物的定殖提供了不同微生境,土壤的物理性质以及化学性质对于土壤微生物的活性有着重要影响,土壤质地和结构、有机物含量、pH等都在一定程度上影响着微生物的固碳过程。
3.1.1 土壤物理性质土壤质地是土壤重要的物理性质之一,与土壤通气、保水、保肥性状密切联系,进而影响微生物的生理活性。Selesi等[50]利用靶向实时荧光定量PCR技术检测到cbbL基因主要分布于壤土和黏土,在砂土中极为罕见。同时,王群艳等[51]选取亚热带地区同一母质发育而成的不同壤土,通过14C-CO2连续标记技术结合室内模拟培养试验,揭示壤质黏土中自养微生物同化碳(14C-SOC)、自养微生物截留碳(14C-MBC)和自养微生物可溶性碳(14C- DOC)均高于砂质黏壤土。原因在于:壤质黏土中黏粒含量、土壤养分含量和阳离子交换量较高,可能有利于维持更高的自养固碳微生物多样性和活性,从而导致不同质地土壤自养微生物碳同化量及其转化存在显著差异。
3.1.2 土壤化学性质土壤有机质含量以及pH等化学性质都会对土壤微生物丰度及活性产生重要影响,进而影响微生物的固碳能力。自养微生物主要以分子氢和还原性氮(如NH4+、NO2–)、硫(如S2O32–、H2S)、金属(如Fe2+、Mn2+)和碳(如CO、CH4、CH3OH)化合物作为化能自养菌的电子供体[52],化能自养菌通过氧化无机化合物获取能量。因此,相对而言,在有机物含量较低的土壤中,微生物的活性更佳,固碳能力更强。土壤pH同样会影响微生物的生存环境,影响土壤基质的组成、化学性质和利用效率,进而影响土壤微生物群落的组成和多样性。自养微生物对环境pH变化非常敏感,适宜pH有助于微生物保持正常的代谢活动和繁殖能力,进而影响固碳速率,过酸性或者过碱性的环境都会抑制微生物的活性,甚至导致其死亡。
3.2 气候因素气候因素对微生物固碳的影响是复杂且相互关联的,主要通过改变微生物的生长环境、活性以及碳源的可利用性来体现。
3.2.1 大气CO2浓度一系列人类活动,如燃烧化石燃料、工业生产以及土地利用变化等,导致大气CO2含量不断升高,对人类生存发展造成一定的影响,同时微生物也受到较大的影响。大部分的研究表明,大气CO2浓度升高时,土壤中微生物数量以及活性均会显著升高。Williams等[53]连续6年分别采集草原土壤样品进行研究,发现随着大气CO2浓度的升高,微生物生物量碳、氮以及微生物活性显著提高(微生物生物量碳、氮分别相对提高6%、7.5%)。He等[54]通过454焦磷酸测序分析技术评估了高浓度CO2处理的草地土壤与正常浓度CO2处理土壤中微生物群落的结构、组成和功能,结果显示,高浓度CO2显著改变了微生物群落结构,同时促进编码微生物固碳RubisCO酶及乙酰辅酶A等酶的基因丰度显著增加,进一步通过基因芯片3.0数据,在总共检测到的1 503个参与C、N、P和S循环的功能基因中,相当一部分(39%)只在环境CO2浓度(14%)或高CO2浓度(25%)条件下被检测到,表明高CO2浓度显著改变了微生物群落的功能特征。
3.2.2 降水条件土壤含水量是影响固碳微生物群落结构的关键因素,因此降水量也是影响微生物固碳速率的重要因素。Huang等[42]对沿自然降水梯度(年均降水量分别为370、480和540 mm)采集3种草地土壤进行了宏基因组测序和13CO2标记试验,以阐明半干旱草原的土壤微生物与降水条件之间的关系。结果显示,微生物CO2固定速率随着降水的增加而升高;但特定的生物标志物和主要的微生物固碳途径在降水梯度上有很大差异,在高年均降水量条件下(> 400 mm)的CO2固定途径以rTCA和3-HP循环为主,低年均降水量条件下(< 400 mm)以CBB循环为主。
3.3 农业活动农业活动对土壤微生物固碳速率的影响是多方面的,其中包括种植制度、土壤耕作措施以及施肥方式等对土壤微生物均有显著影响。
3.3.1 种植制度Yuan等[55]通过利用末端限制性片段长度多态性和定量PCR技术测定了CO2同化菌cbbL基因的丰度和多样性,发现不同土地利用方式下土壤自养细菌丰度和多样性具有显著差异,cbbL基因丰度总体上遵循水稻连作 > 水稻–旱地作物轮作 > 旱地作物连作的趋势。Wu等[56]通过110 d连续14C-CO2标记培养研究不同种植制度(水稻连作、水稻–油菜轮作、油菜–玉米轮作)下土壤固碳微生物群落的差异,表明连作较轮作具有更强的土壤CO2同化能力,土壤有机碳(14C-SOC)、微生物生物量碳(14C- MBC)及RubisCO活性也显著提高。
3.3.2 耕作措施耕作措施影响土壤结构和土壤的理化性质(如孔隙度、容重和有机碳含量),可能引发土壤细菌群落和活性的变化。Lu等[57]通过对玉米田进行传统耕作(翻耕、深松耕)、少耕(旋耕)、免耕3种耕作方式同时结合玉米秸秆还田方式,研究耕作方式对于土壤微生物的影响。结果显示,cbbL基因和16S rRNA基因丰度在不同耕作方式间存在差异:cbbL基因和16S rRNA基因拷贝数以及RubisCO酶活性均表现为传统耕作土壤和少耕土壤显著高于免耕土壤,同时玉米秸秆还田对cbbL基因丰度有显著正效应,cbbL基因丰度与可溶性有机碳(DOC)呈正相关,与土壤容重呈负相关。传统耕作的高DOC和低土壤容重有利于cbbL携带菌的生长。
3.3.3 施肥方式施肥会改变植物、微生物的生长环境以及土壤的养分状况,影响固碳微生物的活性和固碳速率。马子钰和马文林[58]采用Meta分析方法研究施肥对中国农田0~20 cm表层土壤有机碳固定的影响,结果显示,单施化肥、有机肥化肥混施和单施有机肥均能显著提高农田有机碳含量,其中,有机肥化肥混施组固碳速率最高,为0.36 g/(kg·a),单施化肥组的最低,仅为0.08 g/(kg·a)。磷素添加对不同生育期水稻土固碳途径的影响并不一致。柏菁等[59]发现,在水稻分蘖期磷素添加显著提高了CBB循环、rTCA循环和3HP/4HB循环的关键功能基因cbbL、cbbM、accA、aclB的数量(分别提高了156%、99%、110%、193%),而磷素添加对拔节期cbbL、accA、aclB基因数量并无明显促进作用,对cbbM基因甚至产生了抑制作用。
4 总结与展望探究不同生态系统中微生物固碳机制及贡献,对未来应对全球气候变化具有重要科学意义[2-4]。然而,目前除CBB循环外,其他6条微生物固碳途径在自然界的贡献可能被低估,并且各个生态系统微生物固碳速率仍缺少系统的数据支撑,以致全球自养微生物碳汇通量估算仍存在较大不确定性。
未来研究方向应着重以下维度:①以多因子耦合机制,建立气候带梯度下的长期定位观测网络,量化温湿度波动与耕作制度等对固碳基因表达丰度、固碳微生物群落组成及固碳速率的动态影响,探索不同生态系统土壤微生物固碳过程对气候变化的响应机制;②开发土壤微宇宙模拟系统,利用碳稳定同位素示踪技术和先进分子生物学技术,定量研究不同微生物类群的碳同化潜力和机理以及同化碳在土壤中的转化规律,解耦土壤质地、农业措施与微生物群落结构的交互效应;尤其是农田生态系统兼具生态功能与生产属性,其碳汇过程受到“气候–土壤–生物–人为管理”的多维度调控,量化微生物固碳与农业各项措施的关系,有助于建设农田智慧固碳系统,为全球气候治理提供“自然–人工”双模驱动的解决方案;③根据不同生态系统的气候条件、土壤环境以及微生物特性等差异,构建机器学习模型,预测不同地貌单元中植被覆盖–微生物代谢–固碳通量的非线性关系,完善气候变化下全球生态系统碳循环过程模拟和预测模型,并将技术集成,创建“微生物碳泵–土壤碳库–植物碳汇”三位一体的增汇技术体系。通过多学科深度交叉与技术创新,重塑生态系统的服务价值,推动生态安全与气候安全的协同共赢。
| [1] |
Hügler M, Sievert S M. Beyond the Calvin cycle: Autotrophic carbon fixation in the ocean[J]. Annual Review of Marine Science, 2011, 3: 261-289 DOI:10.1146/annurev-marine-120709-142712 (  0) |
| [2] |
袁红朝, 秦红灵, 刘守龙, 等. 固碳微生物分子生态学研究[J]. 中国农业科学, 2011, 44(14): 2951-2958 ( 0) |
| [3] |
刘洋荧, 王尚, 厉舒祯, 等. 基于功能基因的微生物碳循环分子生态学研究进展[J]. 微生物学通报, 2017, 44(7): 1676-1689 ( 0) |
| [4] |
韩亚西, 张彦龙, 张多英, 等. 自养微生物CO2固定机理研究进展[J]. 生物技术, 2019, 29(4): 391-397 ( 0) |
| [5] |
Fuchs G. Alternative pathways of carbon dioxide fixation: Insights into the early evolution of life?[J]. Annual Review of Microbiology, 2011, 65: 631-658 DOI:10.1146/annurev-micro-090110-102801 ( 0) |
| [6] |
肖璐, 李寅. 生物固碳: 从自然生物到人工合成[J]. 合成生物学, 2022, 3(5): 833-846 ( 0) |
| [7] |
Pachiadaki M G, Brown J M, Brown J, et al. Charting the complexity of the marine microbiome through single-cell genomics[J]. Cell, 2019, 179(7): 1623-1635 DOI:10.1016/j.cell.2019.11.017 ( 0) |
| [8] |
Tabita F R. Microbial ribulose 1, 5-bisphosphate carboxylase/oxygenase: A different perspective[J]. Photosynthesis Research, 1999, 60(1): 210652 ( 0) |
| [9] |
Alfreider A, Grimus V, Luger M, et al. Autotrophic carbon fixation strategies used by nitrifying prokaryotes in freshwater lakes[J]. FEMS Microbiology Ecology, 2018, 94(10): fiy163 ( 0) |
| [10] |
Pachiadaki M G, Sintes E, Bergauer K, et al. Major role of nitrite-oxidizing bacteria in dark ocean carbon fixation[J]. Science, 2017, 358(6366): 1046-1051 DOI:10.1126/science.aan8260 ( 0) |
| [11] |
Berg I A, Kockelkorn D, Ramos-Vera W H, et al. Autotrophic carbon fixation in Archaea[J]. Nature Reviews Microbiology, 2010, 8(6): 447-460 DOI:10.1038/nrmicro2365 ( 0) |
| [12] |
Brock T D. The value of basic research: Discovery of Thermus aquaticus and other extreme thermophiles[J]. Genetics, 1997, 146(4): 1207-1210 DOI:10.1093/genetics/146.4.1207 ( 0) |
| [13] |
Youssef N H, Farag I F, Rudy S, et al. The Wood–Ljungdahl pathway as a key component of metabolic versatility in candidate Phylum Bipolaricaulota (Acetothermia, OP1)[J]. Environmental Microbiology Reports, 2019, 11(4): 538-547 DOI:10.1111/1758-2229.12753 ( 0) |
| [14] |
Fortunato C S, Huber J A. Coupled RNA-SIP and metatranscriptomics of active chemolithoautotrophic communities at a deep-sea hydrothermal vent[J]. The ISME Journal, 2016, 10(8): 1925-1938 DOI:10.1038/ismej.2015.258 ( 0) |
| [15] |
Tabita F R. The hydroxypropionate pathway of CO2 fixation: Fait accompli[J]. Proceedings of the National Academy of Sciences of the United States of America, 2009, 106(50): 21015-21016 ( 0) |
| [16] |
Alber B E, Fuchs G. Propionyl-coenzyme a synthase from Chloroflexus aurantiacus, a key enzyme of the 3-hydroxypropionate cycle for autotrophic CO2 fixation[J]. Journal of Biological Chemistry, 2002, 277(14): 12137-12143 DOI:10.1074/jbc.M110802200 ( 0) |
| [17] |
Könneke M, Schubert D M, Brown P C, et al. Ammonia-oxidizing Archaea use the most energy-efficient aerobic pathway for CO2 fixation[J]. Proceedings of the National Academy of Sciences of the United States of America, 2014, 111(22): 8239-8244 ( 0) |
| [18] |
Huber H, Gallenberger M, Jahn U, et al. A dicarboxylate/4-hydroxybutyrate autotrophic carbon assimilation cycle in the hyperthermophilic Archaeum Ignicoccus hospitalis[J]. Proceedings of the National Academy of Sciences of the United States of America, 2008, 105(22): 7851-7856 ( 0) |
| [19] |
Lannes R, Olsson-Francis K, Lopez P, et al. Carbon fixation by marine ultrasmall prokaryotes[J]. Genome Biology and Evolution, 2019, 11(4): 1166-1177 DOI:10.1093/gbe/evz050 ( 0) |
| [20] |
Figueroa I A, Barnum T P, Somasekhar P Y, et al. Metagenomics-guided analysis of microbial chemolithoautotrophic phosphite oxidation yields evidence of a seventh natural CO2 fixation pathway[J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(1): E92-E101 ( 0) |
| [21] |
Liao H, Hao X L, Qin F, et al. Microbial autotrophy explains large-scale soil CO2 fixation[J]. Global Change Biology, 2023, 29(1): 231-242 DOI:10.1111/gcb.16452 ( 0) |
| [22] |
Meador T B, Schoffelen N, Ferdelman T G, et al. Carbon recycling efficiency and phosphate turnover by marine nitrifying Archaea[J]. Science Advances, 2020, 6(19): eaba1799 DOI:10.1126/sciadv.aba1799 ( 0) |
| [23] |
Zhang Y, Qin W, Hou L, et al. Nitrifier adaptation to low energy flux controls inventory of reduced nitrogen in the dark ocean[J]. Proceedings of the National Academy of Sciences of the United States of America, 2020, 117(9): 4823-4830 ( 0) |
| [24] |
Alonso-Sáez L, Galand P E, Casamayor E O, et al. High bicarbonate assimilation in the dark by Arctic bacteria[J]. The ISME Journal, 2010, 4(12): 1581-1590 DOI:10.1038/ismej.2010.69 ( 0) |
| [25] |
Baltar F, Arístegui J, Sintes E, et al. Significance of non-sinking particulate organic carbon and dark CO2 fixation to heterotrophic carbon demand in the mesopelagic northeast Atlantic[J]. Geophysical Research Letters, 2010, 37(9): L09602 ( 0) |
| [26] |
Middelburg J J. Chemoautotrophy in the ocean[J]. Geophysical Research Letters, 2011, 38(24): L24604 ( 0) |
| [27] |
陈玉莹, 张志好, 刘勇勤. 冰川生态系统固碳微生物研究进展[J]. 微生物学报, 2020, 60(9): 2012-2029 ( 0) |
| [28] |
Wadham J L, Hawkings J R, Tarasov L, et al. Ice sheets matter for the global carbon cycle[J]. Nature Communications, 2019, 10: 3567 DOI:10.1038/s41467-019-11394-4 ( 0) |
| [29] |
Anesio A M, Hodson A J, Fritz A, et al. High microbial activity on glaciers: Importance to the global carbon cycle[J]. Global Change Biology, 2009, 15(4): 955-960 DOI:10.1111/j.1365-2486.2008.01758.x ( 0) |
| [30] |
Boyd E S, Hamilton T L, Havig J R, et al. Chemolithotrophic primary production in a subglacial ecosystem[J]. Applied and Environmental Microbiology, 2014, 80(19): 6146-6153 DOI:10.1128/AEM.01956-14 ( 0) |
| [31] |
Yuan H Z, Ge T D, Chen C Y, et al. Significant role for microbial autotrophy in the sequestration of soil carbon[J]. Applied and Environmental Microbiology, 2012, 78(7): 2328-2336 DOI:10.1128/AEM.06881-11 ( 0) |
| [32] |
Ge T D, Wu X H, Chen X J, et al. Microbial phototrophic fixation of atmospheric CO2 in China subtropical upland and paddy soils[J]. Geochimica et Cosmochimica Acta, 2013, 113: 70-78 DOI:10.1016/j.gca.2013.03.020 ( 0) |
| [33] |
Josep G. Canadell. Land use effects on terrestrial carbon sources and sinks[J]. Science in China Series C-Life Sciences, 2002, 45(s1): 1-9 ( 0) |
| [34] |
陈晓娟, 吴小红, 简燕, 等. 农田土壤自养微生物碳同化潜力及其功能基因数量、关键酶活性分析[J]. 环境科学, 2014, 35(3): 1144-1150 ( 0) |
| [35] |
Xiao H B, Li Z W, Deng C X, et al. Autotrophic bacterial community and microbial CO2 fixation respond to vegetation restoration of eroded agricultural land[J]. Ecosystems, 2019, 22(8): 1754-1766 DOI:10.1007/s10021-019-00369-7 ( 0) |
| [36] |
赵康, 张磊, 李凯凯, 等. 干旱区土壤自养微生物研究进展[J]. 中国沙漠, 2022, 42(5): 177-186 ( 0) |
| [37] |
Zhao K, Kong W D, Wang F, et al. Desert and steppe soils exhibit lower autotrophic microbial abundance but higher atmospheric CO2 fixation capacity than meadow soils[J]. Soil Biology and Biochemistry, 2018, 127: 230-238 DOI:10.1016/j.soilbio.2018.09.034 ( 0) |
| [38] |
张双双, 靳振江, 贾远航, 等. 岩溶地区不同土地利用方式土壤固碳细菌群落结构特征[J]. 环境科学, 2019, 40(1): 412-420 ( 0) |
| [39] |
Chen X B, Hu Y J, Xia Y H, et al. Contrasting pathways of carbon sequestration in paddy and upland soils[J]. Global Change Biology, 2021, 27(11): 2478-2490 DOI:10.1111/gcb.15595 ( 0) |
| [40] |
刘茗, 曹林桦, 刘彩霞, 等. 亚热带4种典型森林植被土壤固碳细菌群落结构及数量特征[J]. 土壤学报, 2021, 58(4): 1028-1039 ( 0) |
| [41] |
Akinyede R, Taubert M, Schrumpf M, et al. Rates of dark CO2 fixation are driven by microbial biomass in a temperate forest soil[J]. Soil Biology and Biochemistry, 2020, 150: 107950 DOI:10.1016/j.soilbio.2020.107950 ( 0) |
| [42] |
Huang Q, Huang Y M, Wang B R, et al. Metabolic pathways of CO2 fixing microorganisms determined C-fixation rates in grassland soils along the precipitation gradient[J]. Soil Biology and Biochemistry, 2022, 172: 108764 DOI:10.1016/j.soilbio.2022.108764 ( 0) |
| [43] |
Liu Z, Sun Y F, Zhang Y Q, et al. Metagenomic and 13C tracing evidence for autotrophic atmospheric carbon absorption in a semiarid desert[J]. Soil Biology and Biochemistry, 2018, 125: 156-166 DOI:10.1016/j.soilbio.2018.07.012 ( 0) |
| [44] |
Xia W W, Bowatte S, Jia Z J, et al. Offsetting N2O emissions through nitrifying CO2 fixation in grassland soil[J]. Soil Biology and Biochemistry, 2022, 165: 108528 DOI:10.1016/j.soilbio.2021.108528 ( 0) |
| [45] |
Berg E V D, Reich P. Organic carbon in soils of the world[J]. Soil Science Society of America Journal, 1993, 57(1): 192-194 DOI:10.2136/sssaj1993.03615995005700010034x ( 0) |
| [46] |
Smith P. Carbon sequestration in croplands: The potential in Europe and the global context[J]. European Journal of Agronomy, 2004, 20(3): 229-236 DOI:10.1016/j.eja.2003.08.002 ( 0) |
| [47] |
Guan P T, Zhang X K, Yu J, et al. Soil microbial food web channels associated with biological soil crusts in desertification restoration: The carbon flow from microbes to nematodes[J]. Soil Biology and Biochemistry, 2018, 116: 82-90 DOI:10.1016/j.soilbio.2017.10.003 ( 0) |
| [48] |
Cao J H, Wu X, Huang F, et al. Global significance of the carbon cycle in the karst dynamic system: Evidence from geological and ecological processes[J]. China Geology, 2018, 1(1): 17-27 DOI:10.31035/cg2018004 ( 0) |
| [49] |
Huang J P, Yu H P, Guan X D, et al. Accelerated dryland expansion under climate change[J]. Nature Climate Change, 2016, 6(2): 166-171 DOI:10.1038/nclimate2837 ( 0) |
| [50] |
Selesi D, Pattis I, Schmid M, et al. Quantification of bacterial RubisCO genes in soils by cbbL targeted real-time PCR[J]. Journal of Microbiological Methods, 2007, 69(3): 497-503 DOI:10.1016/j.mimet.2007.03.002 ( 0) |
| [51] |
王群艳, 吴小红, 祝贞科, 等. 土壤质地对自养固碳微生物及其同化碳的影响[J]. 环境科学, 2016, 37(10): 3987-3995 ( 0) |
| [52] |
周连玉, 巨家升, 马学兰, 等. 农田土壤自养微生物固碳潜力及影响因素的研究进展[J]. 山东农业科学, 2023, 55(6): 157-165 ( 0) |
| [53] |
Williams M A, Rice C W, Owensby C E. Carbon dynamics and microbial activity in tallgrass prairie exposed to elevated CO2 for 8 years[J]. Plant and Soil, 2000, 227(1/2): 127-137 ( 0) |
| [54] |
He Z L, Xu M Y, Deng Y, et al. Metagenomic analysis reveals a marked divergence in the structure of belowground microbial communities at elevated CO2[J]. Ecology Letters, 2010, 13(5): 564-575 DOI:10.1111/j.1461-0248.2010.01453.x ( 0) |
| [55] |
Yuan H Z, Ge T D, Zou S Y, et al. Effect of land use on the abundance and diversity of autotrophic bacteria as measured by ribulose-1, 5-biphosphate carboxylase/ oxygenase (RubisCO) large subunit gene abundance in soils[J]. Biology and Fertility of Soils, 2013, 49(5): 609-616 DOI:10.1007/s00374-012-0750-x ( 0) |
| [56] |
Wu X H, Ge T D, Wang W, et al. Cropping systems modulate the rate and magnitude of soil microbial autotrophic CO2 fixation in soil[J]. Frontiers in Microbiology, 2015, 6: 379 ( 0) |
| [57] |
Lu J, Qiu K C, Li W X, et al. Tillage systems influence the abundance and composition of autotrophic CO2-fixing bacteria in wheat soils in North China[J]. European Journal of Soil Biology, 2019, 93: 103086 DOI:10.1016/j.ejsobi.2019.103086 ( 0) |
| [58] |
马子钰, 马文林. 施肥对中国农田土壤固碳影响效应研究[J]. 土壤, 2022, 54(5): 905-911 DOI:10.13758/j.cnki.tr.2022.05.005 ( 0) |
| [59] |
柏菁, 李奕霏, 刘守龙, 等. 添加磷素对低磷稻田根际土壤固碳自养微生物数量的影响[J]. 环境科学, 2018, 39(12): 5672-5679 ( 0) |