 2026, Vol. 58


2. 西北土壤与地下水污染控制与修复技术研究中心, 兰州大学资源环境学院, 兰州 730000
新烟碱类杀虫剂(NENIs)因杀虫谱广、杀虫活性高、内吸性强等优点而被广泛应用。自20世纪80年代以来,NENIs已被许可在120多个国家的140多种作物中使用[1],全球市场份额在2014年已高达25%[2]。当前,我国已成为全球最大的NENIs生产、出口和消费国,年产量(按配方量计算)已经高达30 000 t,其中吡虫啉、噻虫胺、噻虫嗪是使用量最大的3种。随着NENIs的大量应用,其带来的环境问题也日益凸显。
植物位于食物链的开端,是污染物进入陆生食物链的关键环节。目前,NENIs在蔬菜和水果中广泛检出。根据美国农业部的报告,几乎所有水果和蔬菜样品都检测出NENIs[3]。Montiel-León等[4]的研究发现,吡虫啉(0.080 0~29.0 μg/kg)、噻虫胺(0.130~ 140 μg/kg)和啶虫脒(0.110~110 μg/kg)在生菜、苹果、葡萄和西红柿中的检出率最高。Chen等[5]和Ying等[6]发现蔬菜和水果中吡虫啉和啶虫脒的检出率达100%。另有研究横向分析了美国国会餐厅和中国杭州一所小学58名学生食用的蔬菜和水果中的7种NENIs,发现受检样本中噻虫嗪和吡虫啉检出率最高,其在杭州的蔬菜和水果的检出率分别为66% 和51%,在美国国会餐厅样本的检出率分别为52% 和53%,该研究进一步证实了NENIs在全球食品供应中普遍存在[7]。此外,NENIs具有良好的水溶性、内吸性及化学稳定性,剥皮、洗涤等食物前处理过程很难将其去除[7]。因此,探究NENIs在植物中的赋存特征及其健康风险至关重要。
在实际应用中,NENIs的施用方式主要包括土壤施用(随水灌溉、土壤喷施和用作种子包衣)和叶面喷施,其中土壤施用占60% 以上[8]。开放的农田环境具备有机污染物转化所需的诸多条件,如微生物、光照、水分等。NENIs自身含有杂环、桥键、硝基亚甲基、硝基亚氨基、氰基亚氨基等活性反应位点,在环境因素作用下易于发生转化[2]。因此,进入农田系统的NENIs很容易发生转化。由于具有较高的系统活性,这些NENIs转化产物会和母体一起累积于植物不同组织之中[9]。有部分研究在芹菜、菠菜、胡萝卜、棉花、生菜等作物中检测到NENIs的转化产物,涉及乙酰化、羟基化、脱烷基、水解、硝基还原等反应过程[10-11]。另有研究表明,部分NENIs转化产物的毒性高于其母体,尤其是当硝基和氰基脱去时,其毒性可能提高数个数量级。比如,噻虫啉的脱氰基和脱硝基产物对哺乳动物的毒性分别是其母体的195倍和441倍[12]。因此,早期仅基于其母体累积浓度的风险评估可能严重低估了其暴露总量和健康风险。
综上所述,本文通过盆栽试验对生菜和胡萝卜植株进行NENIs土壤暴露,通过QuEChERS法进行目标物质提取与净化,运用高效液相色谱–质谱/质谱(LC-MS/MS)对吡虫啉、噻虫胺、噻虫嗪及其代谢产物进行定性定量分析,探究其在生菜和胡萝卜体内的累积、迁移和代谢特征;结合根际微生物16S rRNA分析,揭示NENIs的转化机制;并基于母体与转化产物的整体暴露水平对其摄食风险进行评估。本研究结果将为作物中NENIs的人体健康风险管控提供理论依据。
1 材料与方法 1.1 试剂与仪器吡虫啉(Imidacloprid,≥97%)、噻虫嗪(Thiamethoxam,≥95%)购自上海麦克林生化科技有限公司;噻虫胺(Clothianidin,≥98%)购自上海源叶生物科技有限公司;吡虫啉烯烃(Imidacloprid-olefin,≥96%)、噻虫胺脲(Clothianidin-urea,≥99%)、去甲基噻虫胺(Clothianidin-desmethyl,≥97%)、去甲基噻虫嗪(Thiamethoxam-desmethyl,≥97%)购自英国医药公司(Laboratory of the Government Chemist);6-氯烟酸(6-Chloronicotinic Acid,≥98%)、吡虫啉脲(Imidacloprid-urea,≥95%)购自上海甄准生物科技有限公司。
本研究使用高效液相色谱(LC-40D X3,日本岛津公司)配备液相色谱柱(Kinetex 2.6 μm Biphenyl 100 A,LC Column 100×2.1 mm)对目标物进行分离。质谱为三重四极杆串联质谱系统(ABSCIEX QTRAPTM 6500,AB Sciex公司),采用ESI离子源(IonDriveTM Turbo V,AB Sciex公司),通过氮气发生器(广州莱奥实验室科技有限公司)提供仪器所需载气。
1.2 供试盆栽植物的培养生菜、胡萝卜种子购自广东省农业科学院。取适量种子,使用10% 过氧化氢溶液将其浸泡30 min以消毒,随后使用超纯水冲洗3~5次。选取籽粒饱满的种子播撒于育苗盘,在无光照的培养箱中(温度25 ℃,湿度70%)催芽。待其长出两片真叶后,选取长势一致的幼苗移植于装有1 kg土壤的花盆中,随后对14天龄幼苗进行NENIs暴露。共设置4个处理组:①植物对照组(P-CK),蔬菜盆栽浇灌超纯水50 mL;②植物NENIs暴露组(P-NENIs),蔬菜盆栽浇灌浓度分别为1 mg/L吡虫啉、噻虫胺、噻虫嗪混合溶液50 mL;③土壤对照组(S-CK),未移植蔬菜植株仅有土壤的花盆中浇灌超纯水50 mL;④土壤NENIs暴露组(S-NENIs),未移植蔬菜植株仅有土壤的花盆中浇灌浓度分别为1 mg/L吡虫啉、噻虫胺、噻虫嗪混合溶液50 mL。在暴露后的第0天(暴露后第12 h)以及第1、3、7、14、21、28、35天收集植物和土壤样品。
1.3 样品前处理与定量分析本试验采用QuEChERS法对土壤、生菜、胡萝卜样品中的NENIs母体及其转化产物进行提取。具体而言:称取冻干后的土壤样品0.1 g,加入5 mL乙腈,使用涡旋振荡仪提取3 min,在–20 ℃的条件下保存30 min,随后超声15 min,在4 000 r/min条件下离心10 min,取上清液,重复上述步骤2次。在分离出的上清液中加入0.5 g NaCl和2 g MgSO4,涡旋5 min,取上清液1 mL,加入含有10 mg PSA的2 mL离心管中,于8 000 r/min条件下离心5 min。上清液过0.22 μm滤膜,用于NENIs母体及转化产物的测定。生菜、胡萝卜样品也采用类似的提取方法进行提取,提取试剂分别为乙腈和含有0.5% 醋酸的乙腈,净化试剂分别为20 mg GCB、10 mg C18、10 mg PSA和10 mg GCB、10 mg C18、10 mg PSA。在样品提取前加入10 ng IMI-d4作为内标,样品平均回收率为80.41%~86.36%。本研究中目标NENIs及其转化产物的检出限为0.05~0.6 μg/kg,标准曲线的线性系数均大于0.99。
HPLC-MS/MS系统在正电喷雾电离(ESI+)条件下进行目标物的分离和分析。自动进样器和柱温箱的温度分别为15 ℃和45 ℃。流动相A相为水+0.1% 甲酸+2 mmol/L乙酸铵;B相为甲醇+0.1% 甲酸+2 mmol/L乙酸铵。液相色谱流速设定为0.3 mL/min,进样量设为5 μL。梯度洗脱程序为初始5% B,保持1 min,随后线性变化到100% B,3.5~7 min保持100% B。7.1 min线性变化到5% B,保持至9 min。采用多反应监测(MRM)模式进行定性、定量分析,扫描总时长为9 min。质谱条件为:离子源电压(IS)4 500 V;气帘气(CUR)35 psi;喷雾气(GS1)40 psi;辅助加热器(GS2)0 psi;离子源温度(TEM)450 ℃;碰撞气(CAD)LOW;碰撞室射出电压(CXP)10 V;质谱扫描范围为50~350 Da。
1.4 微生物的提取与检测方法收集NENIs暴露后第1天和第21天的土壤样品,通过16S rRNA基因测序分析其微生物群落组成变化。具体方法如下:取2 g左右附着在生菜、胡萝卜根表面的土壤,放入离心管中,–80 ℃冰箱冻存,用于16S rRNA分析(上海派森诺生物科技有限公司)。采用Illumina平台对群落DNA片段进行双端(Paired-end)测序,使用DADA2方法进行去引物、质量过滤、去噪、拼接和去嵌合体等步骤,得到特征序列(OTUs)。使用派森诺基因云在线数据处理平台(https://www.genescloud.cn/login)分析根际土壤样品的微生物群落变化与差异。
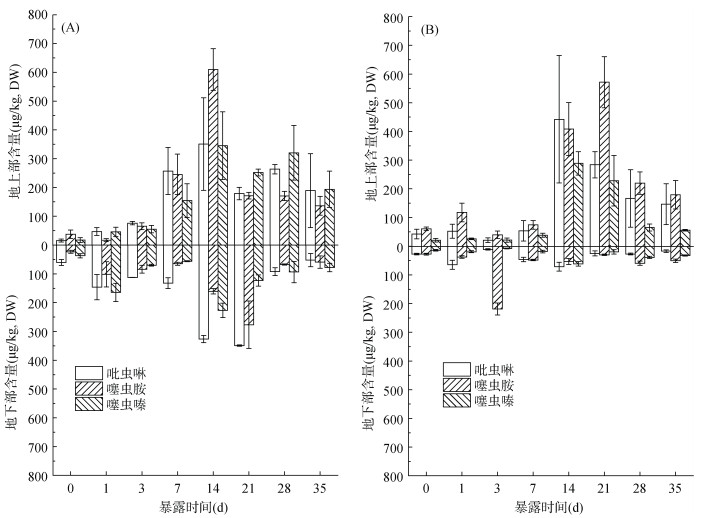
2 结果与讨论 2.1 三种NENIs在蔬菜中的累积特征NENIs暴露后,吡虫啉、噻虫胺、噻虫嗪在两种作物地上部和地下部累积量的动态变化如图 1所示。3种NENIs的累积量随暴露时间的延长整体呈先增加后减少的趋势。对于生菜而言,在暴露后的第0天(暴露后12 h),其地上部和地下部即可以检测到3种NENIs。随着时间的延长,生菜地上部吡虫啉、噻虫胺、噻虫嗪的积累量持续增高,并在第14天达到最大值,分别为351.62、610.84和346.14 μg/kg;在生菜地下部,吡虫啉和噻虫胺的积累量在第21天达到最大值,分别为348.73 μg/kg和276.57 μg/kg,而噻虫嗪则在第14天达到最大值226.79 μg/kg。NENIs暴露处理后的第0天,在胡萝卜地上部和地下部也检测到了3种NENIs。胡萝卜地上部吡虫啉和噻虫嗪积累量在第14天达到最大值,分别为443.58 μg/kg和289.81 μg/kg;噻虫胺则在第21天达到最大值,为572.79 μg/kg。在胡萝卜地上部,噻虫胺累积量最高,吡虫啉次之,噻虫嗪最低。在胡萝卜地下部,吡虫啉和噻虫嗪的积累量也于第14天达到峰值,分别为70.79 μg/kg和60.71 μg/kg;而噻虫胺的积累量则在第3天便达到最大值,为218.05 μg/kg。由于NENIs在根部积累的同时也存在着土壤降解过程以及地下部向地上部的迁移,吡虫啉、噻虫胺、噻虫嗪在胡萝卜地下部和地上部的累积一直处于动态变化之中[13]。
|
图 1 NENIs暴露后生菜(A)、胡萝卜(B)中吡虫啉、噻虫胺、噻虫嗪的累积动态 Fig. 1 Accumulation dynamics of imidacloprid, clothianidin and thiamethoxam in lettuces (A) and carrots (B) after NENIs exposure |
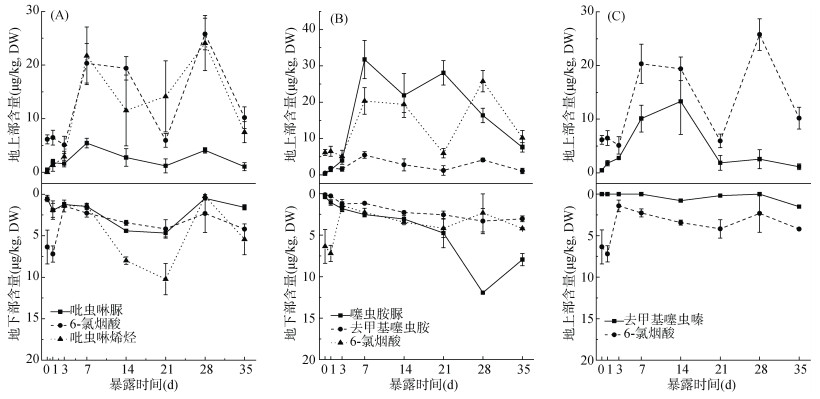
为探究3种NENIs在土壤–植物体系中的转化特征,对其转化产物的动态累积量进行了测定(图 2)。在生菜地上部,吡虫啉的转化产物吡虫啉烯烃、6-氯烟酸和吡虫啉脲含量在第7天出现第一个峰值,分别为21.72、20.32和5.45 μg/kg;随后3种转化产物的含量波动变化,并在第28天达到第2个峰值,其累积量分别为24.08、25.77和4.09 μg/kg;在暴露后第35天,3种转化产物在生菜地上部的含量均减少,残留量分别为7.48、10.19、1.05 μg/kg,其中6-氯烟酸的残留量最大。生菜地上部噻虫胺的代谢产物噻虫胺脲和去甲基噻虫胺的浓度随暴露时间呈先上升后下降的趋势;暴露后第7天,噻虫胺脲(31.76 μg/kg)和去甲基噻虫胺(5.45 μg/kg)的积累量达到峰值;第35天时,其残留量分别为7.57 μg/kg和1.05 μg/kg。噻虫嗪的转化产物去甲基噻虫嗪含量在第14天达到最大值,为13.31 μg/kg,随后其含量减少,第35天时残留量仅为1.13 μg/kg。
|
图 2 NENIs暴露后生菜中吡虫啉(A)、噻虫胺(B)、噻虫嗪(C)代谢产物随时间的变化规律 Fig. 2 Time-dependent changes in transformation products of imidacloprid (A), thiamethoxam (B), and thiacloprid (C) in lettuce |
生菜地下部吡虫啉转化产物吡虫啉烯烃和吡虫啉脲的积累量在第21天达到峰值,分别为10.23 μg/kg和4.67 μg/kg,随后含量降低,第35天时其残留量分别为5.43 μg/kg和1.58 μg/kg;6-氯烟酸的累积量在第1天达到峰值7.20 μg/kg,第35天时其残留量为4.20 μg/kg。噻虫胺的代谢产物噻虫胺脲和去甲基噻虫胺在第28天积累量最大,分别达到了11.93 μg/kg和3.31 μg/kg,第35天的残留量分别为7.96 μg/kg和3.03 μg/kg。在生菜地下部也可检测出微量噻虫嗪的转化产物去甲基噻虫嗪的残留,但含量相对稳定,第35天时其残留量为1.51 μg/kg。整体而言,3种NENIs转化产物含量在35 d内的变化趋势与其母体累积浓度随暴露时间的变化规律较为一致。
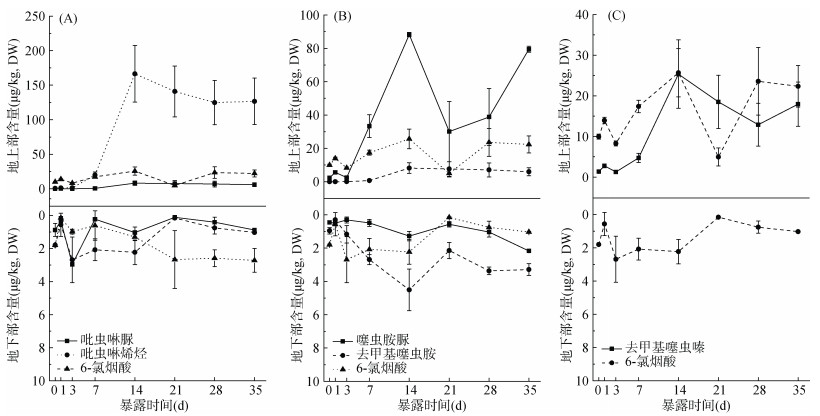
在胡萝卜中也观察到与生菜中类似的NENIs转化产物累积特征(图 3)。整体而言,NENIs转化产物在生菜和胡萝卜地上部的累积量高于其地下部,这与植物组织中的有机污染物在蒸腾拉力作用下转化产物不断向地上部分迁移有关[14]。
|
图 3 NENIs暴露后胡萝卜中吡虫啉(A)、噻虫胺(B)、噻虫嗪(C)代谢产物随时间的变化规律 Fig. 3 Time-dependent changes in transformation products of imidacloprid (A), thiamethoxam (B), and thiacloprid (C) in carrots |
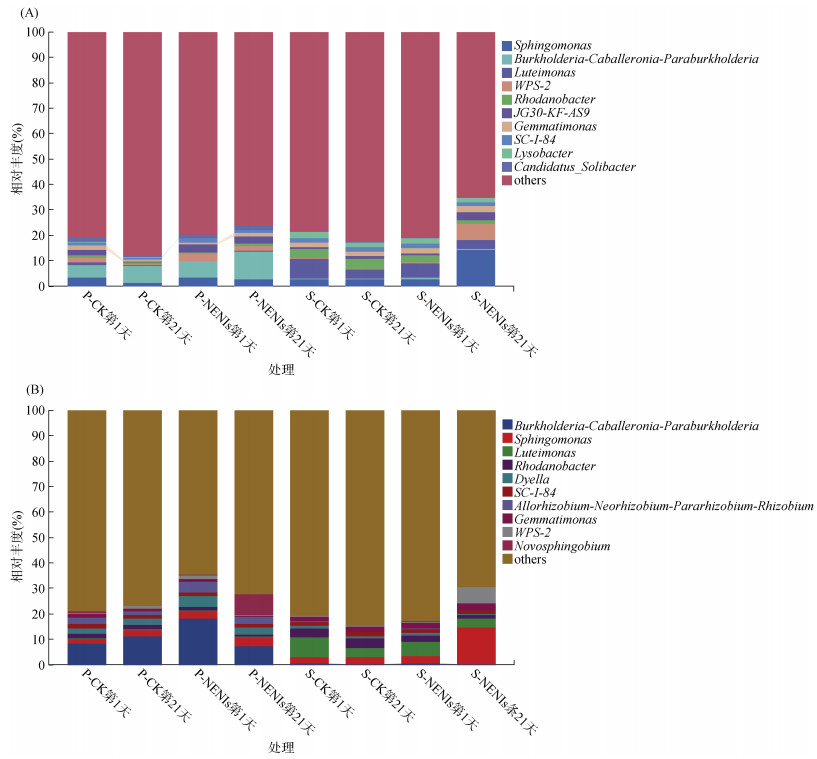
为探究3种NENIs在土壤–蔬菜体系中的代谢机制,分别对暴露后第1天和第21天的根际微生物群落进行分析。在属水平上(图 4),生菜根际微生物主要由鞘氨醇单胞菌(Sphingomonas)、伯克霍尔德菌(Burkholderia-Caballeronia-Paraburkholderia)、藤黄单胞菌(Luteimonas)组成,相对丰度分别为15.73%、16.41%、8.21%。与生菜对照组(P-CK)相比,生菜NENIs暴露组(P-NENIs)中伯克霍尔德菌的相对丰度值增加了5.19%,比土壤对照组(S-CK)高出15.53%;而藤黄单胞菌相对丰度值则比土壤对照组减小7.92%。与暴露第1天相比,暴露第21天的生菜NENIs暴露组中鞘氨醇单胞菌的相对丰度值减小0.58%;但第21天土壤NENIs暴露组(S-NENIs)中鞘氨醇单胞菌的相对丰度却发生显著性的增加,与第21天土壤对照组相比增加了12.28%。在胡萝卜根际微生物中也观察到类似现象(图 4B)。
|
图 4 生菜(A)、胡萝卜(B)样本根际微生物组成及相对丰度(属水平) Fig. 4 Rhizosphere microbial compositions and relative abundance of lettuce (A) and carrot (B) samples (genus level) |
NENIs暴露使生菜根际微生物中的伯克霍尔德菌属占比增加,藤黄单胞菌的占比减少。同时,在暴露过程中,鞘氨醇单胞菌属的含量也发生改变。微生物相对丰度不仅与农药在土壤中的降解有关[15],同时也是土壤多功能性的关键驱动因素[16]。目前国内外相关研究已从土壤中筛选并鉴定出大量对NENIs有降解作用的菌群。Gupta等[17]从农田土壤中分离得到变形菌门假单胞菌属的Pseudomonas sp RPT 52,40 h对吡虫啉的降解率达到了46.5%,另外分离到一株Burkholderia cepacia (strain CH9),20 d内对吡虫啉的降解率达69%[18]。Parte和Kharat[19]分离得到变形菌门假单胞菌属Pseudomonas stutzeri smk,对噻虫胺的降解率可达62%;另有研究表明,变形菌门假单胞菌属下Pseudomonas putida strain IMBL 5.2在15 d内可降解38.23% 噻虫嗪[20];变形菌门假单胞菌属下Pseudomonas sp.1G和根瘤菌属的Ensifer adhaerens strain TMX-23均对噻虫嗪有降解作用[21-22]。本研究观察到上述这些菌属的丰度变化规律与NENIs在土壤中的消解趋势一致。结合土壤与生菜和胡萝卜中检测到的转化产物种类组成的差异可知,土壤中的NENIs在伯克霍尔德菌、假单胞菌属、根瘤菌属等微生物的作用下发生降解,从而使其转化产物存在于根际土壤中,随后生菜和胡萝卜从土壤中吸收和累积NENIs母体的同时也富集其转化产物。
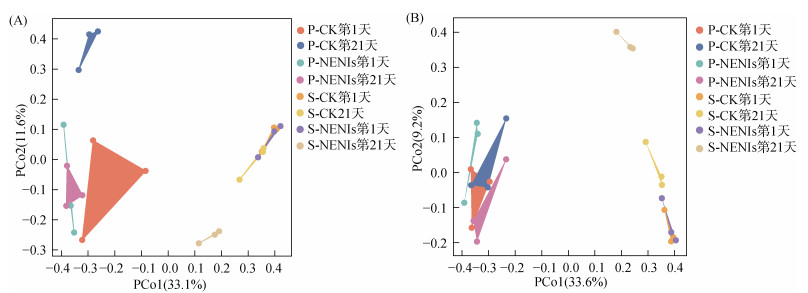
为了进一步探究NENIs暴露处理条件下生菜、胡萝卜根际微生物的差异,使用正交偏最小二乘判别分析(OPLS-DA)进行数据解析。由OPLS-DA得分图(图 5)可知,对于生菜根际微生物,PCo1和PCo2分别解释了总方差的33.1% 和11.6%,不同处理之间在PCo1和PCo2方向上有明显差异。整体而言,有生菜组和无生菜组表现得最为分散,说明了有无植物是影响根际微生物结构差异的重要因素,这主要与植物根系分泌物对根际微生物群落的丰度和组成的影响有关[23]。同时,第21天生菜对照组与NENIs暴露组的差异大于其在第1天的差异,说明了NENIs暴露可以引起生菜根部微生物群落结构差异,且差异程度随着时间的延长而累加,并且在土壤对照组和土壤NENIs暴露组中也存在相同的规律。这与NENIs暴露末期,其母体浓度降低,转化产物组成和浓度差异逐渐增大有关[24]。
|
图 5 生菜(A)、胡萝卜(B)样本根际微生物的OPLS-DA分析结果(属水平) Fig. 5 OPLS-DA analysis of rhizosphere microorganisms of lettuce(A) and carrot (B) samples (genus level) |
胡萝卜不同处理组的根际微生物得分图分布规律与其在生菜中的趋势相似,但相对而言,NENIs暴露对胡萝卜根际微生物群落结构的影响小于生菜。这主要与NENIs在生菜和胡萝卜组织中的累积和迁移差异有关[25]。由NENIs母体与转化产物的迁移系数(地下部到地上部)可知,暴露第21天胡萝卜中吡虫啉、噻虫胺、噻虫嗪迁移系数分别为11.65、19.72、12.15,其在生菜中则分别为0.51、0.62、0.48;胡萝卜中吡虫啉烯烃、吡虫啉脲、噻虫胺脲、去甲基噻虫胺、去甲基噻虫嗪、6-氯烟酸的迁移系数分别为52.81、63.58、52.74、3.55、185.10和31.06;其在生菜中则分别为1.38、0.40、5.91、0.47、5.28和1.42。说明胡萝卜中NENIs及其转化产物更容易向地上部迁移,其地上迁移系数大于生菜,且胡萝卜根部残留量较低,相对而言其微生物的响应较不显著。
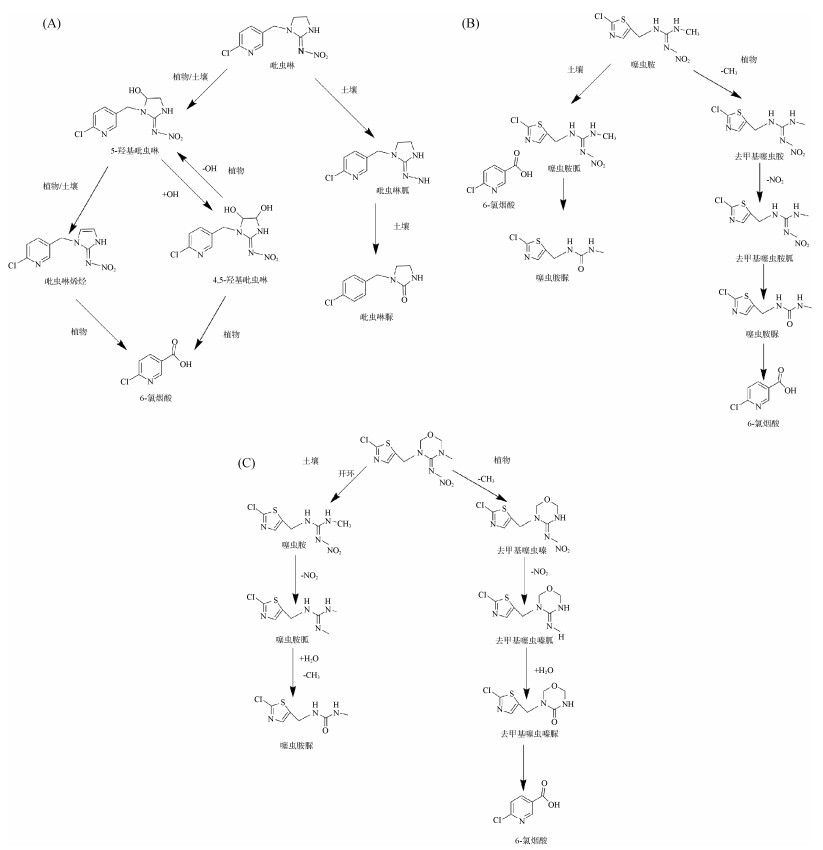
转化产物检测结果发现,在土壤NENIs暴露(无植物)组以及生菜、胡萝卜NENIs暴露组中均检测到噻虫胺脲、吡虫啉脲和吡虫啉烯烃3种代谢产物,而去甲基噻虫胺、去甲基噻虫嗪和6-氯烟酸仅在生菜和胡萝卜组织中检出。结合暴露过程中根际微生物群落变化特征可知,噻虫胺脲、吡虫啉脲、吡虫啉烯烃可能主要由相应的母体在土壤中经微生物转化产生,然后被生菜和胡萝卜吸收;而去甲基噻虫胺、去甲基噻虫嗪和6-氯烟酸则是由其母体或者土壤转化产物被吸收到蔬菜组织中以后经植物内源代谢所产生[15]。由此得出吡虫啉、噻虫胺、噻虫嗪在蔬菜、土壤中的代谢途径如图 6所示。
|
图 6 吡虫啉(A)、噻虫胺(B)、噻虫嗪(C)在植物和土壤中的代谢途径 Fig. 6 Metabolic pathways of imidacloprid (A), clothianidin (B) and thiamethoxam (C) in plants and soil |
风险评估在农田土壤质量分类和农药风险管控中起着重要作用[26]。本研究中3种NENIs的转化产物在生菜和胡萝卜可食部分均有检出。因此,本研究将根据NENIs母体及其转化产物的总体暴露水平进行摄食风险评估。参考Zhang等[9]的方法,NENIs及其转化产物的日摄入量(EDIs,单位ng/(kg·d),以人体单位体重计,下同)=NENIs或其转化产物的平均含量(ng/g,FW)×新鲜生菜/胡萝卜的平均摄入量(g/(kg·d) (可食部分,未烹饪重量)。生菜、胡萝卜的含水率分别为92.3% 和85.2%。根据USEPA的标准,生菜和胡萝卜的平均每日摄入量分别为0.44和0.30 g/(kg·d)。此外,转化产物与母体相当的日摄入量(EDIsTP-P)按照公式(1)计算:
| $ {\text{EDI}}{{\text{s}}_{{\text{TP - P}}}} = \frac{{{\text{EDI}}{{\text{s}}_{{\text{TP}}}} \times {M_{\text{P}}}}}{{{M_{{\text{TP}}}}}} $ | (1) |
式中:MP和MTP分别为NENIs和其相应转化产物的摩尔质量。某一种母体转化产物的摄入量(EDI)为其所有产品转化产物等效摄入量之和:
| $ {\text{EDI = }}\sum\limits_{i = 1}^n {{\text{EDI}}{{\text{s}}_{{\text{TP}}i - {\text{P}}}}} = \sum\limits_{i = 1}^n {\frac{{{\text{EDI}}{{\text{s}}_{{\text{TP}}i}} \times {M_{\text{P}}}}}{{{M_{{\text{TP}}i}}}}} $ | (2) |
吡虫啉、噻虫胺和噻虫嗪及其转化产物在生菜和胡萝卜可食部位的摄食风险评估结果如表 1所示。在只考虑母体健康风险的情况下,摄食生菜条件下吡虫啉、噻虫胺、噻虫嗪的日摄食量分别为1 084.85、782.86和1 111.03 ng/(kg·d),摄食胡萝卜条件下其日摄食量为33.16、101.19、63.49 ng/(kg·d)。而在考虑母体和代谢产物整体健康风险的情况下,生菜中3种NENIs的日摄食量分别提高了7.23%、8.34% 和0.57%;其在胡萝卜中则分别提高了24.64%、9.79% 和0.65%,其中吡虫啉烯烃对摄食量的提高贡献最大(13.2%)。因此,未来在评估NENIs的摄食风险时应将部分贡献较大的转化产物考虑在内。
|
表 1 摄食生菜与胡萝卜条件下NENIs及其转化产物的平均日估计摄入量 Table 1 Average daily intakes of NENIs and their transformation products in edible parts of lettuce and carrots |
1) NENIs(吡虫啉、噻虫胺、噻虫嗪)在受试植物中的吸收和转化过程同时发生。
2) 噻虫胺脲、吡虫啉脲、吡虫啉烯烃由相应母体在土壤中经微生物代谢作用产生,然后通过根系吸收并进一步向生菜和胡萝卜地上部迁移;而去甲基噻虫胺、去甲基噻虫嗪和6-氯烟酸则是经生菜和胡萝卜从土壤中吸收其母体或者土壤转化产物后进一步进行内源代谢所产生。
3) 转化产物使吡虫啉、噻虫胺、噻虫嗪在生菜和胡萝卜可食部位的摄食风险分别提高了0.57%~8.34% 和0.65%~24.64%。因此,NENIs转化产物的摄食风险不容忽视,在未来的健康风险评估体系中可适当将对风险贡献较大的转化产物考虑在内。
| [1] |
杨吉春, 李淼, 柴宝山, 等. 新烟碱类杀虫剂最新研究进展[J]. 农药, 2007, 46(7): 433-438 (  0) |
| [2] |
李田田, 郑珊珊, 王晶, 等. 新烟碱类农药的污染现状及转化行为研究进展[J]. 生态毒理学报, 2018, 13(4): 9-21 ( 0) |
| [3] |
European Food Safety Authority
. Peer review of the pesticide risk assessment for bees for the active substance clothianidin considering the uses as seed treatments and granules[J]. EFSA Journal, 2018 ( 0) |
| [4] |
Montiel-León J M, Duy S V, Munoz G, et al. Occurrence of pesticides in fruits and vegetables from organic and conventional agriculture by QuEChERS extraction liquid chromatography tandem mass spectrometry[J]. Food Control, 2019, 104: 74-82 DOI:10.1016/j.foodcont.2019.04.027 ( 0) |
| [5] |
Chen M, Tao L, McLean J, et al. Quantitative analysis of neonicotinoid insecticide residues in foods: Implication for dietary exposures[J]. Journal of Agricultural and Food Chemistry, 2014, 62(26): 6082-6090 DOI:10.1021/jf501397m ( 0) |
| [6] |
Ying J W, Zhou X J, Zhu M Y, et al. The contribution of diffusion tensor imaging to quantitative assessment on multilevel cervical spondylotic myelopathy[J]. European Neurology, 2016, 75(1/2): 67-74 ( 0) |
| [7] |
Lu C S, Chang C H, Palmer C, et al. Neonicotinoid residues in fruits and vegetables: An integrated dietary exposure assessment approach[J]. Environmental Science & Technology, 2018, 52(5): 3175-3184 ( 0) |
| [8] |
Morrissey C A, Mineau P, Devries J H, et al. Neonicotinoid contamination of global surface waters and associated risk to aquatic invertebrates: A review[J]. Environment International, 2015, 74: 291-303 DOI:10.1016/j.envint.2014.10.024 ( 0) |
| [9] |
Zhang Q, Yang Y Y, Shang N X, et al. Identification and coexposure of neonicotinoid insecticides and their transformation products in retail cowpea (Vigna unguiculata)[J]. Environmental Science & Technology, 2023, 57(48): 20182-20193 ( 0) |
| [10] |
葛玲, 王新, 张亚楠. 新烟碱类杀虫剂降解特性研究进展[J]. 土壤, 2022, 54(6): 1093-1100 DOI:10.13758/j.cnki.tr.2022.06.001 ( 0) |
| [11] |
Mei J J, Ge Q Q, Han L X, et al. Deposition, distribution, metabolism, and reduced application dose of thiamethoxam in a pepper-planted ecosystem[J]. Journal of Agricultural and Food Chemistry, 2019, 67(43): 11848-11859 DOI:10.1021/acs.jafc.9b02645 ( 0) |
| [12] |
Tomizawa M, Casida J E. Neonicotinoid insecticide toxicology: Mechanisms of selective action[J]. Annual Review of Pharmacology and Toxicology, 2005, 45: 247-268 DOI:10.1146/annurev.pharmtox.45.120403.095930 ( 0) |
| [13] |
Xu T B, Dyer D G, McConnell L L, et al. Clothianidin in agricultural soils and uptake into corn pollen and canola nectar after multiyear seed treatment applications[J]. Environmental Toxicology and Chemistry, 2015, 35(2): 311-321 DOI:10.1002/etc.3281 ( 0) |
| [14] |
Mohapatra S, Siddamallaiah L, Matadha N Y, et al. Dissipation of neonicotinoid insecticides imidacloprid, indoxacarb and thiamethoxam on pomegranate (Punica granatum L.)[J]. Ecotoxicology and Environmental Safety, 2019, 171: 130-137 DOI:10.1016/j.ecoenv.2018.12.070 ( 0) |
| [15] |
Hussain S, Hartley C J, Shettigar M, et al. Bacterial biodegradation of neonicotinoid pesticides in soil and water systems[J]. FEMS Microbiology Letters, 2016, 363(23): fnw252 DOI:10.1093/femsle/fnw252 ( 0) |
| [16] |
李桂龙, 王于娟, 冷珂, 等. 绿肥填闲种植下土壤细菌群落特性对土壤多功能性的调控[J]. 土壤, 2024, 56(6): 1253-1261 DOI:10.13758/j.cnki.tr.2024.06.013 ( 0) |
| [17] |
Gupta M, Mathur S, Sharma T K, et al. A study on metabolic prowess of Pseudomonas sp. RPT 52 to degrade imidacloprid, endosulfan and coragen[J]. Journal of Hazardous Materials, 2016, 301: 250-258 DOI:10.1016/j.jhazmat.2015.08.055 ( 0) |
| [18] |
Madhuban G, Debashis D, Jha S K, et al. Biodegradation of imidacloprid and metribuzin by Burkholderia cepacia strain CH9[J]. Pesticide Research Journal, 2012, 23(1): 36-40 ( 0) |
| [19] |
Parte S G, Kharat A S. Aerobic degradation of clothianidin to 2-chloro-methyl thiazole and methyl 3-(thiazole-yl) methyl guanidine produced byPseudomonas stutzerismk[J]. Journal of Environmental and Public Health, 2019, 4807913 ( 0) |
| [20] |
Rana S, Jindal V, Mandal K, et al. Thiamethoxam degradation by Pseudomonas and Bacillus strains isolated from agricultural soils[J]. Environmental Monitoring and Assessment, 2015, 187(5): 300 DOI:10.1007/s10661-015-4532-4 ( 0) |
| [21] |
Pandey G, Dorrian S J, Russell R J, et al. Biotransformation of the neonicotinoid insecticides imidacloprid and thiamethoxam by Pseudomonas sp. 1G[J]. Biochemical and Biophysical Research Communications, 2009, 380(3): 710-714 DOI:10.1016/j.bbrc.2009.01.156 ( 0) |
| [22] |
Zhou G C, Wang Y, Zhai S, et al. Biodegradation of the neonicotinoid insecticide thiamethoxam by the nitrogen-fixing and plant-growth-promoting rhizobacterium Ensifer adhaerens strain TMX-23[J]. Applied Microbiology and Biotechnology, 2013, 97(9): 4065-4074 DOI:10.1007/s00253-012-4638-3 ( 0) |
| [23] |
Radolinski J, Wu J X, Xia K, et al. Plants mediate precipitation-driven transport of a neonicotinoid pesticide[J]. Chemosphere, 2019, 222: 445-452 DOI:10.1016/j.chemosphere.2019.01.150 ( 0) |
| [24] |
Pang S M, Lin Z Q, Zhang W P, et al. Insights into the microbial degradation and biochemical mechanisms of neonicotinoids[J]. Frontiers in Microbiology, 2020, 11: 868 DOI:10.3389/fmicb.2020.00868 ( 0) |
| [25] |
Yu B, Chen Z Y, Lu X X, et al. Effects on soil microbial community after exposure to neonicotinoid insecticides thiamethoxam and dinotefuran[J]. Science of the Total Environment, 2020, 725: 138328 DOI:10.1016/j.scitotenv.2020.138328 ( 0) |
| [26] |
龙新宪, 刘文晶, 仇荣亮. 中国农田土壤重金属污染的人体健康风险评估: 研究进展与展望[J]. 土壤学报, 2024, 61(5): 1188-1200 ( 0) |
2. Technology Research Center for Pollution Control and Remediation of Northwest Soil and Groundwater, College of Earth and Environmental Sciences, Lanzhou University, Lanzhou 730000, China