 2026, Vol. 58


2. 中国科学院南京土壤研究所, 南京 211135;
3. 中国科学院城市环境研究所, 福建厦门 361021;
4. 江苏省地质局生态地质调查大队, 南京 210012
新污染物(Emerging contaminants)是指环境中新发现或新被关注的一类对人体健康和生态环境产生不利影响的污染物[1]。与传统污染物相比,新污染物的毒性和环境行为更加复杂,不仅通过多种途径进入土壤并长期积累固持,还能进行长距离迁移和物化、生物层面的多种转化,产生难以预见的危害效应[2]。当前,新污染物研究主要包括持久性有机污染物、内分泌干扰物、抗生素、抗生素抗性基因(Antibiotic resistance genes,ARGs)和微塑料等类型。由于其复杂性和潜在危害,新污染物治理逐渐成为污染土壤修复科学研究的国际前沿[1-2]。
蚯蚓作为土壤中典型的大型动物,通过摄食、代谢等活动参与土壤养分循环和污染物转化过程,在土壤生态系统中发挥着重要作用。基于生活习性和功能特点,蚯蚓分为表栖型、内栖型和深栖型3种生态类型。表栖型生活于地表枯落物层,以凋落物为食;内栖型栖息在浅层矿质土壤中,挖掘水平洞穴并取食根际物质;深栖型则居于深层土壤,挖掘深穴并将地表凋落物拖入洞中食用[3]。其中,表栖型蚯蚓因具有繁殖力强、生长周期短、繁殖率高、适应能力强等特点,在废弃物资源化处理中展现出显著优势[4],以赤子爱胜蚓(Eisenia fetida)最为常见。蚯蚓堆肥过程中,其与微生物的协同作用显著加速污染物降解与转化。蚯蚓肠道富含大量功能菌群和消化酶,是有机废弃物消化降解的主要场所。同时,蚯蚓肠道中的小分子有机物是形成蚓粪肥中丰富养分的重要基础,为微生物提供可利用的碳源和能量,从而激发功能微生物的活性,促进新污染物降解。此外,蚓粪肥中微生物的代谢活动还能直接参与新污染物消减过程,比如通过氧化还原、共代谢等途径降解土壤中残留的新污染物[5-6]。因而,蚓粪肥不仅能有效改善土壤理化性质,还通过微生物介导的生物化学反应促进新污染物消减,对增强土壤自净能力、维持土壤健康以及农业可持续发展具有重要意义。
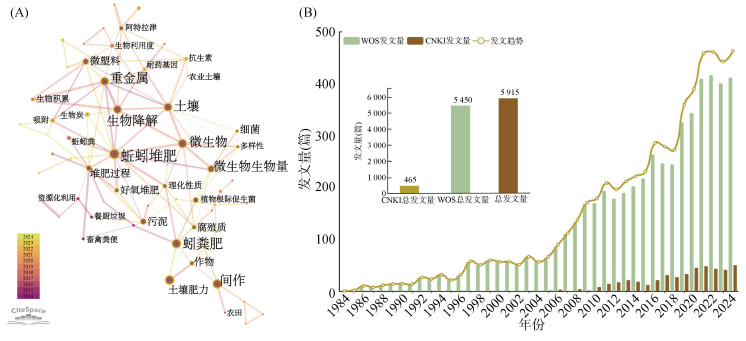
本文采用文献计量学方法,基于中国知网和Web of Science数据库,以蚓粪肥微生物、新污染物和生物降解为主题,检索蚓粪肥微生物组消减土壤中新污染物的研究进展。图 1表明,1984—1995年间,蚓粪肥论文年平均发文量15篇,处于萌芽时期;1996—2018年为稳步增长阶段,年均发文量约137篇,呈逐年上升趋势;2019—2024年为快速发展时期,年均发文量增长至429篇,全球关注度持续提升。近十年关键词共现分析显示,“蚯蚓堆肥”“土壤”“生物降解”“微生物群落”“重金属”等为蚓粪肥领域核心关键词,反映出当前蚓粪肥领域的研究热点主要集中在不同基质下蚓粪肥微生物组在土传病害防治及植物促生方面发挥的作用以及生物降解污染物等方面;而“耐药基因”“抗生素”等关键词出现时间较晚,蚓粪肥对土壤新污染物的生物修复正逐渐成为环境科学领域的新兴研究热点。此外,本文还发现,蚓粪肥微生物组促进新污染物消减领域的论文成果主要内容包括:①功能菌群降解污染物机制,即微生物通过介导氧化还原反应、酶促反应、共代谢等途径驱动新污染物转化分解;②蚯蚓辅助强化生物降解,蚯蚓肠道菌群及代谢产物显著提升蚓粪肥中微生物丰度,加速新污染物矿化降解;③消减效果的影响因素,包括土壤环境条件、菌群互作及污染物特性等,这些因素在微生物消解新污染物过程中发挥重要作用。然而,当前研究仍存在一定局限,如在复合污染场景下,蚓粪肥功能菌对污染物的消减效果及其与土著菌群的协同降解机制等方面的研究尚显缺乏。
|
(A. 关键词共现网络;B. 发文量统计) 图 1 1984—2024年间蚓粪肥相关的文献计量分析 Fig. 1 Bibliometric analysis of vermicompost-related research (1984—2024) |
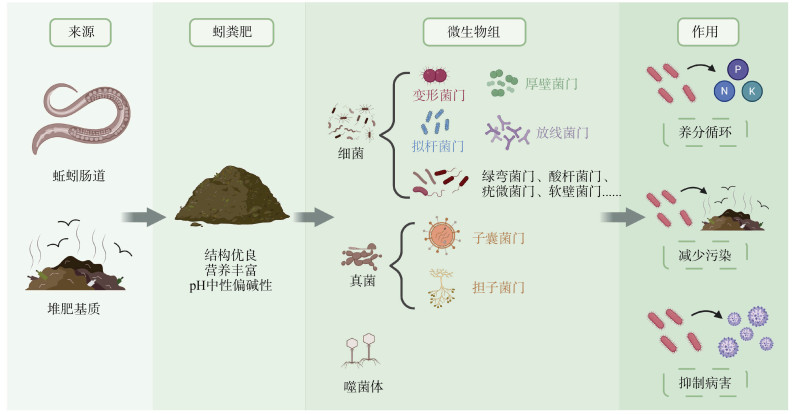
微生物组是特定时间和生境中细菌、真菌和病毒等全部微生物及其基因序列的总和。蚓粪肥中的微生物组来源于堆肥基质和蚯蚓肠道(图 2)。其中,堆肥基质为微生物提供初始的群落基础,而蚯蚓肠道则通过筛选和富集等过程进一步塑造微生物群落的结构和功能[7]。这种微生物组成的差异直接影响蚓粪肥对新污染物消解的速率和程度。因此,明晰蚓粪肥中微生物组成的来源及特点,为探明蚓粪肥微生物组消减土壤新污染物的机制提供科学依据。
|
图 2 蚓粪肥微生物组 Fig. 2 Vermicompost microbiome |
蚯蚓在堆肥过程中摄取有机废物,通过其消化道酶系统和微生物进行消化分解,经蚯蚓和微生物协同堆肥化处理后,最终形成蚓粪肥[8]。较多研究表明,初始基质是影响蚯蚓堆肥微生物群落组成的关键因素。如Aira等[9]发现,蚓粪微生物群落组成与多样性显著依赖食物来源,这可能与有机质含量及其分解速率有关。与此同时,不同基质对蚓粪肥中功能菌群的富集具有定向驱动作用。李建辉等[10]在以蔬菜废弃物、牛粪和污泥为基质的蚯蚓堆肥中,发现蚓粪肥优势菌群分别为变形菌门、拟杆菌门和放线菌门,表明基质碳氮比、有机质组成等特征塑造了微生物群落差异。此外,由于蚯蚓肠道含氧量较低,更适宜厌氧或兼性厌氧菌的生存,所以经肠道消化后排出的蚓粪中厌氧菌数量高于原始基质[11]。Zhu等[12]研究表明,蚯蚓肠道内携带脱卤基因与农药降解基因的特定菌群(如假单胞菌属),可与土著菌群协同降解有机农药,缓解土壤污染。因此,蚯蚓堆肥中微生物群落构建受多重因素影响,初始基质作为营养来源是关键驱动因素,而蚯蚓肠道微生物在调控群落结构及有机质转化中也发挥重要作用。
1.2 蚓粪肥微生物组成特点蚓粪肥结构类似泥炭,pH近中性,富含养分与微生物酶,适宜细菌、真菌和噬菌体等多种微生物定殖[13]。相较于传统高温堆肥以嗜热微生物为主,蚯蚓堆肥是一种以中温细菌和真菌为特征的非嗜热过程[8],不仅耗时更短,还富含各种固氮菌、拮抗菌和降解菌等有益微生物,在改善土壤生态系统方面发挥重要作用。黄魁等[14]发现,污泥蚯蚓堆肥中细菌群落的Chao1指数和Shannon指数均高于传统堆肥,放线菌与根瘤菌丰度分别提高13.1% 和2.5%,促进植物固氮。Chen等[15]以玉米秸秆和牛粪为基质进行蚯蚓堆肥,发现纤维素和木质素降解真菌的显著增加进一步加速了有机废物的转化。此外,Pathma和Sakthivel[16]从蚓粪肥中分离出193株具有抑制土传病害和植物促生潜力的功能细菌,它们以芽孢杆菌属(57%)、假单胞菌属(15%)和微杆菌属(12%)为主,同时包含不动杆菌属和金黄杆菌属等有益菌群。Wu等[17]研究发现,蚓粪肥可通过提升土壤细菌与噬菌体丰度及其互作,增强土壤对污染的缓解能力。总之,蚓粪肥结构优良且营养丰富,富含有益微生物,在养分循环、病害抑制和污染物解毒等方面发挥重要作用。
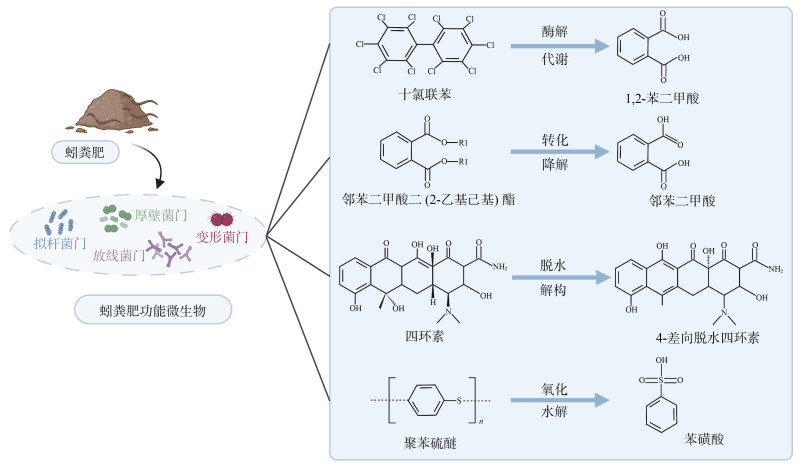
2 蚓粪肥微生物组对土壤新污染物的消减近年来,随着我国经济的发展、工农业活动的加剧以及城市化进程的推进,土壤系统中新污染物的检出率呈显著上升趋势[18-19]。相较于传统有机肥,蚓粪肥不仅具有更高的微生物丰度和多样性,还富含多种污染物降解菌,对改善土壤微生态环境及提升污染修复效能具有重要应用价值(图 3)。
|
图 3 蚓粪肥微生物组消减新污染物 Fig. 3 Vermicompost microbiome elimination of emerging contaminants |
作为新污染物的重要组成部分,持久性有机污染物因其高毒性、难降解性、远距离迁移性以及生物富集性而被称为是环境中的“幽灵”[20]。较多的研究表明,蚓粪肥可以有效降低环境中多环芳烃(polycyclic aromatic hydrocarbons)、多氯联苯(polychlorinated biphenyls)和有机氯农药(organochlorine pesticide)等常见持久性有机污染物的浓度。以多环芳烃为例,Contreras-Ramos等[21]发现,蚓粪肥施用70 d后,菲(phenanthrene)、蒽(anthracene)和苯并[a]芘(benzo[a] pyrene)的降解率分别达到99%、70% 和28%。蚓粪肥之所以能促进持久性有机污染物的消减,可能是因为其刺激了土著降解菌的活性以及引进新的降解菌。研究表明,施用蚓粪肥不但引入了假单胞菌属、柠檬酸菌属和不动杆菌属等多环芳烃降解菌,还提高了土著功能菌群的微生物降解效率[22],进而有效削减环境中的多环芳烃及其衍生物。同时,蚯蚓堆肥过程中丰富的酶促反应以及较高水平的酶活性也是持久性有机污染物降解的重要原因。Zenteno-Rojas等[23]在蚯蚓堆肥中分离出编码联苯降解酶的芽孢杆菌属(Bacillus)和葡萄球菌属(Staphylococcus),这些菌属可以将十氯联苯作为碳源,并通过酶促方式降解部分有机氯化合物。此外,蚓粪肥微生物(如红球菌属、芽孢杆菌属)还参与持久性有机污染物的共代谢降解过程。这些微生物不仅能够降解多氯联苯同系物(如2, 4, 4'-三氯联苯和2, 2', 5, 5'-四氯联苯),而且还能优先降解在对位(4, 4′)和间位(3, 5, 3′, 5′)中含有氯原子的多氯联苯化合物,最终将其转化为低氯代产物、CO2和H2O[24]。Chao等[25]在蚓粪肥中鉴定出硝基氯苯类农药降解代谢补偿潜力的噬菌体,它们与土壤细菌共同促进污染物的生物降解。这可能是噬菌体通过感染宿主细菌,促进了具有降解污染物的辅助代谢功能基因向宿主细菌的水平转移,从而提升农药降解效率。因此,对于土壤中的持久性有机污染物,蚓粪肥通过引入功能微生物、激活土著降解菌、强化酶促反应以及噬菌体介导共代谢途径等,进而有效消减土壤中持久性有机污染物。
2.2 蚓粪肥微生物组对内分泌干扰物的降解内分泌干扰物又称环境激素,是指人为释放到环境中并可通过干扰生物自身体内正常激素水平,从而对人体和动物的生殖、神经和免疫系统等产生影响的一类外源性化学物质[26]。邻苯二甲酸二(2-乙基己基)酯(di-2-ethylhexyl phthalate,DEHP)是一种典型的内分泌干扰物,在我国广泛应用于塑料制品如农用地膜等,可通过多种途径进入人体并产生毒性[27]。Zhen等[28]利用DNA稳定同位素探测技术发现,生物质炭辅助蚯蚓堆肥(42 d)促进农田土壤环境中80% 的DEHP降解。此外,蚓粪肥中DEHP降解菌的富集,包括伯克霍尔德氏菌科(Burkholderiaceae)、鞘氨醇单胞菌科(Sphingomonadaceae)和黄杆菌科(Flavobacteriaceae)等,提高了DEHP的最终降解效率。阿特拉津作为一种在我国广泛使用的三嗪类除草剂,沿食物链逐级传播并具有致突变性和遗传毒性[29]。Luo等[30]发现在红壤中施用蚓粪肥40 d后阿特拉津的去除效率高达93.97%。一方面,蚓粪肥通过提升土壤pH、有机质及腐殖酸类物质(黄腐酸、腐殖酸)含量,优化降解环境;另一方面,蚓粪肥的施用激活了如假单胞菌科(Pseudomonadaceae)、链霉菌科(Streptomycetaceae)和高温单孢菌科(Thermomonosporaceae)等阿特拉津土著降解菌的活性,并引入糖单胞菌科(Saccharimonadaceae)等新功能菌,形成菌群协同降解网络。此外,研究表明,蚓粪肥的施用还可显著消解土壤中三氯生(triclosan)和米氮平(mirtazapine)等广谱抗菌剂。Dume等[31]以污泥混合干秸秆颗粒为基质进行蚯蚓堆肥,经120 d后发现,蚓粪肥通过有机质吸附和微生物降解的共同作用,使得三氯生和米氮平的消解效率分别达到37% 和14%,且对其他内分泌干扰物如双氯芬酸、西酞普兰和卡马西平等也表现出不同程度的消减。Carnimeo等[32]在黄瓜种植土壤中施用蚓粪肥,38 d后黄瓜植株中双酚A、辛基酚和壬基酚的残留量分别显著降低了89%、93% 和93%。因此,蚓粪肥微生物对环境中的多种内分泌干扰物均具有较为广谱的消减效果,其中部分内分泌干扰物如DEHP和阿特拉津的降解效率能够在较短时间内达到80%~90%,展现了较大的应用潜力。
2.3 蚓粪肥微生物组对抗生素及抗生素抗性基因的消减近年来,抗生素和抗生素抗性基因在土壤中不断积累和传播,对土壤环境和人体健康构成重大挑战。目前,关于蚓粪肥微生物对抗生素及抗生素抗性基因消减作用的研究,主要聚焦于四环素、磺胺等类型抗生素及其相关抗性基因[33]。Guo等[34]发现,蚯蚓堆肥不但有效降低了抗生素耐药细菌的相对丰度(约92%),还抑制了抗生素抗性基因的传播。Huang等[35]以污泥为基质进行蚯蚓堆肥,研究表明堆肥结束后污泥中诺氟沙星和磺胺含量较对照分别减少了82% 和4%,而生物质炭辅助蚯蚓堆肥则实现了污泥中四环素的100% 消除,同时抗性基因ermF显著降低0.32倍~0.45倍。Li等[36]通过牛粪蚯蚓堆肥添加四环素试验发现,未添加四环素的蚯蚓堆肥处理总ARGs去除率最高,达53%,添加四环素后则分别降至47% 和15%。然而,即使在四环素胁迫下,蚯蚓堆肥中ARGs的去除率仍高于自然堆肥,展现出在抗生素污染基质中消减ARGs的可行性。Lin等[37]选用内生蚯蚓壮伟环毛蚓(Amynthas robustus)进行堆肥,该研究发现,堆肥过程中菌群丰度的增加以及土壤中溶解有机碳和pH的提高皆有利于四环素的快速降解。40 d后蚯蚓堆肥的降解效率比对照组高出42.86%,其中降解菌以Comamonas、Acinetobacter和Stenotrophomonas为主,可通过差向异构化–脱水途径将4-epitetracycline脱水为4-epianhydrotetracycline,改变代谢途径,促进四环素降解。Huang等[38]研究了污泥蚯蚓堆肥过程中对抗生素抗性基因的影响,与对照相比,污泥蚯蚓堆肥中ARGs总丰度降低了41.5%,其中变形菌门和放线菌门是ARGs的主要宿主,蚓粪肥通过改变微生物群落结构和减少移动基因元件抑制抗生素抗性基因传播。此外,蚓粪肥还能通过物理作用降低抗生素的生物利用度。一方面,蚓粪肥中的有机质和腐殖酸能够吸附抗生素分子,从而降低相关抗性基因的传播风险;另一方面,蚓粪肥通过改良土壤结构和提高pH间接促进抗生素脱毒矿化。因此,蚓粪肥通过改变土壤理化性质营造了利于抗生素和抗生素抗性基因降解的环境条件,同时向土壤中释放功能降解菌,影响土著菌群,形成菌群共代谢,进一步强化降解。
2.4 蚓粪肥微生物组对微塑料的降解土壤中微塑料的存在能够吸附各种污染物,经风化降解为更小的颗粒后在土壤中迁移扩散,并通过食物链富集放大,对土壤环境和生物生存产生影响[39]。根据基质来源,微塑料可分为石油基(如聚苯乙烯、聚乙烯、聚丙烯等)和生物可降解基(如聚乳酸、聚羟基脂肪酸酯等)两大类[40]。蚓粪肥主要通过微生物消减土壤中的微塑料。其中,蚓粪肥中常见细菌如芽孢杆菌、假单胞菌在石油基微塑料降解中发挥关键作用。芽孢杆菌的部分物种,如波茨坦短芽孢杆菌(Bacillus borstelensis)、纺锤状赖氨酸芽孢杆菌(Lysinibacillus fusiformis)、蜡样芽孢杆菌(Bacillus cereus)和枯草芽孢杆菌亚种(Bacillus gothelli)在蚯蚓堆肥25 ℃条件下(10 d)对聚苯硫醚(polyphenylene sulfide)的降解效率分别为36%、21.9%、20% 和6.2%[41-42]。污泥农用是微塑料进入农田土壤的重要途径。Ragoobur等[43]利用尤金真蚓对微塑料污染污泥进行堆肥,发现14周后污泥中146~500 µm聚丙烯、146~500 µm高密度聚乙烯、1 650~2 000 µm高密度聚乙烯和1 650~2 000 µm聚丙烯的浓度分别降低了78%、56%、31% 和22%。此外,蚓粪肥还通过提高土壤有机质、氮含量及微生物活性,进一步强化生物可降解基微塑料的降解。研究发现,蚯蚓堆肥条件下生物可降解基微塑料中的聚乳酸降解效率较土壤显著提升39%[44]。微塑料积累到一定程度时,也会对蚯蚓堆肥过程及微生物产生反作用。Zhong等[45]在污泥蚯蚓堆肥中加入不同剂量的聚乙烯颗粒,发现中低剂量(2 000~50 000 particles/kg)的微塑料增加了系统中变形菌门、拟杆菌门和厚壁菌门的数量,其中可能包括潜在的微塑料降解菌。然而,高剂量(2 000 000 particles/kg)的微塑料不仅会阻碍堆肥过程中有机质的降解,还会抑制上述细菌的生长,导致微生物多样性和丰度降低。因此,蚓粪肥可以通过自身吸附和存在的微塑料降解菌(如芽孢杆菌)消减土壤中的微塑料,但微塑料可能会抑制蚓粪肥中部分微生物的生长,从而对微塑料降解产生消极影响。值得关注的是,微塑料不仅对持久性有机污染物和抗生素等污染物具有耦合潜力,同时也能促进抗生素抗性基因在环境中的传播[46],而这种特性对蚓粪肥消减效果的影响还需进一步探究。
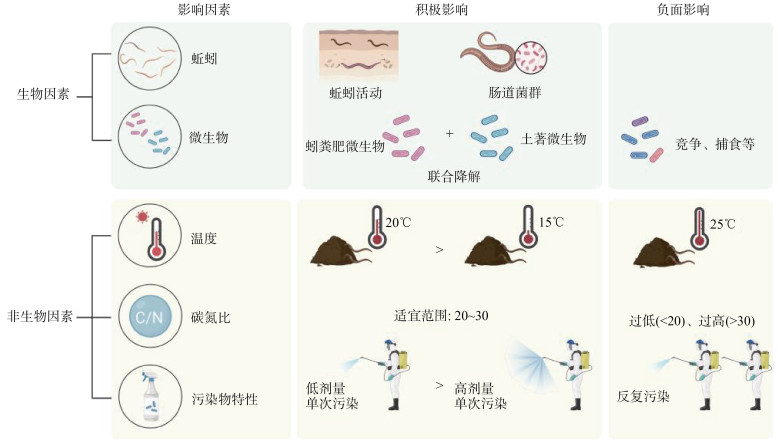
3 蚓粪肥微生物消解土壤新污染物的影响因素生物修复策略主要包括微生物组成和环境条件的优化。蚓粪肥作为一种优质的生物有机肥,在土壤新污染物的消解方面受到多种因素的影响,如蚯蚓品系和生理活动、微生物群落、温度、碳氮比和污染特性等生物、非生物因素(图 4)。
|
图 4 蚓粪肥微生物降解的影响因素 Fig. 4 Critical factors governing microbial degradation in vermicompost systems |
影响蚓粪肥微生物组消减土壤新污染物的生物因素主要涉及蚯蚓和微生物间的相互作用。蚯蚓通过掘穴、分泌黏液、排泄等一系列活动改善土壤结构、释放有机质,直接或间接优化微生物群落结构,并增强微生物与污染物的接触,有利于多种新污染物的降解[47]。Li等[48]分别向聚乙烯和聚氯乙烯(polyvinyl chloride)污染土壤中引入不同密度蚯蚓,发现蚯蚓活动通过改善土壤结构、肥力以及微生物丰度和多样性来缓解微塑料污染压力,促进作物生长,其中添加中等密度蚯蚓的污染土壤中酶活性、微生物生物量和群落多样性显著提高,改良效果最好。不同生态类型的蚯蚓(表栖型、内栖型、深栖型)生活习惯及食性不同,对污染物的敏感性各异,进而对消减效果造成影响。Chao等[49]研究表明,蚯蚓敏感性是影响有机污染物降解的关键限制因子,其作用较土壤有机质、黏粒含量等环境因素更为重要。表栖型蚯蚓(如赤子爱胜蚓)因暴露于高污染风险的表层环境,其对有机污染物的耐受性及降解效应显著优于内栖型与深栖型蚯蚓。因此,在评估蚯蚓对新污染物的消减效果时,需结合不同生态类型的敏感性差异,关注高耐受性品种在修复实践中的优先选择。此外,蚯蚓可以通过肠道菌群直接代谢污染物或促进土壤原生微生物来显著加速新污染物的生物降解。乙草胺是典型的手性对氯乙酰胺类除草剂,被归为内分泌干扰物质。Han等[50]研究表明,微生物与蚯蚓间的协同作用显著加速了乙草胺的降解。蚯蚓主要通过引入新的乙草胺降解菌(Algoriphagus和Aeromonas)并刺激潜在的土著降解菌(Lysobacter、Kaistobacter和Flavobacterium)来促进乙草胺的消减。此外,蚯蚓还可以加强潜在降解菌与其他微生物之间的联系,刺激土壤整体微生物活性,改善微生物代谢途径以及外源性生物降解和代谢、信号转导等,进而减轻污染物对微生物群落功能的抑制。参与新污染物降解的微生物群落的活性和能力主要受代谢网络和群落菌株之间复杂相互作用的控制[51]。多数情况下,降解涉及的是一个集合体而不是单个物种,协同微生物群落通常可以提高污染物的生物降解效率。Xu等[52]基于阿特拉津污染土壤的群落序列信息,构建了降解菌节杆菌(Arthrobacter)与其他4种非降解菌的合成菌群代谢模型,数据显示菌群联盟的降解效率显著高于单一降解菌,表明非降解菌通过代谢互补等机制增强了体系功能。
蚓粪肥与土著微生物组内的相互作用,包括生态位、共生、捕食和对营养物质的竞争等,会对生物降解效率产生不同的影响。生物修复还受到生物活性和许多可以影响生物活性的因素的影响,如物种、生物量、微生物酶、营养来源、适宜的温度/湿度/pH范围以及共生物种等[53]。此外,新污染物及降解过程中生成的毒性中间产物可能会抑制菌群活性,导致生物降解效能的降低。因此,生物因素在蚓粪肥微生物降解新污染物中发挥重要作用,主要包括蚯蚓与微生物的协同作用及微生物间的相互作用,在进行土壤修复时引入蚯蚓和优化菌群互作是提高生物降解效能的关键。
3.2 非生物因素蚓粪肥中微生物的增殖需要特定的营养和环境条件,施用后菌群生长繁殖易受外部条件影响,产生遗传信息不稳定、菌株易变异或退化等问题[54],进而影响降解效果。温度是影响堆肥过程的关键因素,对微生物的代谢活性和粪肥质量具有重要的调控作用。Cui等[55]分别在20 ℃和25 ℃条件下以污泥为基质进行蚯蚓堆肥,发现25 ℃下部分细菌(如气单胞菌属、噬几丁质菌属)的存在可能导致qnrA、qnrS和tetM等抗生素抗性基因的反弹。相比之下,20 ℃被确定为更适宜的温度,在该温度下不仅能够实现抗生素抗性基因的更高去除效率,同时也能保证堆肥产物具有良好的生物稳定性。此外,温度还通过影响微生物的细胞生长和细胞酶活性制约污染物生物降解效率。过低或过高的温度都会抑制菌株中与新污染物代谢相关的功能性酶活性,降低新污染物的降解速度,减少产物积累,菌株生长也受限制[56]。适宜的C/N (20~30)也是维持微生物功能作用的关键。C/N过低,不仅导致氮素过剩,还会激发微生物对碳源的竞争,从而抑制部分降解菌(如假单胞菌门、厚壁菌门)的生长;相反,C/N过高,则因氮源相对不足而限制微生物代谢,影响消减效果[57]。此外,蚓粪肥对新污染物的降解效率还取决于污染物浓度和种类。当污染物浓度过高时,可能抑制微生物的活性和群落多样性,从而严重降低降解效率。尤其是实际环境中往往两种以上污染物复合污染的情况较为普遍,这种情况下污染物对微生物的毒害效应可能进一步增强,进而对蚓粪肥微生物组的消解能力产生不利影响。此外,污染物施用频率也会对蚓粪肥的改良效果产生影响。在污染土壤中施用蚓粪肥可以显著提高土壤细菌的相对丰度和活性,并可通过改善土壤中污染物的分布、吸收和消散等减轻其毒理影响。然而,当土壤再次受到污染时,微生物丰度下降,蚓粪肥并不能抵消污染物对土壤菌群的二次影响。但是,反复暴露于污染物会增加微生物的确定性选择,从而促进降解菌群的筛选[58]。因此,温度、C/N和污染物特性等非生物因素均会影响蚓粪肥微生物对新污染物的消减,在利用蚓粪肥降解污染物时应综合考虑土壤环境和堆肥基质,结合土壤实际污染情况进行治理。
4 研究不足与展望作为一种低成本绿色生物技术,蚓粪肥对土壤中的多种新型污染物均具有较好的消减效果,近年来受到持续关注。但现阶段仍有一些研究不足需要阐明:①蚓粪肥微生物组对复合新污染物的解毒机制。目前对于蚓粪肥对污染土壤的改良效果已有较多研究,但由于实际场地中污染情况较为复杂,蚓粪肥功能菌群对不同类型复合污染体系的代谢通路及其协同消减机制仍需深入解析。②蚓粪肥降解菌与土著降解菌的联合作用。现有研究表明,蚓粪肥可激活土著降解菌并引入外源功能菌群,但二者在污染物降解过程中的分工、代谢产物传递及种间互作仍需通过宏基因组–代谢组联合分析等技术进一步明确,以优化菌群组合策略。③蚓粪肥微生物组消减新污染物效果的影响因素。新污染物消减过程受土壤本底值、气候条件等多因素交互影响,现有研究多聚焦单一因素,而实际治理中多因素耦合效应尚缺乏系统性归纳。
蚓粪肥微生物组污染土壤治理已成为当前研究热点,未来需持续关注:①蚓粪肥在土壤多类别新污染物消减方面展现出显著潜力,但难以实现污染物的完全去除,亟需探索蚓粪肥与其他修复技术(如生物质炭、特定功能微生物菌剂、植物修复等)的协同增效机制,以发展复合修复策略;②蚓粪肥对新污染物的消解效能受多重因素调控,未来研究需系统评估土壤本底特性及环境因子的综合影响,通过优化生物与非生物条件,定向调控蚓粪肥微生物组活性,力求达到理想消解效果;③有机农业是未来发展的趋势,需结合宏基因组学、代谢组学等技术加强对蚓粪肥微生物组对新污染物降解机制的研究,评估实际应用过程中蚓粪肥治理达到的生态和经济效益,以支撑其规模化、规范化应用。
| [1] |
Wang X K, Wang W H, Wingen L M, et al. Predicting the environmental fates of emerging contaminants: Synergistic effects in ozone reactions of nitrogen-containing alkenes[J]. Science Advances, 2023, 9(9): eade9609 DOI:10.1126/sciadv.ade9609 (  0) |
| [2] |
Giri A, Pant D, Chandra Srivastava V, et al. Plant-microbe assisted emerging contaminants (ECs) removal and carbon cycling[J]. Bioresource Technology, 2023, 385: 129395 DOI:10.1016/j.biortech.2023.129395 ( 0) |
| [3] |
Fierer N. Earthworms' place on earth[J]. Science, 2019, 366(6464): 425-426 DOI:10.1126/science.aaz5670 ( 0) |
| [4] |
Zhou Y W, Xiao R, Klammsteiner T, et al. Recent trends and advances in composting and vermicomposting technologies: A review[J]. Bioresource Technology, 2022, 360: 127591 DOI:10.1016/j.biortech.2022.127591 ( 0) |
| [5] |
Zhao Q, Zhang M R, Wu Z X, et al. Dynamics of bacterial community in the foregut and hindgut of earthworms with the nutrition supplied by kitchen waste during vermicomposting[J]. Bioresource Technology, 2023, 374: 128777 DOI:10.1016/j.biortech.2023.128777 ( 0) |
| [6] |
Zheng X X, Chao H Z, Wu Y L, et al. Contrasted effects of Metaphire guillelmi on tetracycline diffusion and dissipation in soil[J]. Journal of Environmental Management, 2022, 310: 114776 DOI:10.1016/j.jenvman.2022.114776 ( 0) |
| [7] |
Xia R, Shi Y, Wang X W, et al. Metagenomic sequencing reveals that the assembly of functional genes and taxa varied highly and lacked redundancy in the earthworm gut compared with soil under vanadium stress[J]. mSystems, 2022, 7: e01253-e01221 ( 0) |
| [8] |
Ahmad Bhat S, Singh S, Singh J, et al. Bioremediation and detoxification of industrial wastes by earthworms: Vermicompost as powerful crop nutrient in sustainable agriculture[J]. Bioresource Technology, 2018, 252: 172-179 DOI:10.1016/j.biortech.2018.01.003 ( 0) |
| [9] |
Aira M, Olcina J, Pérez-Losada M, et al. Characterization of the bacterial communities of casts from Eisenia andrei fed with different substrates[J]. Applied Soil Ecology, 2016, 98: 103-111 DOI:10.1016/j.apsoil.2015.10.002 ( 0) |
| [10] |
李建辉, 张莹莹, 黄魁, 等. 宏基因组学解析蚯蚓粪中微生物种群及耐药基因的组成[J]. 中国环境科学, 2020, 40(12): 5375-5382 ( 0) |
| [11] |
晁会珍, 孙明明, 朱国繁, 等. 蚯蚓肠道细菌生态功能及毒理学研究进展[J]. 生态毒理学报, 2020, 15(5): 35-48 ( 0) |
| [12] |
Zhu G F, Chao H Z, Sun M M, et al. Toxicity sharing model of earthworm intestinal microbiome reveals shared functional genes are more powerful than species in resisting pesticide stress[J]. Journal of Hazardous Materials, 2023, 446: 130646 DOI:10.1016/j.jhazmat.2022.130646 ( 0) |
| [13] |
Yuan S J, Wu Y L, Balcazar J L, et al. Expanding the potential soil carbon sink: Unraveling carbon sequestration accessory genes in vermicompost phages[J]. Applied and Environmental Microbiology, 2025, 91(4): e00296-e00225 ( 0) |
| [14] |
黄魁, 夏慧, 陈景阳, 等. 蚯蚓对城市污泥蚯蚓堆肥过程中微生物特征变化的影响[J]. 环境科学学报, 2018, 38(8): 3146-3152 ( 0) |
| [15] |
Chen Y X, Zhang Y, Shi X, et al. The contribution of earthworms to carbon mineralization during vermicomposting of maize stover and cow dung[J]. Bioresource Technology, 2023, 368: 128283 DOI:10.1016/j.biortech.2022.128283 ( 0) |
| [16] |
Pathma J, Sakthivel N. Molecular and functional characterization of bacteria isolated from straw and goat manure based vermicompost[J]. Applied Soil Ecology, 2013, 70: 33-47 DOI:10.1016/j.apsoil.2013.03.011 ( 0) |
| [17] |
Wu S M, Zhang W, Wang D R, et al. Bacteriophage– bacteria interactions promote ecological multifunctionality in compost-applied soils[J]. Environmental Microbiology, 2025, 27(3): e70074 DOI:10.1111/1462-2920.70074 ( 0) |
| [18] |
Chen Y L, Jiang C X, Wang Y L, et al. Sources, environmental fate, and ecological risks of antibiotics in sediments of Asia's longest river: A whole-basin investigation[J]. Environmental Science & Technology, 2022, 56(20): 14439-14451 ( 0) |
| [19] |
Wang Z, Han M Z, Li E H, et al. Distribution of antibiotic resistance genes in an agriculturally disturbed lake in China: Their links with microbial communities, antibiotics, and water quality[J]. Journal of Hazardous Materials, 2020, 393: 122426 DOI:10.1016/j.jhazmat.2020.122426 ( 0) |
| [20] |
Chan S S, Khoo K S, Chew K W, et al. Recent advances biodegradation and biosorption of organic compounds from wastewater: Microalgae-bacteria consortium - A review[J]. Bioresource Technology, 2022, 344: 126159 DOI:10.1016/j.biortech.2021.126159 ( 0) |
| [21] |
Contreras-Ramos S M, Álvarez-Bernal D, Dendooven L. Removal of polycyclic aromatic hydrocarbons from soil amended with biosolid or vermicompost in the presence of earthworms (Eisenia fetida)[J]. Soil Biology and Biochemistry, 2008, 40(7): 1954-1959 DOI:10.1016/j.soilbio.2008.04.009 ( 0) |
| [22] |
Mohammadi-Moghadam F, Khodadadi R, Sedehi M, et al. Bioremediation of polycyclic aromatic hydrocarbons in contaminated soils using vermicompost[J]. International Journal of Chemical Engineering, 2022, 5294170 ( 0) |
| [23] |
Zenteno-Rojas A, Martinez-Romero E, Rincón-Molina C I, et al. Removal of high concentrations decachlorobiphenyl of earthworm Eisenia fetida and its symbiotic bacteria in a vermicomposting system[J]. Water, Air, & Soil Pollution, 2019, 230(6): 116 ( 0) |
| [24] |
Lü H X, Wei J L, Tang G X, et al. Microbial consortium degrading of organic pollutants: Source, degradation efficiency, pathway, mechanism and application[J]. Journal of Cleaner Production, 2024, 451: 141913 DOI:10.1016/j.jclepro.2024.141913 ( 0) |
| [25] |
Chao H Z, Balcazar J L, Wu Y L, et al. Phages in vermicomposts enrich functional gene content and facilitate pesticide degradation in soil[J]. Environment International, 2023, 179: 108175 DOI:10.1016/j.envint.2023.108175 ( 0) |
| [26] |
Caporale N, Leemans M, Birgersson L, et al. From cohorts to molecules: Adverse impacts of endocrine disrupting mixtures[J]. Science, 2022, 375(6582): eabe8244 DOI:10.1126/science.abe8244 ( 0) |
| [27] |
Zhang Q Q, Ma Z R, Cai Y Y, et al. Agricultural plastic pollution in China: Generation of plastic debris and emission of phthalic acid esters from agricultural films[J]. Environmental Science & Technology, 2021, 55(18): 12459-12470 ( 0) |
| [28] |
Zhen Z, Luo S W, Chen Y J, et al. Performance and mechanisms of biochar-assisted vermicomposting in accelerating di-(2-ethylhexyl) phthalate biodegradation in farmland soil[J]. Journal of Hazardous Materials, 2023, 443: 130330 DOI:10.1016/j.jhazmat.2022.130330 ( 0) |
| [29] |
杨中芹, 陈禹竹, 饶雷振, 等. 三种农田土壤中阿特拉津矿化及细菌群落响应的比较研究[J]. 土壤学报, 2025, 62(6): 1711-1721 ( 0) |
| [30] |
Luo S W, Ren L, Wu W J, et al. Impacts of earthworm casts on atrazine catabolism and bacterial community structure in laterite soil[J]. Journal of Hazardous Materials, 2022, 425: 127778 DOI:10.1016/j.jhazmat.2021.127778 ( 0) |
| [31] |
Dume B Y, Hanč aleš, Švehla P, et al. Influence of earthworms on the behaviour of organic micropollutants in sewage sludge[J]. Journal of Cleaner Production, 2023, 416: 137869 DOI:10.1016/j.jclepro.2023.137869 ( 0) |
| [32] |
Carnimeo C, Gelsomino A, Cirrottola G, et al. Compost and vermicompost in cucumber rhizosphere promote plant growth and prevent the entry of anthropogenic organic pollutants[J]. Scientia Horticulturae, 2022, 303: 111250 DOI:10.1016/j.scienta.2022.111250 ( 0) |
| [33] |
张友爱, 王婷婷, 胡小婕, 等. 土壤抗生素抗性基因研究进展及热点分析[J]. 土壤学报, 2024, 61(3): 607-618 ( 0) |
| [34] |
Guo H A, Li Z, Sun X J, et al. Impact of earthworms on suppressing dissemination of antibiotic resistance genes during vermicomposting treatment of excess sludge[J]. Bioresource Technology, 2024, 406: 130991 DOI:10.1016/j.biortech.2024.130991 ( 0) |
| [35] |
Huang K, Chen J Y, Guan M X, et al. Effects of biochars on the fate of antibiotics and their resistance genes during vermicomposting of dewatered sludge[J]. Journal of Hazardous Materials, 2020, 397: 122767 DOI:10.1016/j.jhazmat.2020.122767 ( 0) |
| [36] |
Li Z H, Yang F X, Han B J, et al. Vermicomposting significantly reduced antibiotic resistance genes in cow manure even under high tetracycline concentrations[J]. Bioresource Technology, 2025, 419: 132002 DOI:10.1016/j.biortech.2024.132002 ( 0) |
| [37] |
Lin Z, Zhen Z, Luo S W, et al. Effects of two ecological earthworm species on tetracycline degradation performance, pathway and bacterial community structure in laterite soil[J]. Journal of Hazardous Materials, 2021, 412: 125212 DOI:10.1016/j.jhazmat.2021.125212 ( 0) |
| [38] |
Huang K, Xia H, Zhang Y Y, et al. Elimination of antibiotic resistance genes and human pathogenic bacteria by earthworms during vermicomposting of dewatered sludge by metagenomic analysis[J]. Bioresource Technology, 2020, 297: 122451 DOI:10.1016/j.biortech.2019.122451 ( 0) |
| [39] |
寇诗棋, 关卓, 鲁旭阳, 等. 土壤中微塑料迁移及其对有机污染物的影响研究进展[J]. 土壤, 2024, 56(3): 457-470 ( 0) |
| [40] |
Sun Y Z, Duan C X, Cao N, et al. Biodegradable and conventional microplastics exhibit distinct microbiome, functionality, and metabolome changes in soil[J]. Journal of Hazardous Materials, 2022, 424: 127282 DOI:10.1016/j.jhazmat.2021.127282 ( 0) |
| [41] |
Ali S S, Elsamahy T, Zhu D C, et al. Biodegradability of polyethylene by efficient bacteria from the guts of plastic-eating waxworms and investigation of its degradation mechanism[J]. Journal of Hazardous Materials, 2023, 443: 130287 DOI:10.1016/j.jhazmat.2022.130287 ( 0) |
| [42] |
Zhang B, Hu X Y, Zhao D L, et al. Harnessing microbial biofilms in soil ecosystems: Enhancing nutrient cycling, stress resilience, and sustainable agriculture[J]. Journal of Environmental Management, 2024, 370: 122973 DOI:10.1016/j.jenvman.2024.122973 ( 0) |
| [43] |
Ragoobur D, Huerta-Lwanga E, Somaroo G D. Reduction of microplastics in sewage sludge by vermicomposting[J]. Chemical Engineering Journal, 2022, 450: 138231 DOI:10.1016/j.cej.2022.138231 ( 0) |
| [44] |
Erkul S N, Ucaroglu S. The effect of applying treatment sludge and vermicompost to soil on the biodegradability of poly(lactic acid) and poly(3-hydroxybutyrate)[J]. Polymers, 2025, 17(3): 352 DOI:10.3390/polym17030352 ( 0) |
| [45] |
Zhong H Y, Yang S, Zhu L, et al. Effect of microplastics in sludge impacts on the vermicomposting[J]. Bioresource Technology, 2021, 326: 124777 DOI:10.1016/j.biortech.2021.124777 ( 0) |
| [46] |
Zhang S, Yu J J, Wang J, et al. A new perspective on understanding soil microplastics: Composition, influencing factors of the soil plastisphere, and its impacts on the environmental behavior of co-existing contaminants[J]. Chemical Engineering Journal, 2025, 518: 164640 DOI:10.1016/j.cej.2025.164640 ( 0) |
| [47] |
Song J J, Li T X, Zheng Z R, et al. Carbendazim shapes microbiome and enhances resistome in the earthworm gut[J]. Microbiome, 2022, 10: 63 DOI:10.1186/s40168-022-01261-8 ( 0) |
| [48] |
Li Y P, Wang J, Shao M A, et al. Earthworm activity effectively mitigated the negative impact of microplastics on maize growth[J]. Journal of Hazardous Materials, 2023, 459: 132121 DOI:10.1016/j.jhazmat.2023.132121 ( 0) |
| [49] |
Chao H Z, Sun M M, Wu Y L, et al. Quantitative relationship between earthworms' sensitivity to organic pollutants and the contaminants' degradation in soil: A meta-analysis[J]. Journal of Hazardous Materials, 2022, 429: 128286 DOI:10.1016/j.jhazmat.2022.128286 ( 0) |
| [50] |
Han L X, Fang K, Liu Y L, et al. Earthworms accelerated the degradation of the highly toxic acetochlor S-enantiomer by stimulating soil microbiota in repeatedly treated soils[J]. Journal of Hazardous Materials, 2021, 420: 126669 DOI:10.1016/j.jhazmat.2021.126669 ( 0) |
| [51] |
Peng Q N, Zhao C, Wang X P, et al. Modeling bacterial interactions uncovers the importance of outliers in the coastal lignin-degrading consortium[J]. Nature Communications, 2025, 16: 639 DOI:10.1038/s41467-025-56012-8 ( 0) |
| [52] |
Xu X H, Zarecki R, Medina S, et al. Modeling microbial communities from atrazine contaminated soils promotes the development of biostimulation solutions[J]. The ISME Journal, 2019, 13(2): 494-508 DOI:10.1038/s41396-018-0288-5 ( 0) |
| [53] |
Zhang H Y, Yuan X Z, Xiong T, et al. Bioremediation of co-contaminated soil with heavy metals and pesticides: Influence factors, mechanisms and evaluation methods[J]. Chemical Engineering Journal, 2020, 398: 125657 DOI:10.1016/j.cej.2020.125657 ( 0) |
| [54] |
王鑫伟, 孙明明, 朱国繁, 等. 钒污染土壤生物修复研究进展[J]. 土壤, 2020, 52(5): 873-882 DOI:10.13758/j.cnki.tr.2020.05.002 ( 0) |
| [55] |
Cui G Y, Fu X Y, Ahmad Bhat S, et al. Temperature impacts fate of antibiotic resistance genes during vermicomposting of domestic excess activated sludge[J]. Environmental Research, 2022, 207: 112654 DOI:10.1016/j.envres.2021.112654 ( 0) |
| [56] |
Gao Y S, Chen Y, Zhu F, et al. Revealing the biological significance of multiple metabolic pathways of chloramphenicol by Sphingobium sp. WTD-1[J]. Journal of Hazardous Materials, 2024, 469: 134069 DOI:10.1016/j.jhazmat.2024.134069 ( 0) |
| [57] |
Zhang W M, Yu C X, Wang X J, et al. Increased abundance of nitrogen transforming bacteria by higher C/N ratio reduces the total losses of N and C in chicken manure and corn stover mix composting[J]. Bioresource Technology, 2020, 297: 122410 DOI:10.1016/j.biortech.2019.122410 ( 0) |
| [58] |
Sanchez-Hernandez J C, Cares X A, Domínguez J. Exploring the potential enzymatic bioremediation of vermicompost through pesticide-detoxifying carboxylesterases[J]. Ecotoxicology and Environmental Safety, 2019, 183: 109586 DOI:10.1016/j.ecoenv.2019.109586 ( 0) |
2. Institute of Soil Science, Chinese Academy of Sciences, Nanjing 211135, China;
3. Institute of Urban Environment, Chinese Academy of Sciences, Xiamen, Fujian 361021, China;
4. Ecological Geological Survey Brigade of Jiangsu Bureau of Geology, Nanjing 210012, China