 2026, Vol. 58


2. 黑龙江大学现代农业与生态环境学院, 哈尔滨 150080;
3. 中国科学院大学, 北京 100049
冻融循环是由土壤温度在0 ℃上下波动引起的冻结与融化过程,主要发生在中高纬度和高海拔地区[1]。我国东北地区由于其较高的纬度,有着寒冷且漫长的冬季,土壤通常会经历多次冻融循环,这种周期性的冻融过程在黑土区尤为显著[2]。黑土作为东北地区农田的主要土壤类型,具有较高的有机质含量和土壤肥力[3]。然而,随着气候变化的加剧,冻融循环的频次与强度呈现上升趋势,这对黑土的理化性质、生物过程及生态功能稳定性带来了威胁[4-5]。
冻融循环会显著影响土壤中的水分、养分、气体交换、温度以及生物活性等因素,这些变化直接作用于土壤微生物群落的组成和功能[6-10]。微生物在土壤生态系统中起着关键作用,其活性、群落结构及多样性反映了土壤肥力的状况和变化[11]。微生物的代谢活动,如呼吸速率和酶活性等,直接影响土壤中碳、氮、磷等养分的转化过程。通常情况下,肥力较高的土壤拥有多样化且均衡的微生物群落[11]。对黑土而言,冻融循环可能加剧有机碳的矿化,导致微生物代谢活动剧烈波动,从而影响土壤碳源的可利用性和微生物多样性[12-13]。已有研究表明,冻融循环显著影响土壤微生物数量与组成,表现为真菌与细菌比值(F/B)降低,革兰氏阳性菌与革兰氏阴性菌比值(GP/GN)增加[14]。此外,基于全球546项关于冻融循环对土壤微生物多样性影响的研究发现,冻融循环对微生物α多样性未表现出显著影响,但却导致土壤微生物生物量碳、氮以及磷脂脂肪酸水平的下降[15]。另一项研究表明,土壤中细菌生物量和多样性在经历持续冻融循环后,出现先增加后降低的趋势,而土壤含水量、可溶性有机碳、铵态氮和全磷是影响细菌群落多样性及组成的重要因素[16]。综上,反复冻融会改变土壤微生物群落结构及功能,进而对土壤的碳储存能力及农业生产力产生深远影响[17]。
尽管现有研究已明确指出冻融循环对土壤微生物群落及其有机碳矿化能力产生影响,但关于冻融循环对土壤微生物碳源代谢特征的具体研究仍较为匮乏[18]。为深入探讨冻融循环对东北农田黑土微生物碳源代谢特征与多样性的作用机制,本研究将基于土壤理化指标测定和MicroRespTM技术,结合相关性分析与偏最小二乘法结构方程模型(Partial least squares structural equation model,PLS-SEM),对不同冻融强度和冻融频次下的农田黑土微生物碳源代谢活性及多样性指数进行分析,旨在揭示冻融循环对农田黑土微生物碳源代谢的影响机制,并进一步探讨冻融循环对土壤微生物碳源代谢的作用途径。
1 材料与方法 1.1 供试材料供试土壤采自黑龙江省海伦市(47°27′N,126° 56′E),该地属于寒温带大陆性季风气候,年降水量500~600 mm,集中在4—9月,年均温为2.5 ℃,全年无霜期约130 d。采样地块土壤类型为黑土,种植作物为玉米。
2022年10月,玉米收获后,使用直径10 cm、高50 cm的PVC管在农田采集0~40 cm原状土壤,用于室内冻融模拟试验,设置3个重复,每个重复取3个土柱,共计9个土柱。采集后立即封闭PVC管两端,并在低温条件下运输至实验室保存。
为模拟秸秆还田背景下的冻融环境响应,同时提高试验条件对实际农田管理的贴近性,在采样地块随机选取10株长势相同的玉米秸秆,整株粉碎(粉碎长度约2 mm),置于保鲜袋中,随土柱一起带回实验室。
1.2 试验设计将PVC管内的土柱取出,并剔除根系及石块等杂物。随后,将粉碎的秸秆按设定的还田量(5.8 g/kg,参考当地农田秸秆还田水平)均匀分装于尼龙腐解袋中,并在土柱重新装填过程中,按照原土柱层次结构,每隔10 cm深度均匀放置8个腐解袋。通过这种方式,将秸秆作为背景处理嵌入土体,模拟秸秆还田后的真实情境。整个装填过程中尽量保持土壤原有结构,形成“近似原状结构的重装土柱”。所有土柱装填完毕后,使用塑料薄膜和皮套封住土柱的表层和底层,以减少水分蒸发和外部污染,确保冻融效果。
所有土柱置于25 ℃下预培养25 d,期间每隔4 d通过补充水分使其土壤含水量保持在25% 左右,使土柱体系内部均衡,恢复土壤中生物活性。
根据黑龙江省2015—2019年气候变化年鉴数据[19-23],黑龙江省10月份到第二年4月份间月均温度为–9 ℃,最低月均温为–26 ℃,冻结期月均温为–18 ℃,另外黑龙江省土壤融冻期和10月份上冻前月平均温度为5 ℃,因此本试验设置冻结温度为–9、–18和–26 ℃,融化温度为5 ℃,冻融循环次数设置为1、3、5、9、17次。根据相关文献[24],将9个土柱分成3组,分别在–9、–18和–26 ℃的冰箱中冻结12 h,然后取出放置到5 ℃培养箱中解冻12 h,“冻结–解冻”24 h为一个循环周期(冻融循环用“FTC”指代)。分别在1FTC、3FTC、5FTC、9FTC、17FTC后,用直径2 cm、高50 cm的PVC小管于土柱中垂直均匀取0~40 cm土样。土样混匀后分两部分,一部分4 ℃冷藏保存用于测定微生物碳源代谢活性,另一部分经阴凉处风干后分别过20目和100目尼龙筛供理化性质测定。
1.3 测定指标与方法 1.3.1 土壤理化性质土壤理化分析参考《土壤农业化学分析方法》[25]。土壤含水量(SWC)采用烘干法测定,pH采用pH计测定(水土质量比2.5∶1)。土壤有机碳(SOC)、全氮(TN)、全磷(TP)采用元素分析仪完全燃烧法测定,因本研究供试黑土不含碳酸盐,所以测定全碳即为土壤有机碳。土壤铵态氮(NH4+-N)和硝态氮(NO3–-N)采用连续流动分析仪测定。
1.3.2 土壤微生物碳源代谢活性与多样性MicroRespTM是一种用于反映土壤微生物群落代谢功能的测定方法,通过检测土壤在不同碳源诱导下的CO2释放量,表征土壤微生物群落水平的代谢活性。将各碳源诱导产生的CO2释放量加总,可用于比较不同样品间的代谢潜力差异[26]。为了测量微生物活性,可接受的水分含量是最大持水量的30%~60%,本研究将土壤含水量调至23%。96孔板需要鲜土35~50 g,本研究选择44 g,即每个土样22 g。根据土壤含水量称取相应质量的4 ℃冷藏保存的土壤样品,添加至96孔深孔板中,调节含水率至23%,于25 ℃密封预培养5 d。将甲酚红(12.5 mg/L)、氯化钾(150 mmol/L)和碳酸氢钠(2.5 mmol/L)混合形成的指示剂,溶解在0.03 g/mL纯化琼脂(sigma)中,混合均匀后取150 μL指示琼脂添加到检测板微孔中,配制好的检测板存放在含有湿巾和碱石灰的避光干燥器皿中备用。检测时,向每个深孔板依次添加25 μL底物,分别为无菌水和14种碳源,所选碳源分为4类:①氨基酸类,包括L-丙氨酸(L-Ala)、L-精氨酸(L-Arg)、γ-氨基丁酸(GABA)、L-半胱氨酸(L-Cys)和L-赖氨酸盐酸盐(L-Lys);②芳香酸类,包括3, 4-二羟基苯甲酸(PCA);③碳水化合物类,包括D-半乳糖(D-Gal)、L-阿拉伯糖(L-Ara)、D-葡萄糖(D-Glc)、海藻糖(TreA)和D-果糖(D-Fru);④羧酸类,包括草酸(OA)、柠檬酸(CA)和L-苹果酸(L-MA)。随后,将检测板倒扣在深孔板上,用专用夹子固定,在25 ℃条件下培养6 h。使用酶标仪分别记录培养前后检测板在570 nm波长下的吸光值,利用吸光值变化计算培养过程中的CO2释放速率(%)。
CO2产生速率及吸光值标准化计算公式为:
| $ A i=\left(\frac{A t 6}{A t 0}\right) \times \operatorname{Mean}(A t 0)$ | (1) |
| $ {\text{%C}}{{\text{O}}_2} = A + B/\left( {1 + D \times Ai} \right) $ | (2) |
| $ {\text{C}}{{\text{O}}_2}{\text{rate}} = \left[ {\left( {\frac{{{\text{% C}}{{\text{O}}_2}}}{{100}}} \right) \times V \times \left( {\frac{{44}}{{22.4}}} \right) \times \left( {\frac{{12}}{{44}}} \right) \times \left( {273/\left( {273 + T} \right)} \right]} \right./ \\ \left[ {{\text{soi}}{{\text{l}}_{{\text{fwt}}}} \times \left( {{\text{soil}}{{\text{% }}_{{\text{dwt}}}}/100} \right)} \right]/t $ | (3) |
式中:Ai为标准化吸光值;At6为培养6 h后测定的吸光值;At0为培养初始(0 h)测定的吸光值;Mean(At0)为96孔检测板所有孔的At0平均值;%CO2为CO2释放浓度(%);A= −0.226 5,B= −1.606,D= −6.771;CO2rate为CO2释放速率(C, μg/(g·h));V为密封气体空间的体积(945 μL);T为培养温度(25 ℃);soilfwt为深孔板单孔中土壤鲜重(0.46 g);soil%dwt/100为土壤干土占比;t为培养时间(6 h)。
采用Past v2.16软件计算冻融循环处理下农田黑土微生物碳源代谢相关的Simpson多样性指数(1–D)、Shannon多样性指数(H)和Evenness均匀度指数(E)。计算公式如下:
| $ 1 - D = 1 - \sum p_i^2 $ | (4) |
| $ H= –\sum {p}_{i}\left(\text{ln}{p}_{i}\right) $ | (5) |
| $ E = {{\text{e}}^H}/S $ | (6) |
式中:S为被利用碳源总数;pi为第i孔的相对吸光值与整个微孔板相对吸光值总和的比值。
1.4 数据统计与分析采用Origin 2024软件进行数据整理与基础统计分析,利用单因素方差分析(one-way ANOVA)对不同冻融循环条件下土壤微生物碳源代谢活性进行差异显著性分析,采用Fisher LSD对不同处理下各指标间的差异显著性进行检验(P < 0.05);通过主成分分析(Principal component analysis,PCA)比较各处理下农田黑土微生物碳源代谢结构差异;利用Spearman相关系数检验微生物碳源代谢活性、多样性与土壤理化性质的相关性。此外,基于R语言构建随机森林模型,评估土壤理化性质对微生物碳源代谢活性的解释力;最后,采用偏最小二乘法结构方程模型(PLS-SEM)定量评估冻融循环对土壤微生物碳源代谢活性的影响。
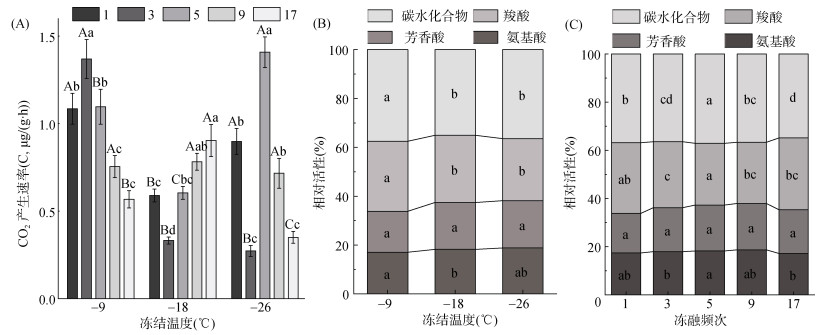
2 结果与分析 2.1 冻融循环对黑土微生物碳源代谢活性的影响土壤微生物总碳源代谢活性随冻融强度的变化如图 1A所示。随冻融强度的提高,1次冻融循环(1FTC)下,总碳源代谢活性以–9 ℃最高,–18 ℃最低;3FTC时仍以–9 ℃最高,但–26 ℃最低;5FTC时转变为–26 ℃最高,–18 ℃最低;9FTC时三者差异不显著;至17FTC时则以–18 ℃最高,–26 ℃最低。随冻融频次的增加,–9 ℃处理下,代谢活性先升高后逐步下降,以3FTC时最高;–18 ℃下则先降低后升高,以17FTC时最高;–26 ℃下呈“先降–后升–再降”的趋势,5FTC时达到峰值。
|
(A. 总碳源代谢活性;B. 不同冻结温度下各类碳源的代谢活性;C. 不同冻融频次下各类碳源的代谢活性。图A中大写字母不同表示相同冻融频次下不同冻结温度间差异显著(P < 0.05),小写字母不同表示相同冻结温度下不同冻融频次间差异显著(P < 0.05);B、C图中小写字母不同分别表示同一碳源在不同冻结温度间和不同冻融频次间差异显著(P < 0.05)) 图 1 不同冻融循环条件下农田黑土微生物碳源代谢活性 Fig. 1 Metabolic activities of microbial carbon sources in black soil farmlands under different freeze-thaw cycles |
不同种类碳源的代谢活性对冻融强度和冻融频次的响应存在差异(图 1B、1C)。整体上,碳水化合物和羧酸的代谢活性在–9 ℃下显著高于–18 ℃和–26 ℃,氨基酸在–18 ℃下最低,芳香酸在不同冻结温度间差异不显著(图 1B)。随冻融频次增加,微生物对碳水化合物的代谢在5FTC时最高,之后逐步降低;羧酸和氨基酸均表现为“先降–后升–再降”,5FTC时最高,3FTC时最低;芳香酸在各冻融频次处理间差异不显著(图 1C)。
2.2 冻融循环对黑土微生物代谢多样性的影响如表 1所示,微生物多样性指数和均匀度指数随冻结温度的变化趋势一致:随冻结温度由–9 ℃降至–26 ℃,1FTC、3FTC、9FTC下土壤微生物多样性指数和均匀度指数均表现为先提高后降低;5FTC时为先提高后趋于平稳;17FTC时则表现为先降低后保持平稳。微生物多样性指数和均匀度指数随冻融频次的变化趋势也一致:–9 ℃冻结温度下,土壤中微生物多样性指数和均匀度指数在各冻融频次间无显著变化;–18 ℃冻结温度下,1FTC~9FTC间均无显著变化,至17FTC时显著降低;–26 ℃冻结温度下,各冻融频次间土壤微生物多样性指数和均匀度指数均存在显著差异,呈先降后升再降再升的“W”型变化趋势。
|
表 1 不同冻融循环条件下农田黑土微生物碳源代谢多样性指数 Table 1 Diversity indices of microbial carbon metabolism in black soil farmlands under different freeze-thaw cycles |
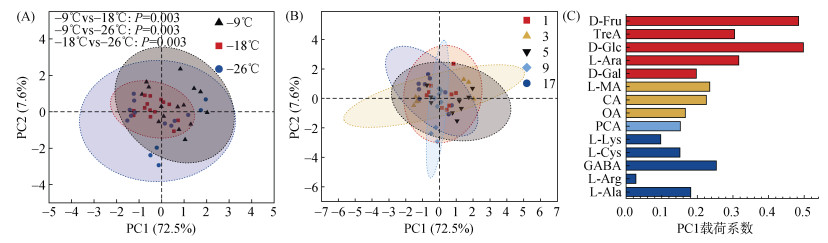
通过主成分分析(PCA)将农田黑土微生物碳代谢结构差异的结果可视化,并结合基于欧几里得距离矩阵的PerMANOVA方差分析,评估不同冻融强度和频次下微生物群落碳代谢结构差异的显著性。最后,采用Bonferroni校正方法对P值进行校正(图 2A、2B)。结果显示,–9、–18和–26 ℃冻结温度下,农田黑土微生物的碳代谢结构差异显著(P < 0.05)。PC1载荷图(图 2C)显示,碳水化合物类碳源中的D-果糖(D-Fru)和D-葡萄糖(D-Glc)代谢活性在PC1的得分较高;氨基酸类化合物中γ-氨基丁酸(GABA)的代谢活性在PC1得分最高。这表明,–9、–18、–26 ℃ 3个冻结温度下农田黑土微生物的碳代谢结构差异主要是由微生物对碳水化合物类碳源的代谢活性差异造成的。
|
(A. 不同冻结温度下的分布;B. 不同冻融频次下的分布;C. 14种碳源在PC1轴上的载荷系数) 图 2 不同冻融循环处理下土壤微生物碳源代谢活性的主成分分析 Fig. 2 Principal component analysis (PCA) of soil microbial carbon metabolic activities under different freeze-thaw cycles |
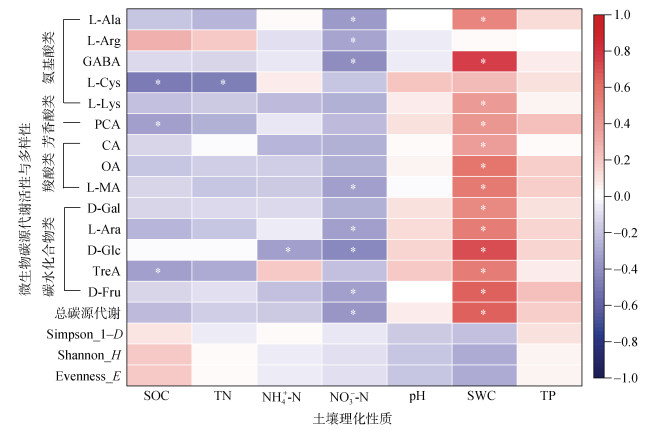
冻融循环后,土壤理化性质均发生了显著变化。图 3为通过Spearman相关性分析得到的农田黑土微生物碳源代谢活性和多样性指标与土壤理化性质之间的相关性热图。分析结果显示,除了L-精氨酸(L-Arg)和L-半胱氨酸(L-Cys),其他碳源代谢活性与土壤含水量(SWC)均呈显著正相关关系(P < 0.05);且所有碳源代谢活性与NO3--N均呈负相关关系,其中L-丙氨酸(L-Ala)、L-精氨酸(L-Arg)、γ-氨基丁酸(GABA)、L-苹果酸(L-MA)、L-阿拉伯糖(L-Ara)、D-葡萄糖(D-Glc)、D-果糖(D-Fru)代谢活性与NO3–-N的负相关关系显著(P < 0.05)。此外,L-半胱氨酸(L-Cys)、芳香酸(PCA)和海藻糖(TreA)代谢活性与土壤有机质(SOC)之间呈显著负相关关系;L-半胱氨酸(L-Cys)还与TN之间呈显著负相关关系;D-葡萄糖(D-Glc)与NH4+-N之间呈显著负相关关系(P < 0.05)。
|
(图中* 表示相关性达P < 0.05显著水平) 图 3 土壤理化性质与微生物碳源代谢活性及多样性指数的相关性热图 Fig. 3 Correlation heat map of soil physicochemical properties with microbial carbon metabolic activity and diversity |
图 4是采用随机森林模型量化土壤理化性质对碳源代谢活性的影响,该模型较好地反映了土壤理化性质对碳源代谢活性的解释能力(R2=0.745,P < 0.001)。其中,SWC、NO3–-N及SOC在回归模型中对碳源代谢活性的影响极显著(P < 0.01),其贡献率分别为18.05%、13.05% 和12.11%;TN、pH、TP和NH4+-N对碳源代谢的影响显著(P < 0.05),其贡献率分别是12.28%、9.49%、9.38% 和9.14%。
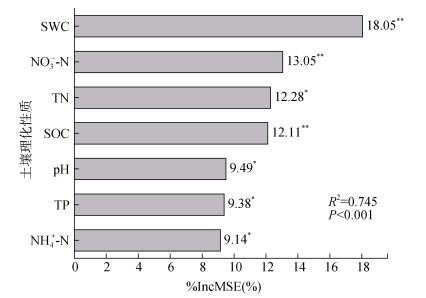
|
(均方误差增加百分比(%IncMSE)表示从模型中移除的特征变量对模型误差的增加程度,%IncMSE越高,意味着该变量在模型中越重要,对预测变量(微生物碳源代谢活性)的影响越显著。*、** 分别表示重要性达P < 0.05和P < 0.01显著水平) 图 4 土壤理化性质对微生物碳源代谢活性的随机森林特征重要性 Fig. 4 Importance of random forest characteristics of soil physicochemical properties to microbial carbon metabolic activity |
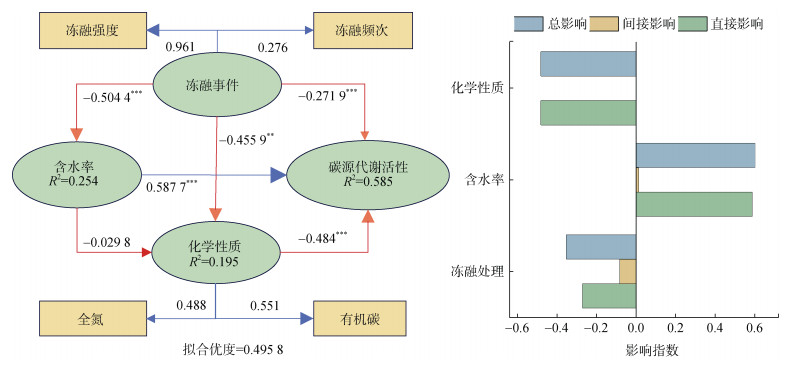
图 5展示了偏最小二乘法结构方程模型(PLS-SEM)定量评估冻融循环对农田黑土微生物碳源代谢活性影响的结果。模型拟合优度较高(拟合优度指数= 0.495 8),表明模型具有较强的解释力。内部结构模型显示,冻融处理及受其影响的土壤含水率、化学性质能够解释微生物碳源代谢活性变化的58.5%(R2= 0.585)。具体而言,冻融处理对碳源代谢活性的路径系数为–0.271 9,间接影响为–0.08,总影响为–0.35,表明冻融处理对微生物碳源代谢活性产生了显著的负向效应(P < 0.01)。土壤含水率对微生物碳源代谢活性的路径系数为0.587 7,间接影响为0.01,总影响为0.60;而化学性质的路径系数和总影响均为–0.484,表明土壤含水率和化学性质分别对土壤微生物碳源代谢活性产生了显著的正向和负向影响(P < 0.001)。从外部模型来看,冻融强度和冻融频次的因子负荷分别为0.961和0.276,表明冻融强度是潜变量“冻融处理”的主要解释变量。整体而言,冻融强度对碳源代谢活性的影响主要通过其对潜变量“冻融处理”的贡献间接实现,进而通过冻融处理的调控路径影响碳源代谢活性。因此,冻融处理在模型中扮演关键的中介角色,而土壤含水率则是正向促进微生物碳源代谢活性的主要驱动力。
|
(图中红色箭头表示负向效应,蓝色箭头表示正向效应;*、**、***分别表示影响效应达P < 0.05、P < 0.01和P < 0.001显著水平) 图 5 冻融循环对土壤微生物碳源代谢活性影响的结构方程模型 Fig. 5 Structural equation model of effect of freeze-thaw cycles on microbial carbon metabolic activity |
本研究中冻融循环显著负向调控微生物代谢活性的结果,与安小兵等[4]研究发现冻融循环降低土壤微生物生物量碳的结论一致。冻融循环初期(1FTC、3FTC、5FTC),随冻结温度从–9 ℃下降到–18 ℃,微生物碳源代谢活性显著下降,而微生物多样性指数和均匀度指数提高。这表明,低温虽然导致某些微生物休眠或死亡,降低了土壤微生物代谢速率[27],但也促进了嗜冷菌等特定微生物的繁殖,进而增加了微生物群落多样性[28]。随冻融次数增多,特别是9FTC之后,部分微生物群落逐渐适应低温环境,发生代谢调整或重组,导致代谢活性逐渐恢复甚至上升[29]。然而,当冻融循环频繁时,渗透压升高可能导致微生物死亡[30],这一现象在17FTC后表现为微生物多样性指数及均匀度指数的下降(表 1)。冻融结束后,死亡微生物和植物残留物释放的养分为优势微生物提供了有利的生长条件,进而增强了土壤中微生物的代谢活性[31]。代谢活性增强,微生物丰度下降,可见微生物的代谢活性更多与特定微生物的功能性转变相关。此外,Deng等人[32]通过功能基因分析发现,冻融处理后土壤中与细菌分泌系统、鞭毛组装、外源生物降解及代谢相关基因的丰度增加,从分子水平进一步印证了冻融扰动可能激发特定微生物群体的应激代谢能力。
与–9 ℃和–18 ℃相比,–26 ℃冻融强度下的土壤微生物丰度和均匀度保持下降或稳定。这是因为–26 ℃冻融下,解冻速度较慢,水分减少,冰晶残留以及养分限制等因素形成厌氧环境[30-31],共同抑制了微生物的繁殖,这一结论在结构方程模型中也得到验证(图 5)。尽管部分微生物丰度减少,但冻融后的有机质释放为抗低温的微生物提供了有利的生长条件,从而刺激微生物活性,甚至促进土壤CO2的释放[28, 33]。因此,在5FTC和9FTC后的土壤中,冻结温度降至–26 ℃时,微生物碳源代谢活性没有显著变化,甚至在5FTC后有所上升。然而,频繁的冻融循环会破坏土壤结构,导致一些可培养微生物的种群减少4个数量级以上[34],进而使土壤呼吸减少50%~70%[35]。
已有研究表明,冻融循环次数本身并不会显著影响土壤微生物群落组成[18, 36]。本研究在–9 ℃冻结温度下观测到微生物多样性和均匀度的变化相对稳定,与上述观点一致。然而,在冻融强度更大的条件下(–18 ℃和–26 ℃),微生物群落多样性出现明显波动:–18 ℃下9FTC前,微生物丰度未发生显著变化,但在17FTC后出现下降趋势;–26 ℃处理下,多样性指数随着冻融频次呈“W”型波动,表明其对微生物群落结构产生更强烈的扰动效应。进一步分析发现,在高强度冻融背景下,适度的冻融频次(如5FTC)反而有利于微生物群落活性提升。该结果不仅验证了低强度冻融循环对微生物丰度影响有限的结论,还揭示了极端冻融强度下微生物群落对冻融频次的非线性响应规律,丰富了对冻融扰动影响微生物多样性的理解。
张志和韩晓增[37]研究指出,农田土壤微生物偏好利用氨基酸类与碳水化合物类碳源。而本研究发现,在冻融过程中,农田黑土微生物对羧酸类碳源的利用显著增强,提示微生物在频繁冻融扰动下表现出对特定碳源类型的适应性选择,这一发现补充和扩展了现有研究在碳源利用动态方面的认识。然而,随冻结温度下降,土壤中碳水化合物和羧酸类碳源可用性降低,微生物会逐渐转向利用氨基酸类碳源(图 1B)。据Jones等[38]解释,在强烈的冻融处理下,微生物反应受到刺激,氨基酸循环加速。同样,Stres等[39]也指出,在温带地区土壤中,微生物在经历冻融扰动后,其碳源利用模式会由碳水化合物与有机酸向氨基酸类偏移,本研究结果与此具有较高一致性。高强度冻融处理下碳源代谢的调整可能是由于低温加剧了土壤团聚体分解和微生物细胞破坏,释放更多氨基酸供微生物利用[40]。在整个冻融过程中,芳香酸代谢活性未出现显著变化,表明频繁的冻融处理对芳香酸代谢相关酶(如脱羧酶、羟化酶)活性影响较小[41]。整个冻融过程中,碳水化合物、羧酸和氨基酸代谢活性呈降低–增加–降低的趋势,且在5FTC时达到最高(图 1C)。该代谢趋势在一定程度上与孙嘉鸿等[42]对磷脂脂肪酸含量变化的观察结果一致,他们指出在–10~ 0 ℃冻融模式下,土壤中各类型微生物脂肪酸含量先降低后增加,最终仍低于冻融前的水平,表明微生物对冻融胁迫具有一定适应能力。这也和多次冻融处理后微生物逐渐适应温度变化有关[28, 33]。然而,经更多冻融处理后,土壤中营养物质的不足使微生物难以维持代谢和生存[43]。
冻融循环下,微生物碳代谢结构差异的主成分分析表明,冻融循环对微生物碳代谢功能的影响主要体现在糖类化合物的代谢差异上(图 2C)。糖类化合物是土壤中微生物有机体的主要组成部分,也是其能量代谢的主要来源[44]。因此,在冻融循环下,微生物需快速响应环境变化,调节能量代谢,进而对碳水化合物的代谢表现出更强的敏感性[44]。D-葡萄糖(D-Glc)和D-果糖(D-Fru)是细胞糖酵解和呼吸作用等能量代谢途径中的关键底物,其代谢途径容易受到冻融循环对微生物细胞膜损伤的影响[45]。此外,氨基酸类化合物中的γ-氨基丁酸(GABA)在各冻融模式下也表现出显著差异。作为一种非蛋白质氨基酸,GABA在植物和微生物的代谢中起着重要作用,尤其在应对环境压力和调节细胞功能方面[46]。研究表明,GABA有助于微生物应对盐胁迫、低氧等环境压力,并通过其代谢为微生物提供生长所需能量[47]。这些结果表明,在高强度冻融循环下,土壤微生物通过调节特定碳水化合物和氨基酸的代谢活性,试图适应剧烈的温度变化。
3.2 土壤理化性质与微生物碳源代谢间的相关性各类碳源代谢活性与NO3–-N之间的负相关关系,与Tian等[48]对热带森林土壤中氮添加抑制微生物碳利用的研究结果一致。王世佳等[49]在大兴安岭地区的研究表明,土壤中脲酶、蔗糖酶和蛋白酶的活性与NO3–-N含量呈负相关。在高强度或高频次冻融循环下,对温度变化更敏感的硝化细菌活性增强,导致土壤硝酸盐含量增多,而有机氮利用率降低[50]。冻融循环通过改变土壤水分迁移,影响微生物的有机碳矿化速率[51]。融化时,土壤水分增加,进而促进有机碳含量的增加。例如,–10 ℃冻结处理的土壤经多次冻融后,含水量和有机碳含量均上升,但微生物生物量碳逐渐降低[10]。这表明,频繁冻融增加了土壤含水量,但保护了土壤有机碳不被流失,这也是微生物碳源代谢增强的原因。这种变化解释了土壤含水量与碳源代谢活性呈正相关,而与微生物多样性指数呈负相关的现象(图 3)。大多数碳源代谢活性和土壤有机碳呈负相关(PCA、L-Cys和TreA的相关性显著,P < 0.05),这一结果与湿地土壤微生物碳源代谢的研究结论一致,表明土壤碳源代谢活性增强可能削弱了土壤的碳“汇”功能[52]。蒲家慧等[53]的研究表明,冻融循环过程中有机氮矿化速率下降,也会导致无机氮的积累下降。此外,当土壤中的氮源浓度较高时,微生物倾向于利用氮源而非碳源,导致碳源代谢活性下降[54]。L-半胱氨酸(L-Cys)代谢活性与全氮含量呈负相关,可能是冻融循环改变了微生物群落结构,使优势微生物更倾向于利用其他氮源[55]。
4 结论1) 不同冻融强度和频次显著影响土壤微生物碳源代谢活性及多样性。冻融初期,随冻结温度降低,微生物代谢活性显著下降,而多样性和均匀度提高。随着冻融循环次数的增加,代谢活性逐步恢复。高强度(如–26 ℃)、高频次的冻融循环会导致土壤水分减少和养分限制,进而降低微生物丰度和均匀度,但仍可促进CO2释放。
2) 在碳源代谢特征方面,土壤微生物主要利用碳水化合物和羧酸类化合物,并随冻融频次增加逐渐转向氨基酸代谢。此外,冻融循环通过改变土壤水分、pH、氮含量等理化性质,进一步影响微生物群落结构。
3) 结构方程模型和随机森林回归分析表明,冻融强度是主要驱动因子,其通过调控土壤水分和氮含量等理化性质,进而影响微生物碳源代谢活性。
综合来看,冻融循环通过多方面改变土壤环境,进而影响微生物碳源代谢活性和群落结构,这为研究冻融区农田黑土碳平衡提供了理论依据。
| [1] |
Zhao L, Cheng G D, Ding Y J. Studies on frozen ground of China[J]. Journal of Geographical Sciences, 2004, 14(4): 411-416 DOI:10.1007/BF02837484 (  0) |
| [2] |
Shi H, Huang H Y, Chang J L, et al. The spatial and temporal distribution of freeze–thaw characteristics of near-surface soil in the Northeast of China and its influencing factors[J]. Catena, 2025, 249: 108644 DOI:10.1016/j.catena.2024.108644 ( 0) |
| [3] |
韩晓增, 李娜. 中国东北黑土地研究进展与展望[J]. 地理科学, 2018, 38(7): 1032-1041 ( 0) |
| [4] |
安小兵, 郑粉莉, 王雪松, 等. 冻融作用对东北黑土区坡耕地土壤微生物养分限制的影响[J]. 应用生态学报, 2024, 35(10): 2744-2754 ( 0) |
| [5] |
朱帅, 李仕勇, 姜泊宇, 等. 冻融循环作用对东北农田黑土团聚体及有机碳的影响[J]. 中国农学通报, 2024, 40(23): 53-59 ( 0) |
| [6] |
李传松, 张亦婷, 赵兴敏, 等. 冻融及有机物料添加对黑钙土有机、无机碳的影响[J]. 江苏农业科学, 2019, 47(10): 272-277 ( 0) |
| [7] |
赵强, 吴从林, 罗平安, 等. 冻融期东北农田土壤温度和水分变化规律及影响因素分析[J]. 冰川冻土, 2020, 42(3): 986-995 ( 0) |
| [8] |
窦永静, 王让虎, 吴东辉. 冻融作用对大兴安岭多年冻土区土壤节肢动物的影响[J]. 应用生态学报, 2022, 33(5): 1405-1412 ( 0) |
| [9] |
Liu Y Q, Wang X C, Wen Y J, et al. Effects of freeze-thaw cycles on soil greenhouse gas emissions: A systematic review[J]. Environmental Research, 2024, 248: 118386 DOI:10.1016/j.envres.2024.118386 ( 0) |
| [10] |
王楠, 王洋, 崔政武, 等. 冻融作用与含水量对黑土中活性有机碳的影响[J]. 土壤通报, 2024, 55(4): 953-959 ( 0) |
| [11] |
Hartmann M, Six J. Soil structure and microbiome functions in agroecosystems[J]. Nature Reviews Earth & Environment, 2023, 4(1): 4-18 ( 0) |
| [12] |
杨彤, 段耀庭, 刘永奇, 等. 冻融循环对土壤细菌群落结构和代谢功能的影响[J]. 安徽农业科学, 2024, 52(24): 62-66, 102 ( 0) |
| [13] |
张博, 刘会敏, 毕鑫宇, 等. 不同含水量及冻结温度对黑土冻融循环过程有机碳矿化的影响[J]. 水土保持学报, 2024, 38(4): 55-62 ( 0) |
| [14] |
Liu M H, Zhang Z M, He P, et al. Changes in soil microbial community and carbon use efficiency in freeze-thaw period restored after growth season under warming and straw return[J]. Applied Soil Ecology, 2025, 205: 105779 DOI:10.1016/j.apsoil.2024.105779 ( 0) |
| [15] |
Ji X M, Liu M H, Yang J L, et al. Meta-analysis of the impact of freeze–thaw cycles on soil microbial diversity and C and N dynamics[J]. Soil Biology and Biochemistry, 2022, 168: 108608 DOI:10.1016/j.soilbio.2022.108608 ( 0) |
| [16] |
Sang C P, Xia Z W, Sun L F, et al. Responses of soil microbial communities to freeze–thaw cycles in a Chinese temperate forest[J]. Ecological Processes, 2021, 10: 66 DOI:10.1186/s13717-021-00337-x ( 0) |
| [17] |
Zong R, Wang Z H, Li W H, et al. Assessing the impact of seasonal freezing and thawing on the soil microbial quality in arid northwest China[J]. Science of the Total Environment, 2023, 863: 161029 DOI:10.1016/j.scitotenv.2022.161029 ( 0) |
| [18] |
Koponen H T, Jaakkola T, Keinänen-Toivola M M, et al. Microbial communities, biomass, and activities in soils as affected by freeze thaw cycles[J]. Soil Biology and Biochemistry, 2006, 38(7): 1861-1871 DOI:10.1016/j.soilbio.2005.12.010 ( 0) |
| [19] |
黑龙江省统计局. 2016黑龙江统计年鉴[EB/OL]. [2017–10–09]. https://tjj.hlj.gov.cn/tjj/c106782/201710/c00_30326196.shtml.
( 0) |
| [20] |
黑龙江省统计局. 2017黑龙江统计年鉴[EB/OL]. [2018–01–05]. https://tjj.hlj.gov.cn/tjj/c106782/201801/c00_30326270.shtml.
( 0) |
| [21] |
黑龙江省统计局. 2018黑龙江统计年鉴[EB/OL]. [2019–02–14]. https://tjj.hlj.gov.cn/tjj/c106782/201902/c00_30326285.shtml.
( 0) |
| [22] |
黑龙江省统计局. 2019黑龙江统计年鉴[EB/OL]. [2020–01–20]. https://tjj.hlj.gov.cn/tjj/c106782/202001/c00_30326302.shtml.
( 0) |
| [23] |
黑龙江省统计局. 2015黑龙江统计年鉴[EB/OL]. [2016–01–26]. https://tjj.hlj.gov.cn/tjj/c106782/201601/c00_30325693.shtml.
( 0) |
| [24] |
鲁博权, 臧淑英, 孙丽. 冻融作用对大兴安岭典型森林土壤活性有机碳和氮矿化的影响[J]. 环境科学学报, 2019, 39(5): 1664-1672 ( 0) |
| [25] |
鲁如坤. 土壤农业化学分析方法[M].
中国农业科学出版社, 北京, 1999
( 0) |
| [26] |
Campbell C D, Chapman S J, Cameron C M, et al. A rapid microtiter plate method to measure carbon dioxide evolved from carbon substrate amendments so as to determine the physiological profiles of soil microbial communities by using whole soil[J]. Applied and Environmental Microbiology, 2003, 69(6): 3593-3599 DOI:10.1128/AEM.69.6.3593-3599.2003 ( 0) |
| [27] |
Kreyling J, Beierkuhnlein C, Pritsch K, et al. Recurrent soil freeze–thaw cycles enhance grassland productivity[J]. New Phytologist, 2008, 177(4): 938-945 DOI:10.1111/j.1469-8137.2007.02309.x ( 0) |
| [28] |
Choudhary P, Bhatt S, Chatterjee S. From freezing to functioning: Cellular strategies of cold-adapted bacteria for surviving in extreme environments[J]. Archives of Microbiology, 2024, 206(7): 329 DOI:10.1007/s00203-024-04058-5 ( 0) |
| [29] |
Schimel J P, Clein J S. Microbial response to freeze-thaw cycles in tundra and taiga soils[J]. Soil Biology and Biochemistry, 1996, 28(8): 1061-1066 DOI:10.1016/0038-0717(96)00083-1 ( 0) |
| [30] |
Jefferies R L, Walker N A, Edwards K A, et al. Is the decline of soil microbial biomass in late winter coupled to changes in the physical state of cold soils[J]. Soil Biology and Biochemistry, 2010, 42(2): 129-135 DOI:10.1016/j.soilbio.2009.10.008 ( 0) |
| [31] |
Schmidt S K, Costello E K, Nemergut D R, et al. Biogeochemical consequences of rapid microbial turnover and seasonal succession in soil[J]. Ecology, 2007, 88(6): 1379-1385 DOI:10.1890/06-0164 ( 0) |
| [32] |
Deng F B, Xie H T, Zheng T T, et al. Dynamic responses of soil microbial communities to seasonal freeze-thaw cycles in a temperate agroecosystem[J]. Science of the Total Environment, 2024, 950: 175228 DOI:10.1016/j.scitotenv.2024.175228 ( 0) |
| [33] |
Nielsen C B, Groffman P M, Hamburg S P, et al. Freezing effects on carbon and nitrogen cycling in northern hardwood forest soils[J]. Soil Science Society of America Journal, 2001, 65(6): 1723-1730 DOI:10.2136/sssaj2001.1723 ( 0) |
| [34] |
Schimel J P, Mikan C. Changing microbial substrate use in Arctic tundra soils through a freeze-thaw cycle[J]. Soil Biology and Biochemistry, 2005, 37(8): 1411-1418 DOI:10.1016/j.soilbio.2004.12.011 ( 0) |
| [35] |
Larsen K S, Jonasson S, Michelsen A. Repeated freeze–thaw cycles and their effects on biological processes in two Arctic ecosystem types[J]. Applied Soil Ecology, 2002, 21(3): 187-195 DOI:10.1016/S0929-1393(02)00093-8 ( 0) |
| [36] |
Männistö M K, Tiirola M, Häggblom M M. Effect of freeze-thaw cycles on bacterial communities of Arctic tundra soil[J]. Microbial Ecology, 2009, 58(3): 621-631 DOI:10.1007/s00248-009-9516-x ( 0) |
| [37] |
张志明, 韩晓增. 黑土母质熟化过程微生物群落碳源代谢特征[J]. 生态学报, 2015, 35(21): 6957-6964 ( 0) |
| [38] |
Jones D L, Farrar J F, Newsham K K. Rapid amino acid cycling in Arctic and Antarctic soils[J]. Water, Air, & Soil Pollution: Focus, 2005, 4(6): 169-175 ( 0) |
| [39] |
Stres B, Philippot L, Faganeli J, et al. Frequent freeze-thaw cycles yield diminished yet resistant and responsive microbial communities in two temperate soils: A laboratory experiment: Himalayan freeze-thaw physiological adaptations[J]. FEMS Microbiology Ecology, 2010, 74(2): 323-335 DOI:10.1111/j.1574-6941.2010.00951.x ( 0) |
| [40] |
Nedwell D B. Effect of low temperature on microbial growth: Lowered affinity for substrates limits growth at low temperature[J]. FEMS Microbiology Ecology, 1999, 30(2): 101-111 DOI:10.1111/j.1574-6941.1999.tb00639.x ( 0) |
| [41] |
Ladino-Orjuela G, Gomes E, da Silva R, et al. Metabolic pathways for degradation of aromatic hydrocarbons by bacteria[M]//de Voogt W P. Reviews of Environmental Contamination and Toxicology Volume 237. Cham: Springer International Publishing, 2016: 105–121.
( 0) |
| [42] |
孙嘉鸿, 郭彤, 董彦民, 等. 冻融循环对金川泥炭沼泽土壤微生物量及群落结构的影响[J]. 生态学报, 2022, 42(7): 2763-2773 ( 0) |
| [43] |
Price P B, Sowers T. Temperature dependence of metabolic rates for microbial growth, maintenance, and survival[J]. Proceedings of the National Academy of Sciences of the United States of America, 2004, 101(13): 4631-4636 ( 0) |
| [44] |
Simoneit B R T, Elias V O, Kobayashi M, et al. Sugars-Dominant water-soluble organic compounds in soils and characterization as tracers in atmospheric particulate matter[J]. Environmental Science & Technology, 2004, 38(22): 5939-5949 ( 0) |
| [45] |
Copeland L, Turner J F. The regulation of glycolysis and the pentose phosphate pathway[M]//Biochemistry of Metabolism. Amsterdam: Elsevier, 1987: 107–128.
( 0) |
| [46] |
Su A P, Yu Q J, Luo Y, et al. Metabolic engineering of microorganisms for the production of multifunctional non-protein amino acids: γ-aminobutyric acid and δ-aminolevulinic acid[J]. Microbial Biotechnology, 2021, 14(6): 2279-2290 DOI:10.1111/1751-7915.13783 ( 0) |
| [47] |
Dhakal R, Bajpai V K, Baek K H. Production of gaba (γ - aminobutyric acid) by microorganisms: A review[J]. Brazilian Journal of Microbiology, 2012, 43(4): 1230-1241 DOI:10.1590/S1517-83822012000400001 ( 0) |
| [48] |
Tian J, Dungait J A J, Lu X K, et al. Long-term nitrogen addition modifies microbial composition and functions for slow carbon cycling and increased sequestration in tropical forest soil[J]. Global Change Biology, 2019, 25(10): 3267-3281 DOI:10.1111/gcb.14750 ( 0) |
| [49] |
王世佳, 郭亚芬, 崔晓阳. 大兴安岭地区林下土壤酶活性对冻融交替的响应[J]. 应用生态学报, 2023, 34(5): 1211-1217 ( 0) |
| [50] |
Henry H A L. Soil freeze–thaw cycle experiments: Trends, methodological weaknesses and suggested improvements[J]. Soil Biology and Biochemistry, 2007, 39(5): 977-986 DOI:10.1016/j.soilbio.2006.11.017 ( 0) |
| [51] |
王洋, 刘景双, 王全英. 冻融作用对土壤团聚体及有机碳组分的影响[J]. 生态环境学报, 2013, 22(7): 1269-1274 ( 0) |
| [52] |
夏品华, 寇永珍, 喻理飞. 喀斯特高原退化湿地草海土壤微生物群落碳源代谢活性研究[J]. 环境科学学报, 2015, 35(8): 2549-2555 ( 0) |
| [53] |
蒲家慧, 姜楠, 隽英华, 等. 冻融对温带土壤可溶性氮库、氮转化过程及细菌群落多样性的影响[J]. 应用生态学报, 2020, 31(9): 2893-2902 ( 0) |
| [54] |
Tian D, Jiang L, Ma S H, et al. Effects of nitrogen deposition on soil microbial communities in temperate and subtropical forests in China[J]. Science of the Total Environment, 2017, 607: 1367-1375 ( 0) |
| [55] |
Niu G X, Hasi M, Wang R Z, et al. Soil microbial community responses to long-term nitrogen addition at different soil depths in a typical steppe[J]. Applied Soil Ecology, 2021, 167: 104054 DOI:10.1016/j.apsoil.2021.104054 ( 0) |
2. College of Modern Agriculture and Eco-Environment, Heilongjiang University, Harbin 150080, China;
3. University of Chinese Academy of Sciences, Beijing 100049, China