 2026, Vol. 58


2. 交科院环境科技(北京)有限公司, 北京 100029;
3. 交科院科技集团有限公司, 北京 100029;
4. 云南大学生态与环境学院暨云南省高原山地生态与退化环境修复重点实验室/滇中生态敏感区生态功能修复云南省野外科学观测研究站, 昆明 650091
土壤酶作为土壤生物化学过程的催化剂,在陆地生态系统物质循环和能量流动中发挥着关键作用[1]。近年来,生态化学计量学的发展为理解土壤酶活性与环境因子的关系提供了新的视角[2]。研究表明,土壤微生物通过分泌胞外酶来获取碳(C)、氮(N)和磷(P)等养分,其酶活性比值(如β-葡糖苷酶(BG)/β-乙酰葡糖胺糖苷酶(NAG)、BG/酸性磷酸酶(ACP)等)可以反映微生物的养分限制状况[3]。在全球尺度上,土壤酶化学计量比通常遵循1∶1∶1的比例关系[4],但在特定生态系统中,这一比例往往会因环境条件的差异而发生改变[5]。亚热带地区是我国重要的生态屏障,其典型的人工林生态系统在区域碳汇和水土保持方面具有重要作用[6]。然而,关于亚热带不同植物群落(特别是人工林与自然植被)土壤酶化学计量特征的系统研究仍显不足。广西百色市地处典型的亚热带季风气候区,区域内植被类型多样,这为研究不同植物群落对土壤酶化学计量特征的影响提供了理想场所。目前已有研究表明,植物群落类型可通过改变凋落物质量、根系分泌物等途径影响土壤酶活性[7]。例如,与巨桉纯林相比,3种混交林均提高了NAG和亮氨酸氨基肽酶(LAP)活性,但降低了土壤BG和ACP活性[8]。此外,土壤深度也是影响酶化学计量特征的重要因素,随着土壤深度的增加,有机质含量和微生物活性通常会降低,从而导致酶活性的垂直分异[9]。然而,关于亚热带地区不同植物群落土壤酶化学计量特征的垂直分布规律及其驱动机制仍不清楚。
基于此,本研究以广西百色市5种典型植物群落(3种人工林、1种次生林和1种草丛)为研究对象,通过测定不同深度(0~30、30~60、60~90 cm)土层的酶活性和理化性质,旨在:①揭示不同植物群落土壤酶化学计量特征的差异;②阐明土壤酶化学计量特征的垂直分布规律;③解析影响土壤酶化学计量的关键环境因子。研究结果将为亚热带地区人工林可持续经营和生态系统管理提供科学依据。
1 材料与方法 1.1 研究区域与植物群落广西百色市地处桂西喀斯特山区,属南亚热带季风气候与喀斯特地貌的典型区域,植被主要为常绿阔叶林(次生林)和针叶林(人工林)。常绿阔叶林主要以麻栎(Quercus acutissima Carruth.)、枫香(Liquidambar formosana Hance.)为优势的次生常绿阔叶林,虽不乏落叶成分,但常绿的种类和数量明显占优势,且生境比较分散,分布面积较小。针叶林以马尾松群系、杉木群系为主,该区域原属常绿阔叶林植被,后经人为破坏,马尾松(Pinus massoniana Lamb.)、杉木(Cunninghamia lanceolata (Lamb.) Hook.)飞播,发育成人工林,少部分在山脊立地条件较差的地带形成偏顶极群落。有些区域原为人工林,砍伐后未再种植,即为草丛。草丛主要为暖性草丛,由芒(Miscanthus sinensis)、芒萁(Dicranopteris pedata)、五节芒(Miscanthus floridulus)、紫茎泽兰(Ageratina adenophora)、牛尾蒿(Artemisia dubia)等组成。
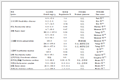
本研究选择3种典型人工林,并以次生常绿阔叶林和草丛作为参考,样地信息详见表 1。
|
表 1 研究区域植物群落信息 Table 1 Vegetation community information in the study area |
按照选取的5种典型植物群落,每种群落设置4个重复样地,样地间距≥1 km,人工林和次生林样地面积为20 m × 20 m,草丛样地面积为1 m × 1 m,采用五点采样法布设采样点。地表植被覆盖度 > 85%,人工林和次生林凋落物层厚度为3~5 cm,草丛为1~2 cm。研究区属典型喀斯特峰丛洼地,土层厚度在1 m以上,采集0~30、30~60、60~90 cm 3个完整剖面样品,共60个土样。现场采用四分法进行土样缩分,最终取约1 kg土壤装入样品袋。将土样带回实验室后分成两份:一份保留新鲜土壤并通过10目孔径筛用于测定铵态氮(NH4+-N)、硝态氮(NO3–-N)及土壤酶活性;一份自然风干后,剔除砂砾、植物根系等异物,分别过10目孔径筛用于测定土壤pH,过20目孔径筛用于测定土壤有效磷和速效钾,过100目孔径筛用于测定土壤全量养分含量。
1.2.2 土壤酶活性测定及酶化学计量计算本研究采用纪宁生物试剂盒测定了4种酶活性,分别为β-葡糖苷酶(BG)、β-乙酰葡糖胺糖苷酶(NAG)、亮氨酸氨基肽酶(LAP)、酸性磷酸酶(ACP),具体方法详见试剂盒(JN24616X、JN24686X、JN24687X、JN24624X)。
酶化学计量通过碳获取酶(BG)、氮获取酶(NAG+LAP)和磷获取酶(ACP)的活性比来反映。土壤胞外酶C∶N、N∶P和C∶P分别使用以下公式计算[4]:
| $ {E_{{\text{C}} : {\text{N}}}}{\text{ = }}\frac{{{\text{ln}}\left( {{\text{BG}}} \right)}}{{{\text{ln}}\left( {{\text{NAG + LAP}}} \right)}} $ | (1) |
| $ {E_{{\text{N}} : {\text{P}}}}{\text{ = }}\frac{{{\text{ln}}\left( {{\text{NAG + LAP}}} \right)}}{{{\text{ln}}\left( {{\text{ACP}}} \right)}} $ | (2) |
| $ {E_{{\text{C}} : {\text{P}}}}{\text{ = }}\frac{{{\text{ln}}\left( {{\text{BG}}} \right)}}{{{\text{ln}}\left( {{\text{ACP}}} \right)}} $ | (3) |
使用酶活性矢量分析(矢量长度和矢量角度) [10]研究土壤微生物养分与资源限制:
| $ {\text{Vector length = }}{\left( {{x^{\text{2}}}{\text{ + }}{y^{\text{2}}}} \right)^{{\text{1/2}}}} $ | (4) |
| $ {\text{Vector angle = Arctan2}}\left( {x, y} \right) \times \frac{{{\text{180}}}}{{\text{π }}} $ | (5) |
式中:
基于生态化学计量法计算土壤微生物CUE和NUE[11]。
| $ {\text{CU}}{{\text{E}}_{{\text{C}} : {\text{N}}}}{\text{ = CU}}{{\text{E}}_{{\text{max}}}} \times \frac{{{S_{{\text{C}} : {\text{N}}}}}}{{{\text{(}}{K_{{\text{C}} : {\text{N}}}}{\text{ + }}{S_{{\text{C}} : {\text{N}}}}{\text{)}}}} $ | (6) |
| $ {S_{{\text{C}} : {\text{N}}}}{\text{ = }}\frac{{\text{1}}}{{{\text{EE}}{{\text{A}}_{{\text{C}} : {\text{N}}}}}} \times \frac{{{B_{{\text{C}} : {\text{N}}}}}}{{{L_{{\text{C}} : {\text{N}}}}}} $ | (7) |
| $ {\text{NUE = NU}}{{\text{E}}_{{\text{max}}}} \times \frac{{{S_{{\text{N}} : {\text{C}}}}}}{{{\text{(}}K{\text{ + }}{S_{{\text{N}} : {\text{C}}}}{\text{)}}}} $ | (8) |
| $ {S_{{\text{N}} : {\text{C}}}}{\text{ = (1}} - {\text{EE}}{{\text{A}}_{{\text{N}} : {\text{C}}}}{\text{)}} \times \frac{{{B_{{\text{N}} : {\text{C}}}}}}{{{L_{{\text{N}} : {\text{C}}}}}} $ | (9) |
式中:
土壤理化性质测定参照《土壤农化分析》[12]。具体为:土壤容重(BD)采用环刀法测定;土壤含水量(SWC)采用重量烘干法测定;铵态氮(NH4+-N)、硝态氮(NO3–-N)采用氯化钾浸提–分光光度法测定;pH采用电位法测定;全磷(TP)采用酸溶–钼锑抗分光光度法测定;全氮(TN)采用凯氏定氮法测定;全碳(TC)和总有机碳(TOC)采用燃烧氧化–非分散红外法测定;全钾(TK)采用硝酸/高氯酸消解–电感耦合等离子体质谱法测定;有效磷(AP)采用氟化铵–盐酸浸提–钼锑抗分光光度法测定;速效钾(AK)采用乙酸铵浸提–火焰光度法测定;阳离子交换量(CEC)采用三氯化六氨合钴浸提–分光光度法测定。土壤微生物生物量碳(MBC)、微生物生物量氮(MBN)、微生物生物量磷(MBP)采用氯仿熏蒸–浸提法[13]测定。
1.3 数据统计与分析采用Excel 2021、SPSS 26.0和Origin 2025进行数据处理、分析和绘图。土壤理化性质、酶活性及其计量比的差异显著性采用单因素方差分析(One-way ANOVA)进行检验,并通过Duncan氏新复极差法进行多重比较(P < 0.05);土壤酶活性及化学计量比与土壤理化性质间的相关性分析采用Pearson相关分析法。
2 结果与分析 2.1 不同植物群落土壤理化性质表 2为广西百色市不同植物群落的土壤理化性质。人工林(F-EG、F-CL)容重较低(0.78~0.85 g/cm3),次生林(F-SW)较高(0.83~0.85 g/cm3)。不同植物群落间,表层含水率差异显著,其中,F-EG含水率最高,达14.94%,F-BA最低,为9.68%;深层含水率则较稳定。3种人工林中,F-EG(蓝桉)、F-BA(西桦–八角枫)0~30 cm pH显著高于F-CL(杉木);随土层深度增加,F-EG和F-BA土壤pH显著下降,而F-CL则较稳定。总体而言,次生林(F-SW)pH最低,草丛(F-AB)pH最高。F-BA 0~30 cm NO3–-N含量最高(4.55 mg/kg),显著高于F-EG(2.65 mg/kg)、F-CL (1.49 mg/kg)、F-AB(1.49 mg/kg)和F-SW(0.98 mg/kg);F-SW各土层NO3–-N含量均最低。除3种人工林(F-EG、F-CL和F-BA)表层(0~30 cm) NH4+-N含量显著低于F-SW和F-AB外,各群落间其他土层NH4+-N含量均无显著差异。次生林(F-SW)各土层全钾(TK)含量均最高;草丛(F-AB)各土层速效钾(AK)含量最高;除F-AB 60~90 cm土层有效磷(AP)含量最高外,3种人工林各土层AP含量均高于次生林和草丛。3种人工林各土层总有机碳(TOC)含量均高于次生林和草丛。综上所述,人工林氮素有效性较高,次生林酸性较强但全钾丰富,草丛钾素有效性高。
|
|
表 2 不同植物群落土壤基本理化性质 Table 2 Soil basic physicochemical properties under different plant communities |
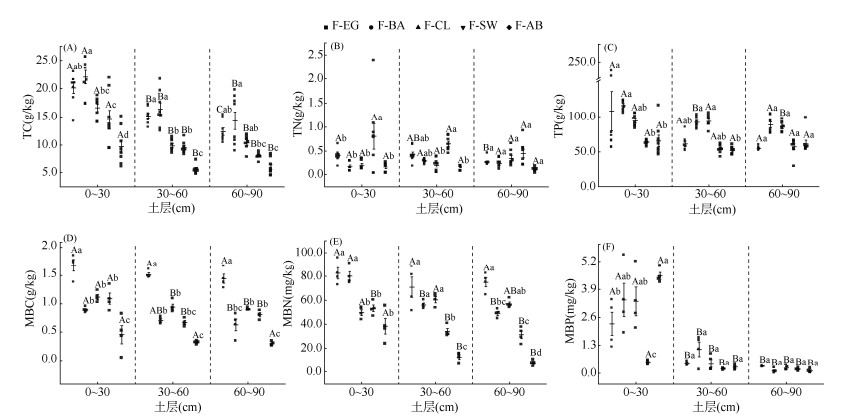
图 1为广西百色市不同植物群落的土壤养分分布特征。在0~30 cm土层,F-BA的TC含量最高(22.02 g/kg),显著高于F-CL、F-SW和F-AB;TN含量以F-SW最高(0.81 g/kg),且显著高于其他群落;TP含量则在人工林F-BA含量最高(115.68 mg/kg),而F-SW最低(63.65 mg/kg)。微生物生物量方面,0~30 cm土层,MBC、MBN含量表现为F-EG最高(分别为1.65 g/kg和82.62 mg/kg),而草丛(F-AB)最低(0.25 g/kg和38.49 mg/kg);MBP则以F-AB最高(4.52 mg/kg),F-SW最低(0.52 mg/kg)。随土层加深,TC、TN、TP、MBC、MBN和MBP多呈下降趋势,但不同群落变化幅度不同。总体而言,草丛(F-AB)表层碳氮磷含量普遍最低(MBP除外);F-BA和F-CL的养分含量垂直变化相对较小,其他群落随土层深度增加显著降低。
|
(图中大写字母不同表示同一植物群落不同土层深度间差异显著(P < 0.05),小写字母不同表示同一土层深度不同植物群落间差异显著(P < 0.05),下同) 图 1 不同植物群落土壤全碳、全氮、全磷和微生物生物量碳、氮、磷含量 Fig. 1 Soil total carbon, total nitrogen, total phosphorus, and microbial biomass carbon, nitrogen and phosphorus contents under different plant communities |
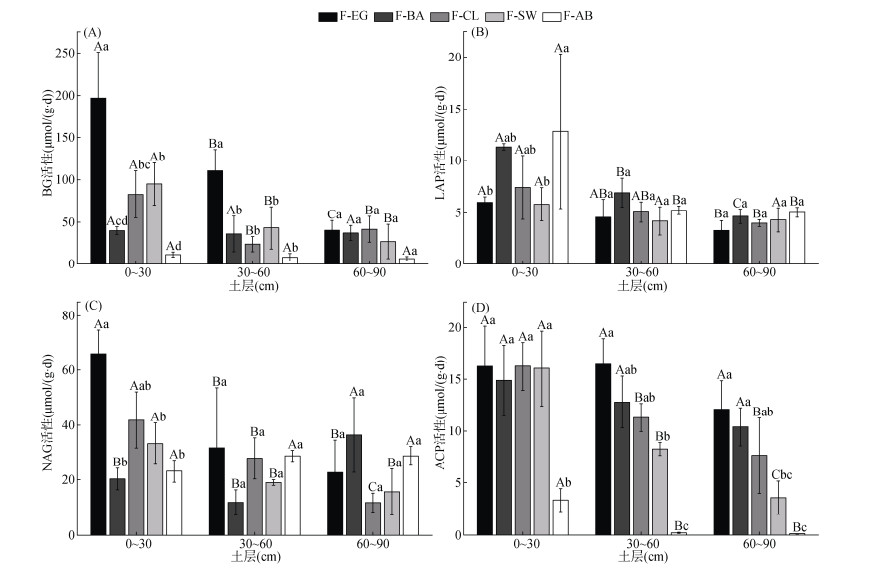
图 2为不同植物群落土壤酶活性。在0~30 cm土层,F-EG的BG活性最高(196.98 µmol/(g·d)),显著高于其他4个群落,并且是酶活性最低的F-AB群落(11.36 µmol/(g·d))的17.3倍;NAG活性同样以F-EG最高(61.48 µmol/(g·d)),且显著高于F-AB、F-BA和F-SW;LAP活性为草丛F-AB最高(12.82 µmol/(g·d)),且显著高于F-EG和F-SW;而ACP活性则表现为F-AB显著低于其他4个群落。随土层加深,除F-BA中NAG活性表现为先降后升外,各植物群落中4种酶活性整体均呈降低趋势。总体而言,F-EG在BG、NAG和ACP活性上表现突出;而F-AB的LAP活性最高,但其他酶活性多处于最低水平。
|
图 2 不同植物群落土壤酶活性 Fig. 2 Soil enzyme activities under different plant communities |
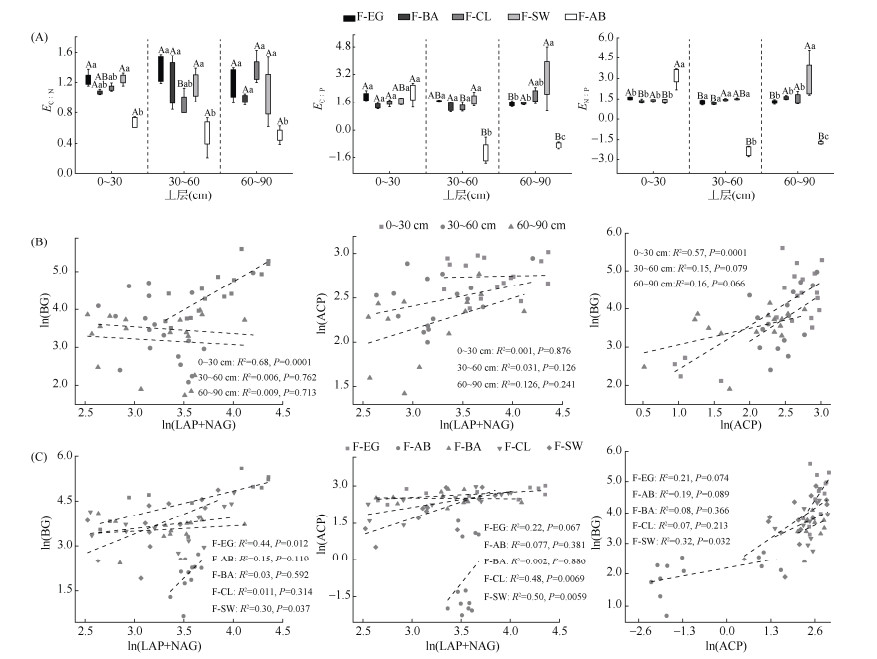
酶化学计量比垂直分布特征见图 3A,在0~ 30 cm土层,EC∶N以F-EG最高(1.23),显著高于F-AB (0.67),表明其微生物的碳投资相对更多于碳获取;随土层深度增加,F-CL表现为先降后升的波动趋势,其他群落则没有显著变化。EN∶P在表层以F-AB最高(3.19),且显著高于其他4个群落,显示出更强的氮相对磷需求趋势;随土层深度增加,F-AB和F-EG的EN∶P显著降低,F-SW和F-BA显著升高,F-CL则保持稳定。EC∶P在表层以F-AB最高(2.16),但各群落之间差异均不显著;F-AB的EC∶P在30~60 cm显著降低至–1.31,而F-EG则在60~90 cm显著下降。酶活性比值的相关性如图 3B所示,BG/(LAP+NAG)在0~30 cm土层呈现强相关性(R2=0.68,P < 0.001),但在深层相关性减弱(R2=0.05)。ACP/(LAP+NAG)在所有土层均呈弱相关。BG/ACP在表层相关性较强(R2=0.57,P < 0.001),深层较弱(30~60 cm:R2=0.15;60~90 cm:R2=0.16)。从图 3C可见,不同群落酶活性关系差异显著。F-EG的BG/(LAP+NAG)相关性最强(R2=0.44,P=0.012),而F-BA最弱(R2=0.03)。F-SW的ACP/(LAP+NAG)相关性最强(R2=0.50,P=0.005 9),F-BA最弱(R2=0.002)。F-SW的BG/ACP相关性显著(R2=0.32,P=0.032),F-AB不显著(R2=0.19)。总体而言,人工林(F-EG)在BG/(LAP+NAG)呈现强相关,次生林(F-SW)在所有酶计量比均显示强相关,而草丛(F-AB)均呈弱相关。
|
图 3 不同植物群落酶活性化学计量比特征 Fig. 3 Stoichiometric characteristics of enzyme activities under different plant communities |
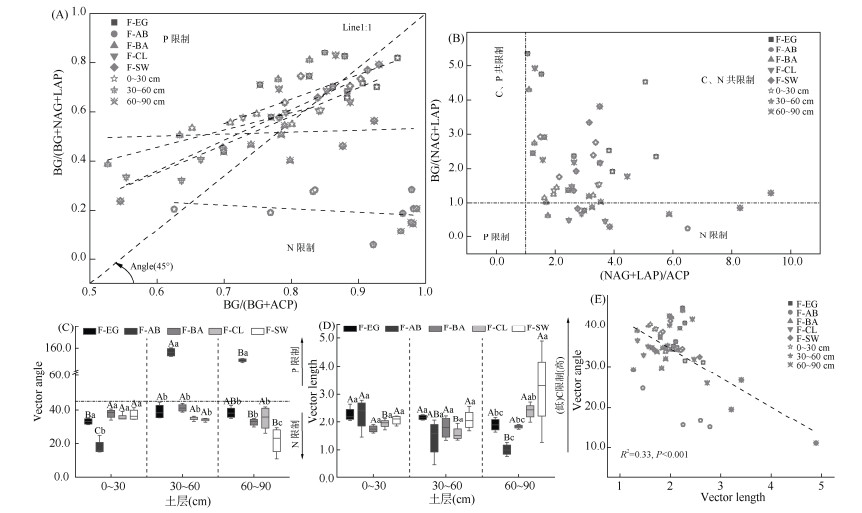
土壤酶化学计量向量分析揭示了群落和土层差异(图 4)。所有数据点沿1∶1虚线两侧分布,表明微生物群落普遍存在碳、氮、磷多重限制,但限制类型呈现空间异质性(图 4A)。F-EG部分样点落入磷限制区,F-BA和F-CL则主要表现出氮限制,且F-CL的矢量长度普遍较短,表明其微生物所受的碳限制相对较弱。F-AB则主要受氮限制。酶计量比回归分析(BG/(NAG+LAP)、(NAG+LAP)/ACP)进一步证实微生物生长主要受碳、氮共同限制(图 4B)。向量特征分析显示,F-SW 60~90 cm土层具有最长的向量长度(P < 0.05),反映强烈的碳限制;相反,F-AB同层向量最短,碳限制最弱(图 4C、4D)。除F-AB的30~90 cm土层外,所有向量角度均小于45°,结合回归分析结果,一致表明研究区微生物群落存在普遍性氮限制(图 4E)。
|
图 4 土壤胞外酶矢量特征(长度和角度)及其关系 Fig. 4 Vector characteristics (length and angle) of soil extracellular enzymes and their relationships |
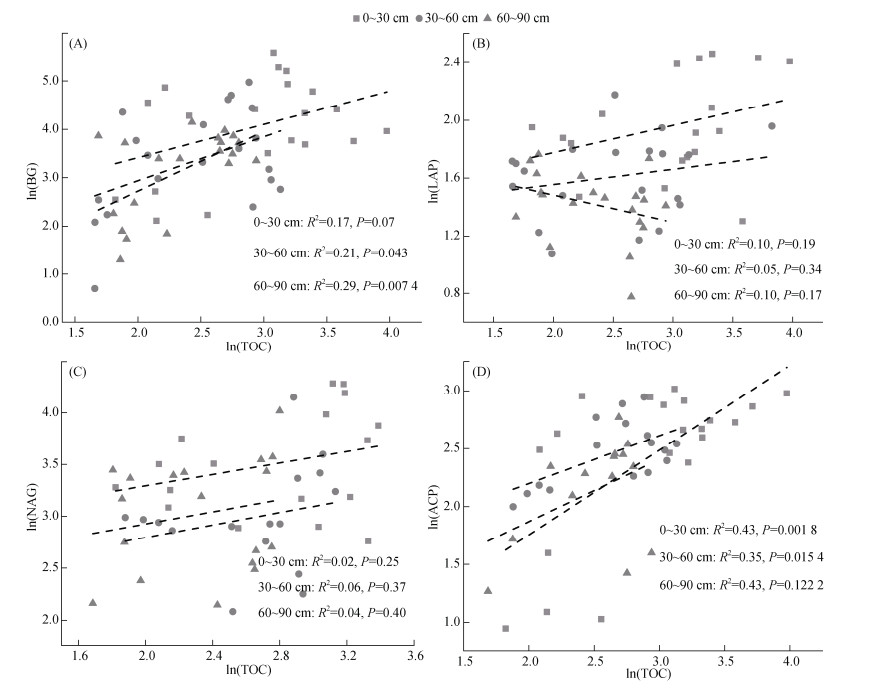
土壤酶活性与总有机碳(TOC)的关系见图 5。在0~30 cm土层,BG(R2=0.17,P=0.07)和ACP(R2=0.43,P=0.001 8)与TOC呈显著正相关;30~60 cm土层,ACP仍保持较强相关性(R2=0.35,P=0.015 4),BG相关性减弱(R2=0.21,P=0.043);深层土壤(60~90 cm)酶与TOC关系普遍不显著,仅BG呈正相关趋势(R2=0.29,P=0.007 4)。LAP和NAG在各土层与TOC均无显著相关性(P > 0.05)。结果表明:碳获取酶(BG)和磷获取酶(ACP)是驱动表层土壤有机碳转化的关键酶;且与TOC关系具有明显的垂直分异特征,随土层深度增加而减弱;氮获取酶(LAP、NAG)与TOC的关联性较弱,表明氮循环与碳库的耦合机制不同于磷循环。
|
图 5 土壤酶活性与总有机碳的关系 Fig. 5 Relationship between soil enzyme activities and total organic carbon |
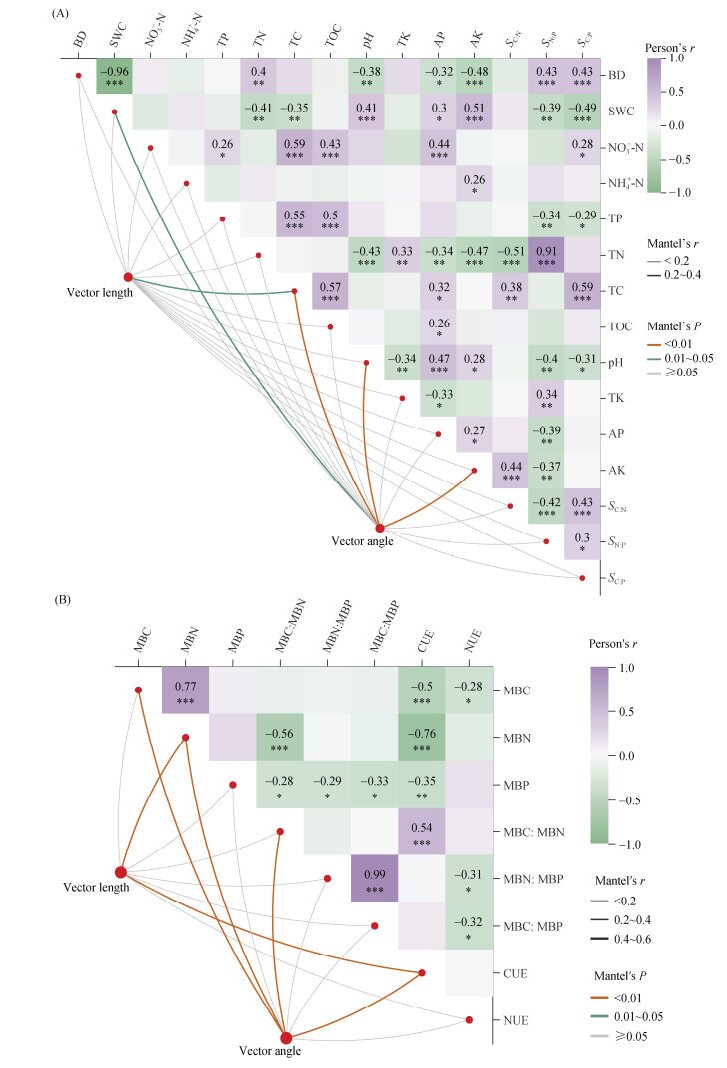
向量长度与TC、MBN和CUE呈显著正相关(P < 0.05);向量角度与TC、pH、AK、SWC、MBC、MBN、MBC∶MBN和CUE呈显著正相关(P < 0.05,图 6)。
|
(图中*、**、***分别表示相关性达P < 0.05、P < 0.01和P < 0.001显著水平,下同) 图 6 向量角度和向量长度与土壤理化性质(A)及微生物生物量(B)之间的关系 Fig. 6 Relationships between vector angle and length with soil physicochemical properties (A) and microbial biomass (B) |
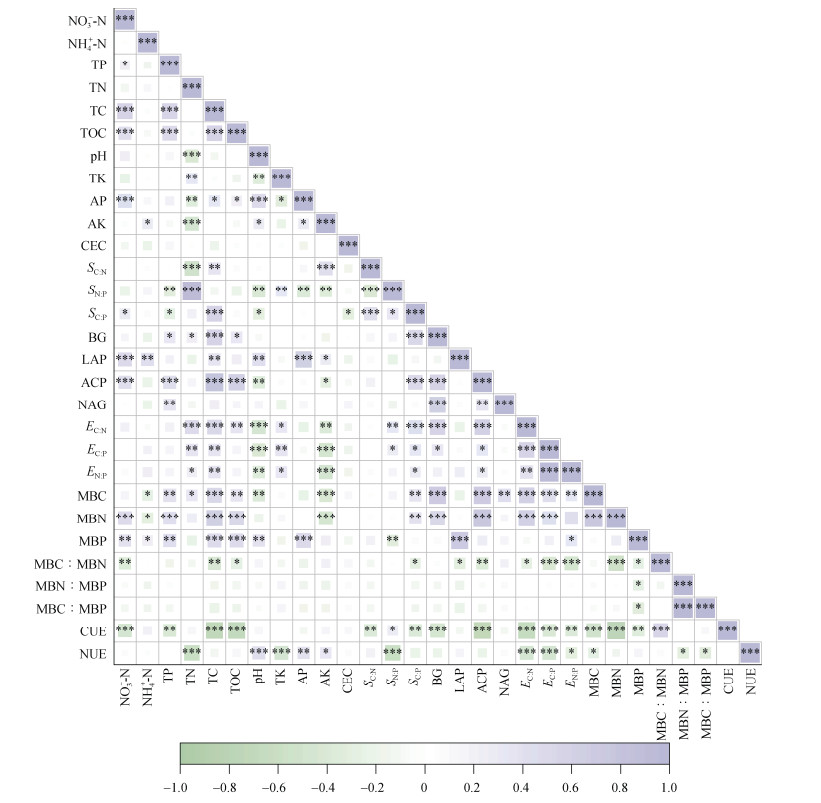
图 7揭示了土壤酶活性及其化学计量比与土壤环境因子的相关性。BG活性与TP、TN、TC、SC∶P呈显著正相关,表明其活性受氮和磷的驱动。LAP活性与NO3–-N、NH4+-N、TC、pH、AP、AK呈显著正相关,反映其受养分含量和酸碱度调控。ACP活性与NO3–-N、TP、TOC呈显著正相关(r=0.38~0.56),显示磷有效性是关键限制因子。NAG活性仅与TP呈显著正相关,表明磷元素是主要影响因素。酶化学计量比中,EC∶N与TN、TOC、SC∶P呈显著正相关,与CUE呈显著负相关,表明其受氮磷化学计量和微生物碳利用效率调控。EC∶P和EN∶P均与TN、SN∶P呈显著正相关,与CUE、NUE呈显著负相关,说明二者共同反映土壤养分平衡状态。MBC、MBN与所有酶计量比呈显著正相关,凸显微生物群落结构对酶活性的调控作用。
|
图 7 土壤酶活性和酶化学计量比与土壤因子之间的Pearson相关分析 Fig. 7 Pearson correlation analysis between soil enzyme activities, enzymatic stoichiometry and soil factors |
本研究通过对广西百色市黄百铁路沿线不同植物群落(人工林、次生林、草丛)的土壤酶化学计量特征进行分析,发现不同植物群落的土壤酶活性及其化学计量比存在显著差异。这些差异可能与不同植物群落的凋落物质量、根系分泌物以及土壤理化性质有关。
人工林蓝桉群系(F-EG)在0~30 cm土层的BG活性显著高于其他群落,表明其土壤微生物对碳的获取能力较强。可能是蓝桉具有较高的木质素含量,导致凋落物分解较慢,促使微生物分泌更多碳获取酶(如BG)以降解复杂碳源[14],从而刺激了BG的分泌;而紫茎泽兰–鬼针草群系(F-AB)的LAP活性最高,说明该群落的微生物可能更倾向于利用氮源。研究证实,草丛凋落物易分解且氮含量较低,其氮限制可能促使微生物分泌更多的LAP以获取氮养分,进而缓解氮限制[4]。次生林(如西南木荷)的酶化学计量比接近1∶1∶1,可能与其较稳定的养分循环和较高的微生物多样性有关[5]。
3.2 土层深度对酶化学计量特征的影响土层深度对酶活性和化学计量比的影响显著。随着土层深度的增加,大多数群落的BG、NAG和ACP活性呈下降趋势,这与土壤有机碳和养分含量的垂直分布一致。表层土壤(0~30 cm)由于植物凋落物和根系分泌物的输入,TOC和养分(如氮、磷)含量较高,而深层土壤(> 60 cm)资源匮乏,导致微生物生物量和酶合成能力下降[15]。本研究中,蓝桉群系(F-EG)的BG活性在0~30 cm比60~90 cm高4.9倍(图 2),与TOC含量的垂直分布显著正相关(图 5),支持了这一观点。值得注意的是,蓝桉群系的EC∶N在深层土壤中降低,表明微生物的碳需求随土层深度减弱,这可能与深层土壤中碳源的减少有关。
本研究中,次生林(F-SW)60~90 cm土层的酶矢量长度最大(图 4D),表明深层土壤微生物面临更强的碳限制。这与全球尺度分析结果一致[4],即深层土壤的C∶N和C∶P酶比值(EC∶N、EC∶P)通常低于表层,反映微生物需优先获取稀缺的碳源。紫茎泽兰–鬼针草群系(F-AB)在30~90 cm土层表现出磷限制(矢量角度 > 45°),而表层以氮限制为主(图 4C)。已有研究发现,干旱区土壤深层因磷的淋溶减少,可能从氮限制转为磷限制[16-17]。蓝桉群系(F-EG)其根系可延伸至深层土壤,通过分泌物刺激局部酶活性(如60~90 cm土层仍保持较高NAG活性)。研究指出,桉树人工林的细根生物量在60 cm以下占比可达20%,部分缓解了深层土壤的酶活性衰减[18]。例如,F-AB的凋落物集中于表层,导致深层土壤酶活性骤降(图 2)。Stone等[9]研究结果类似,认为这与微生物群落的垂直迁移能力受限有关。此外,F-EG的pH从表层5.2降至深层4.4(表 2),而ACP活性与pH呈显著负相关(图 7),这与Sinsabaugh等[11]的研究结果一致,即酸性条件下磷酸酶活性可能升高以应对磷的有效性降低。
3.3 土壤养分特征与酶化学计量的关系通过酶活性矢量分析发现,不同植物群落的土壤微生物普遍受到碳和氮的限制,尤其是次生林(F-SW)的60~90 cm土层表现出较强的碳限制,可能是由于高碳输入导致微生物需要更多碳获取酶[19]。而草丛(F-AB)的部分土层则显示出氮限制,这与全球干旱–半干旱区草丛生态系统的研究一致[20]。蓝桉群系的部分数据点位于磷限制区域,表明其微生物在某些条件下可能受到磷的限制,这可能与人工林土壤磷固定较强有关[15, 21]。本研究结果支持了“酶矢量分析”理论,即微生物会调整酶分泌策略以应对资源限制[10]。这些结果与土壤理化性质的分析一致,例如,次生林的全钾含量较高,但氮有效性较低;而草丛的钾素活性较高,但氮素相对匮乏。
Pearson相关分析表明,土壤酶活性及其化学计量比与多种土壤理化性质密切相关。BG和ACP活性与TOC呈显著正相关(图 7),说明碳源有效性是调控这些酶活性的关键因素,可驱动微生物的酶投资分配策略[14]。LAP活性与NO3–-N和NH4+-N含量呈显著正相关,反映了氮素对氮获取酶活性的影响。此外,本研究中次生林(F-SW)pH最低(4.1),其ACP活性较高,这与Xu等[5]的发现一致,即酸性土壤可能促进磷酸酶分泌以缓解磷限制;NO3–-N与LAP活性正相关,而有效磷(AP)与EC∶P负相关,说明养分供需关系驱动酶化学计量比的变化[19, 22],这也进一步验证了土壤pH、TOC和养分有效性是影响酶化学计量的重要因素[23-24]。土壤pH、AP和微生物生物量(MBC、MBN)也与酶化学计量比显著相关,表明土壤酸碱度和养分状况通过影响微生物群落结构和代谢活动,间接调控了酶的表达[25]。
4 结论1) 植物群落类型显著影响土壤酶化学计量特征。人工林表现出较高的碳获取酶(BG)活性,草丛则以氮获取酶(LAP、NAG)活性为主,次生林的酶化学计量比接近1∶1∶1。
2) 土层深度对酶活性及化学计量比具有显著调控作用,各群落的BG、LAP、NAG和ACP活性整体均随土层深度增加而降低。酶化学计量比的垂直分异进一步表明,深层土壤微生物的碳限制加剧。
3) 土壤理化性质是驱动酶化学计量的关键因素。土壤有机碳(TOC)与BG、ACP活性呈显著正相关,而pH和有效磷(AP)通过影响微生物群落结构与功能间接调控酶化学计量比。微生物生物量碳氮比(MBC∶MBN)与酶矢量特征(长度和角度)显著关联,证实了微生物生理需求对酶分泌策略的直接控制。
| [1] |
王理德, 王方琳, 郭春秀, 等. 土壤酶学研究进展[J]. 土壤, 2016, 48(1): 12-21 DOI:10.13758/j.cnki.tr.2016.01.002 (  0) |
| [2] |
Sinsabaugh R L, Hill B H, Follstad Shah J J. Ecoenzymatic stoichiometry of microbial organic nutrient acquisition in soil and sediment[J]. Nature, 2009, 462(7274): 795-798 DOI:10.1038/nature08632 ( 0) |
| [3] |
Cui Y X, Fang L C, Guo X B, et al. Ecoenzymatic stoichiometry and microbial nutrient limitation in rhizosphere soil in the arid area of the northern Loess Plateau, China[J]. Soil Biology and Biochemistry, 2018, 116: 11-21 DOI:10.1016/j.soilbio.2017.09.025 ( 0) |
| [4] |
Sinsabaugh R L, Lauber C L, Weintraub M N, et al. Stoichiometry of soil enzyme activity at global scale[J]. Ecology Letters, 2008, 11(11): 1252-1264 DOI:10.1111/j.1461-0248.2008.01245.x ( 0) |
| [5] |
Xu Z W, Yu G R, Zhang X Y, et al. Soil enzyme activity and stoichiometry in forest ecosystems along the North-South Transect in Eastern China (NSTEC)[J]. Soil Biology and Biochemistry, 2017, 104: 152-163 DOI:10.1016/j.soilbio.2016.10.020 ( 0) |
| [6] |
刘超华, 李凤巧, 廖杨文科, 等. 人工林对土壤地力的影响过程及其调控研究进展[J]. 土壤学报, 2023, 60(3): 644-656 ( 0) |
| [7] |
Waldrop M P, Harden J W, Turetsky M R, et al. Bacterial and enchytraeid abundance accelerate soil carbon turnover along a lowland vegetation gradient in interior Alaska[J]. Soil Biology and Biochemistry, 2012, 50: 188-198 DOI:10.1016/j.soilbio.2012.02.032 ( 0) |
| [8] |
万仁平, 唐剑东, 何博, 等. 巨桉皆伐迹地营造混交林对土壤胞外酶及化学计量的影响[J]. 土壤学报, 2025, 62(6): 1888-1901 ( 0) |
| [9] |
Stone M M, DeForest J L, Plante A F. Changes in extracellular enzyme activity and microbial community structure with soil depth at the Luquillo Critical Zone Observatory[J]. Soil Biology and Biochemistry, 2014, 75: 237-247 DOI:10.1016/j.soilbio.2014.04.017 ( 0) |
| [10] |
Moorhead D L, Sinsabaugh R L, Hill B H, et al. Vector analysis of ecoenzyme activities reveal constraints on coupled C, N and P dynamics[J]. Soil Biology and Biochemistry, 2016, 93: 1-7 ( 0) |
| [11] |
Sinsabaugh R L, Turner B L, Talbot J M, et al. Stoichiometry of microbial carbon use efficiency in soils[J]. Ecological Monographs, 2016, 86(2): 172-189 DOI:10.1890/15-2110.1 ( 0) |
| [12] |
鲍士旦. 土壤农化分析[M]. 3版. 北京: 中国农业出版社, 2000.
( 0) |
| [13] |
Brookes P C, Kragt J F, Powlson D S, et al. Chloroform fumigation and the release of soil nitrogen: The effects of fumigation time and temperature[J]. Soil Biology and Biochemistry, 1985, 17(6): 831-835 DOI:10.1016/0038-0717(85)90143-9 ( 0) |
| [14] |
Chen J, Luo Y Q, van Groenigen K J, et al. A keystone microbial enzyme for nitrogen control of soil carbon storage[J]. Science Advances, 2018, 4(8): eaaq1689 DOI:10.1126/sciadv.aaq1689 ( 0) |
| [15] |
Peng X Q, Wang W. Stoichiometry of soil extracellular enzyme activity along a climatic transect in temperate grasslands of northern China[J]. Soil Biology and Biochemistry, 2016, 98: 74-84 DOI:10.1016/j.soilbio.2016.04.008 ( 0) |
| [16] |
吴叶礼, 闵雪, 赛硕, 等. 北方农牧交错带不同人工植被类型土壤碳氮磷及其化学计量特征——以武川县为例[J]. 土壤, 2024, 56(4): 873-878 DOI:10.13758/j.cnki.tr.2024.04.022 ( 0) |
| [17] |
Chen L Y, Liu L, Mao C, et al. Nitrogen availability regulates topsoil carbon dynamics after permafrost thaw by altering microbial metabolic efficiency[J]. Nature Communications, 2018, 9: 3951 DOI:10.1038/s41467-018-06232-y ( 0) |
| [18] |
Stone M M, Weiss M S, Goodale C L, et al. Temperature sensitivity of soil enzyme kinetics under N-fertilization in two temperate forests[J]. Global Change Biology, 2012, 18(3): 1173-1184 DOI:10.1111/j.1365-2486.2011.02545.x ( 0) |
| [19] |
Sinsabaugh R L, Shah J J F, Findlay S G, et al. Scaling microbial biomass, metabolism and resource supply[J]. Biogeochemistry, 2015, 122(2): 175-190 ( 0) |
| [20] |
Jing X, Chen X, Tang M, et al. Nitrogen deposition has minor effect on soil extracellular enzyme activities in six Chinese forests[J]. Science of the Total Environment, 2017, 607: 806-815 ( 0) |
| [21] |
Sardans J, Peñuelas J, Estiarte M. Warming and drought alter soil phosphatase activity and soil P availability in a Mediterranean shrubland[J]. Plant and Soil, 2006, 289(1): 227-238 ( 0) |
| [22] |
Sardans J, Peñuelas J, Estiarte M. Changes in soil enzymes related to C and N cycle and in soil C and N content under prolonged warming and drought in a Mediterranean shrubland[J]. Applied Soil Ecology, 2008, 39(2): 223-235 DOI:10.1016/j.apsoil.2007.12.011 ( 0) |
| [23] |
刘烨, 秦娟, 毕庆康, 等. 北亚热带大别山区不同马尾松林型土壤酶活性及其化学计量比[J]. 土壤通报, 2024, 55(5): 1416-1428 ( 0) |
| [24] |
Kamble P N, Bååth E. Induced N-limitation of bacterial growth in soil: Effect of carbon loading and N status in soil[J]. Soil Biology and Biochemistry, 2014, 74: 11-20 DOI:10.1016/j.soilbio.2014.02.015 ( 0) |
| [25] |
Zhou L H, Liu S S, Shen H H, et al. Soil extracellular enzyme activity and stoichiometry in China's forests[J]. Functional Ecology, 2020, 34(7): 1461-1471 DOI:10.1111/1365-2435.13555 ( 0) |
2. CATS Environmental Technology (Beijing) Co., Ltd., Beijing 100029, China;
3. Jiaotong Science and Technology Institute Group Co., Ltd., Beijing 100029, China;
4. Yunnan Key Laboratory for Plateau Mountain Ecology and Restoration of Degraded Environments & School of Ecology and Environmental Sciences/Yunnan Field Scientific Station for Restoration of Ecological Function in Central Yunnan of China, Yunnan University, Kunming 650091, China