 2026, Vol. 58


2. 江西省烟草科学研究所, 南昌 330025
烟草是我国重要的特种经济作物,其品质高低直接决定其工业可用性与经济效益。烟叶中烟碱、氮和钾等化学成分含量是评价其品质的核心指标。目前,我国烟区长期集约化种植模式下不合理施用化肥导致土壤酸化及保氮供氮能力时空匹配失衡等问题,尤其在多雨烟区(江西、湖南和福建等)季节性降雨和高湿环境显著加剧土壤氮素等养分淋失风险,既造成资源浪费,又破坏产区生态环境[1],还导致烟叶化学成分失衡及工业适配性降低等问题,严重制约优质烟叶的可持续生产。因此,如何通过绿色施肥技术同步实现土壤健康培育与烟叶品质协同提升,是该区域可持续烟草农业发展亟待解决的现实问题。生物质炭和生物有机肥作为良好的多功能土壤改良剂,因其独特的理化与生物学特性备受关注,两者协同配施技术为解决上述矛盾提供了新路径[2]。生物质炭因其高稳定性碳架、丰富孔隙结构和表面官能团,通过调节土壤pH、有效吸持土壤水分与氮素养分,以及调节微生物群落结构等途径改善土壤健康状况,尤其是根际微环境[3],进而促进烤烟生长。木霉(Trichoderma spp.)是具有促生、抗病和分解有机质等功能的典型有益微生物,利用其制备的生物有机肥不仅可通过分泌胞外酶促进氮素等养分活化[4],还可通过拓展菌丝网络形成“菌丝–根际”氮素捕获界面,增强根系对氮素等养分的空间捕获能力[5],还可分泌生长素类物质刺激烟株次生根发育,而且其合成的ACC脱氨酶(1-氨基环丙烷-1-羧酸脱氨酶)可缓解高湿度胁迫下烟株根系乙烯积累并促进氮素吸收相关功能基因活性上调[6],继而可能形成“微生物–根系–土壤”互作的氮高效利用模式。
然而,生物质炭对氮素的吸持作用可能在短期内降低其生物有效性[7],而木霉的定殖能力、活性和稳定性受土壤pH和有机质含量等环境因素制约[8]。本课题组前期研究表明,生物质炭配施木霉生物有机肥可有效促进烤烟植株干物质累积和根系生长及其氮素吸收利用,进而提高烤烟产量、均价与产值[9],但两者配施对多雨烟区“土壤–作物”体系中氮钾有效性和烟叶烟碱等化学成分含量的影响尚不明确。因此,探索生物质炭配施木霉生物有机肥对多雨烟区植烟土壤质量以及烟叶化学成分的影响,既可为多雨烟区土壤质量和烟叶品质双提升提供理论依据与技术支撑,也为绿色烟草农业中土壤健康管理与养分资源高效利用的技术创新提供重要实践参考。
1 材料与方法 1.1 供试材料大田试验在江西省瑞金市烟叶科技示范园(25°55′39″N,116°06′19″E)进行,该地区属亚热带湿润季风气候区。供试土壤为水稻土,基础性状为:pH 5.03、有机碳12.5 g/kg、全氮1.26 g/kg、铵态氮1.49 mg/kg、硝态氮22.2 mg/kg、有效磷16.5 mg/kg、速效钾103.4 mg/kg。供试烤烟品种为云烟87,种植模式为“一季晚稻–烤烟”轮作。
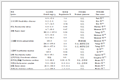
供试化肥分别为烟草专用复合肥(N-P2O5-K2O= 10-8-20)、硝酸钾(N-P2O5-K2O=13.5-0-44.5)、钙镁磷肥(P2O5 12%)、硫酸钾(K2O 50%)。供试生物质炭为花生壳在约400 ℃高温厌氧热解而成,由河南省生物炭工程技术研究中心提供;木霉生物有机肥由江苏淮安柴米河农业科技股份有限公司提供,是将烟渣和菇料等原料经高温好氧堆肥发酵而成的腐熟有机肥接种木霉菌(Trichoderma guizhouense)制备而成(功能木霉菌2.96×10⁸ CFU/g)。生物质炭和木霉生物有机肥的基础性状见表 1。
|
表 1 生物质炭和木霉生物有机肥的基础性状 |
试验为2因素3水平完全随机区组设计。设置2种不同外源有机投入品:生物质炭(B)和木霉生物有机肥(O),每种有机投入品又分别设置3种不同施用量:0 kg/hm2 (B1、O1)、750 kg/hm2 (低量,B2、O2)和1 500 kg/hm2 (高量,B3、O3),共9个处理。每处理3次重复,随机排列。每小区面积44.2 m2,按照行距120 cm、株距50 cm种植烤烟,单独排灌。
选择长势相对一致且健壮的7叶1心烟苗于3月初进行膜下移栽。当地烤烟常规施氮量为142.5 kg/hm2 (按纯N计),磷、钾养分按N∶P2O5∶K2O=1∶1∶3施用。所有处理的氮素施入量保持相等,化学磷、钾肥用量相同。由于本试验供试生物质炭的含氮量及矿化率均较低,故忽略这部分氮素养分。
所有处理的磷肥、生物质炭与木霉生物有机肥均作基肥施用;氮肥按基肥∶追肥=6∶4施用;钾肥按基肥∶追肥=4∶6施用。基肥在移栽前10~15 d开沟单行条施,并与沟内土壤混匀后覆土盖膜。追肥分别在移栽当天、移栽后10 d和结合培土时兑水浇施于距离烟株根系10 cm处(深约10 cm)。其他田间管理措施参照当地优质烟叶生产。
1.3 样品采集与测定分别在烤烟团棵期和成熟期采集土壤样品,去除石块和动植物残体等杂质后,分为两部分。一部分于4 ℃冰箱保存,用于测定土壤硝态氮、铵态氮和微生物生物量碳氮含量以及酶活性;另一部分自然风干、过筛后保存,用于测定土壤pH和养分含量指标。
土壤有机碳和全氮含量分别采用高温外加热K2Cr2O7–浓H2SO4氧化–容量法和半微量凯氏定氮法测定;采用2.0 mol/L KCl浸提–连续流动分析仪(AA3)法测定硝态氮和铵态氮含量,并计算无机氮含量;采用NH4OAc浸提–火焰光度法测定土壤速效钾含量[10]。分别采用苯酚–次氯酸钠比色法和酚二磺酸比色法测定土壤脲酶(URE)和硝酸还原酶(NaR)活性[11]。采用氯仿熏蒸–TOC仪法(Multi N/C 3100)测定土壤微生物生物量碳氮含量(MBC、MBN)[10]。土壤微生物熵分别为土壤微生物生物量碳与有机碳的比值(MBC/ SOC,qMBC)和微生物生物量氮与全氮的比值(MBN/ TN,qMBN)[12]。
土壤酶活性的几何平均数(Geometric mean,GMea)及其总体酶活性指数(Total enzyme activity index,Et)分别由公式(1)和(2)计算获得[13-14]:
| $ {\text{GMea}} = \sqrt {{\text{Ure}} \times {\text{NaR}}} $ | (1) |
| $ {\text{Et}} = \mathop \sum \limits_{i = 1}^n \frac{{{X_i}}}{{\bar X}} $ | (2) |
式中:Xi为土壤第i种酶活性测定值;
采用近红外光谱法测定烤后中部叶(C3F)和上部叶(B2F)的全氮、全钾和烟碱含量,计算氮/碱。
1.4 数据统计与分析数据统计分析采用SAS 10.0软件,处理平均数多重比较采用Duncan法(P < 0.05);使用CANOCO 5.0软件进行烟叶品质与土壤环境因子之间的冗余分析(Redundancy analysis,RDA),以判定影响烟叶品质的主要土壤环境因子;分别采用SigmaPlot 14.0和Excel软件绘制图表。
2 结果与分析 2.1 生物质炭配施木霉生物有机肥对土壤pH及碳氮含量和比值的影响施用生物质炭和木霉生物有机肥提高了植烟土壤pH以及有机质和全氮含量(表 2)。与B1相比,不同用量生物质炭(B2、B3)处理烤烟团棵期土壤pH、有机质和全氮含量以及C/N分别提高4.78%、5.38%,13.41%、19.11%,4.38%、5.11% 和8.65%、13.46%;同时,成熟期土壤全氮含量分别显著提升8.02%、6.17%。与O1相比,O3处理团棵期土壤有机质和全氮含量分别显著提升7.22% 和5.83%;成熟期土壤全氮含量显著提升5.45%。
|
|
表 2 土壤pH、碳氮含量和C/N的双因素方差分析与Duncan多重比较 |
施用生物质炭和木霉生物有机肥提高了植烟土壤氮钾养分有效性(表 3)。与B1相比,B2、B3处理团棵期与成熟期土壤硝态氮和铵态氮含量分别提高4.83%~49.84% 和14.52%~40.51%,进而无机氮和碱解氮含量分别提升5.49%~48.65% 和10.16%~ 35.39%,而且均以B2处理最高;同时,土壤速效钾含量提高3.73%~19.66%。与O1相比,烤烟团棵期O2处理土壤硝态氮和铵态氮含量分别显著提高13.74% 和7.30%,从而无机氮总量和碱解氮含量分别显著提高12.72% 和7.37%,同时,O3处理土壤速效钾含量显著提升5.23%;烤烟成熟期,O2、O3处理土壤碱解氮和速效钾含量分别显著提高11.86%、13.11% 和5.89%、10.06%。
|
|
表 3 土壤氮钾有效性的双因素方差分析与Duncan多重比较 |
由表 4可知,与B1相比,施用生物质炭处理(B2、B3)团棵期与成熟期MBC、MBN和qMBN分别显著提高3.73%~43.75%、19.23%~67.31% 和13.17%~ 60.73%;同时,B2、B3处理团棵期土壤qMBC分别显著提高26.87%、12.17%。与O1相比,O2、O3处理烤烟团棵期土壤MBC含量分别显著提升5.54%、7.41%,但O3处理团棵期土壤qMBN显著降低8.96%。
|
|
表 4 土壤微生物生物量和微生物熵的双因素方差分析及Duncan多重比较 |
由表 5可知,与B1相比,施用生物质炭处理(B2、B3)烤烟团棵期与成熟期土壤硝酸还原酶(NaR)活性、脲酶(URE)活性、总体酶活性指数(Et) 和酶活性几何平均数(GMea)分别显著提高38.80%~90.47%、6.96%~22.62%、23.14%~42.10% 和23.15%~43.10%。与O1相比,O2、O3处理团棵期土壤NaR活性分别显著降低8.08%、9.33%,而O3处理成熟期土壤GMea值显著提高3.91%。
|
|
表 5 土壤酶活性及其几何平均数和总体酶活指数的双因素方差分析与Duncan多重比较 |
施用生物质炭显著提高烤烟中部叶与上部叶氮钾与烟碱含量,而木霉生物有机肥则显著提高上部叶氮钾含量并显著降低其烟碱含量(表 6)。与B1相比,B2、B3处理中部及上部烟叶全氮、全钾和烟碱含量分别显著提高6.20%~11.54%、22.45%~35.19% 和10.46%~80.54%。与O1相比,O2、O3处理上部烟叶全氮和全钾含量分别提高7.41%、2.53% 和9.24%、25.77%,但其烟碱含量分别降低4.93%、10.34%。
|
|
表 6 烟叶化学成分的双因素方差分析及Duncan多重比较 |
由表 6还可知,与B1相比,B2、B3处理中部叶和上部叶的氮/碱分别显著降低26.46%、38.13% 和5.71%、13.49%。与O1相比,O2、O3处理中部叶的氮/碱分别显著降低9.84%、6.70%,但上部叶的氮/碱则分别提高3.09%、15.97%。
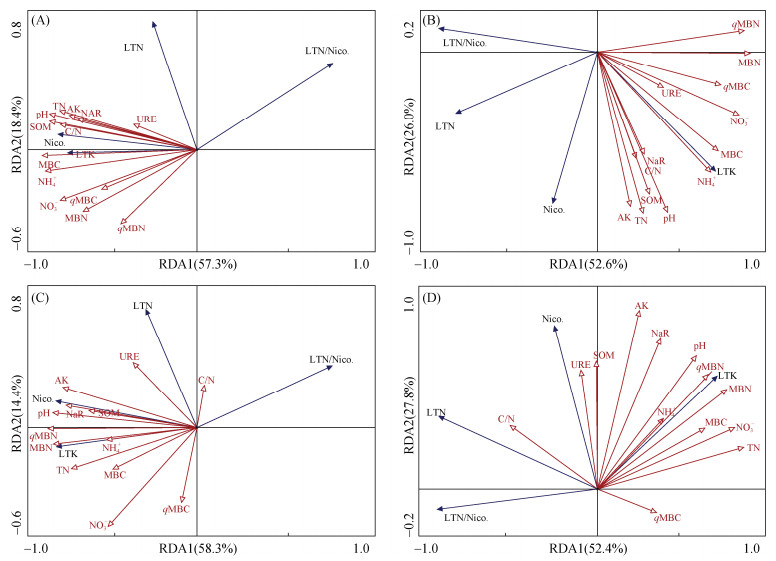
2.6 土壤环境因子对烟叶化学品质的冗余分析以中部和上部烟叶化学品质为响应变量,以土壤环境因子作为解释变量的RDA分析结果表明,烤烟团棵期中部叶和上部叶品质在两个排序轴上的累积解释率分别为75.7% 和78.6%(图 1A、1B)。土壤pH是影响中部叶化学品质的主导因子,其次为土壤硝态氮含量;而土壤MBN含量是影响上部叶化学品质的主导因子,其次为土壤pH。
|
(A:团棵期–中部叶;B:团棵期–上部叶;C:成熟期–中部叶;D:成熟期–上部叶。LTN:烟叶全氮含量;LTK:烟叶全钾含量;Nico.:烟碱含量。蓝色和红色箭头线段分别代表响应变量和解释变量,红色线段长度代表解释变量对响应变量的影响程度) 图 1 土壤环境因子对烟叶化学品质的冗余分析 |
同时,对于烤烟成熟期(图 1C、1D),中部叶和上部叶品质在两个排序轴上的累积解释率分别为72.7% 和80.2%。土壤MBN含量是影响中部叶化学品质的主导因子,其次为土壤速效钾和硝态氮含量;而土壤全氮含量是影响上部叶化学品质的主导因子,其次为土壤速效钾和MBN含量。
3 讨论 3.1 生物质炭配施木霉生物有机肥对土壤pH、养分及生物学特性的影响生物质炭与木霉生物有机肥配施可提高土壤pH和碳氮养分含量及其有效性(表 2)。本研究所用生物质炭和木霉生物有机肥偏碱性或中性(表 1),进入酸性土壤后可中和H+,从而提高植烟土壤pH。而RDA分析结果显示,团棵期土壤pH对烤烟中部叶和上部叶化学品质的影响贡献较大(图 1)。另外,生物质炭表面的羧基和酚羟基等含氧官能团增加负电荷位点,促进Ca2+与Mg2+等盐基离子的吸附和提高土壤阳离子交换量,但降低土壤交换性酸(尤其是Al3+)总量[15]。木霉菌分泌的吲哚乙酸等激素类物质可刺激根系生长,提高氨基酸等根际分泌物及土壤大团聚体含量及其稳定性[16],优化土壤微生物群落结构,促进氨化细菌与硝化细菌繁殖并增强其活性,从而加速有机氮矿化,生成NH3和HCO3–等碱性产物[17],从而提高土壤pH。
土壤氮钾养分含量及其生物有效性是影响烤烟生长发育及烟叶产量与品质最重要的土壤肥力因素之一。生物质炭和木霉生物有机肥配施可提高土壤氮钾养分含量及其有效性(表 3)。生物质炭芳香化程度高且不易被微生物快速分解,施用后显著提升烤烟生育前期土壤C/N(表 2),这可能有效缓解该时期因集中施氮而导致的土壤微生物“碳饥饿”现象,进而提高微生物对土壤氮素的利用率,即提高土壤微生物生物量氮(MBN)含量(表 4),从而可能降低氮素损失并提升其留存率。冗余分析(RDA)结果表明,团棵期土壤MBN含量是影响烤烟上部叶化学品质的主导因子(图 1)。另外,生物质炭可改善土壤团聚体和孔隙(尤其是毛管孔隙)等物理结构,为微生物生存提供“避难所”和良好的栖息环境[18],尤其可促进芽单胞菌门等有益菌增殖,并提高土壤微生物生物量碳氮含量、微生物熵、脲酶和硝酸还原酶等胞外酶活性及其几何平均数和总体酶活指数(表 4和表 5),进而可能促进微生物调节有机质转化和养分循环速率,而且其表面丰富的官能团可吸附NH4+、NO3–和可溶性有机碳,从而减少农田土壤碳氮养分的淋溶或气态损失[19-20]。此外,生物质炭表面疏水区形成的“微反应器”促进了微生物分泌胞外多糖等胶结物质,增强土壤团聚体稳定性及其对有机碳氮的物理保护作用[3, 21]。此外,持续施用有机肥可有效提高农田土壤肥力与功能[22]。而木霉菌分泌的草酸与柠檬酸等小分子有机酸以及几丁质酶、蛋白酶与β-葡聚糖酶等水解酶,不仅可为微生物提供能源物质,增加微生物生物量碳(MBC)含量,而且有利于降解有机氮和溶解矿物结合态钾[23],其代谢产物还可提高土壤脲酶等活性和刺激氨化细菌与固氮菌等增殖,加速含氮有机物矿化与生物固氮过程[24]。供试生物质炭和木霉生物有机肥自身含有数量可观的可溶性钾,能直接补充土壤钾库(表 1),而两者联合施用可实现其功能互补,最终协同提高土壤中氮钾含量及其有效性。RDA分析显示,烤烟成熟期土壤MBN、速效钾和硝态氮含量对烤烟中部叶和上部叶化学品质的贡献较大(图 1)。这说明施用生物质炭和木霉生物有机肥可能主要通过改善土壤pH和氮钾养分生物有效性等环境因子来改善烤烟烤后中部叶和上部叶化学品质。
3.2 生物质炭配施木霉生物有机肥对烤烟氮钾养分吸收与烟碱含量的影响施用生物质炭和木霉生物有机肥显著提高烤烟中部叶和上部叶中氮钾含量(表 6)。施用生物质炭和木霉生物有机肥均提高土壤有机质、氮钾含量及其有效性,从而有利于烤烟氮钾吸收与品质形成[25-26]。生物质炭改善了土壤物理环境,为根系延伸创造了有利条件,可重塑烤烟根系构型并显著增加烤烟单株侧根数量,直接扩大了根系与土壤的接触面积,增强其对氮钾的获取能力[27]。另外,生物质炭通过提高氮素有效性促进烤烟生育后期对氮钾等养分的吸收利用,这对烟叶品质形成至关重要[19]。本研究结果表明,烤烟成熟期土壤中碱解氮与微生物生物量碳氮含量对中部叶和上部叶中烟碱及全钾含量的贡献相对较大(图 1)。木霉菌作为重要的植物根际促生菌,可通过根系定殖、信号分子分泌和系统抗性诱导等途径改善烤烟对氮钾养分的吸收利用效率。研究表明,从木霉菌(NJAU4742)生长素合成突变株中可分离出具有显著促根发育活性的物质邻氨基苯甲酸,其能与植物生长素信号传导和运输网络互作并调节植物内皮层细胞壁重构,进而促进侧根形成、萌发及根系发育[28]。另外,木霉菌在根际定殖过程中具有高度特异性,而且其菌丝可沿作物根表延伸并形成菌根共生体系,不仅可扩展根系的养分吸收范围,增强其对土壤中氮钾等养分的空间获取能力,而且其产生的IAA等植物激素刺激根系根毛发育及质膜H+-ATP酶活性而增加其吸收表面积,显著提高烤烟根系体积与根冠比及其主动吸收利用氮钾等养分的能力[29],还可通过增强过氧化物酶和苯丙氨酸解氨酶等酶活性,抑制土传病害对根系的侵害,继而维持其较高的养分吸收效率[6]。
烤烟烟碱含量是评价烟叶品质的关键指标。目前,江西等多雨烟区烤烟正面临上部烟叶烟碱含量偏高、中部烟叶烟碱含量偏低的困境,已成为提高该区域烟叶品质及其工业可用性的瓶颈问题。本试验条件下,施用750 kg/hm2生物质炭显著提高烤烟中部叶烟碱含量,而不同用量木霉生物有机肥则降低上部叶烟碱含量(表 6)。可见,施用适量生物质炭和木霉生物有机肥有利于调控烟叶烟碱含量。研究表明,土壤中充足的氮、钾等有效养分是烤烟植株正常生长发育的物质基础和优质适产的重要限制因素。氮素对烟碱的生物合成至关重要(烟碱分子中氮含量达17.3%),是调控烟碱含量的关键因子,而且烟碱合成主要发生在烤烟根系(尤其是根尖)中,并与土壤氮素供应状况密切相关。另外,烤烟对氮素的吸收累积主要集中在生育前中期(移栽后60 d左右),烟碱合成与累积则主要发生在打顶之后,且主要利用了烤烟前中期吸收的氮素[30]。本研究结果显示,烤烟团棵期土壤pH及全氮和无机氮(NO3–-N与NH4+-N)含量对中、上部叶烟碱含量的贡献较大(图 1)。生物质炭不仅可通过吸附作用降低前期氮素养分损失,而且这些被吸附的养分随生育进程在根系分泌物作用下逐渐被释放,再加上木霉菌可促进有机氮矿化释放,共同形成相对稳定的有效氮供应,促进烤烟生育后期氮素吸收利用,使烟碱合成趋于合理水平,从而避免不同部位烟叶中烟碱含量失调。
钾离子(K+)通过调节细胞渗透势和离子平衡间接影响烤烟烟碱代谢。施用生物质炭显著提高烟叶中钾含量(表 6),不仅可能增加液泡膜上K+通道蛋白的开放度,促进烟碱从细胞质中转入液泡被储存,减少细胞质中游离烟碱对代谢的反馈抑制,还可能调节叶片气孔开闭,促进光合碳的固定,并为烟碱合成提供精氨酸等碳骨架[31],进而有利于烟碱合成与累积。然而,木霉生物有机肥显著提高了烤烟上部叶中的钾含量,却降低其烟碱含量(表 6)。这可能是由于施用木霉生物有机肥促进烤烟植株干物质累积,产生稀释效应所致。其次,烟叶中高含钾量可提高蔗糖转化酶(INV)活性及其与硝酸还原酶(NaR)的比值,促进上部叶在成熟过程中适时由氮代谢转向碳代谢,还可降低烤烟打顶后根系中氮甲基腐胺转移酶(PMT)等关键烟碱合成酶的活性,进而降低上部叶烟碱含量。
4 结论1) 施用生物质炭和木霉生物有机肥提高了土壤pH及有机质、有效氮钾和微生物生物量碳氮含量及其微生物熵,同时提高了土壤硝酸还原酶和脲酶活性及其酶活几何平均数和总体酶活性指数。
2) 施用生物质炭显著提高烤烟中上部叶氮、钾与烟碱含量,却显著降低其氮/碱;而施用木霉生物有机肥显著提高上部叶氮、钾含量和氮/碱,但降低其烟碱含量。
3) 烤烟团棵期土壤pH和成熟期土壤微生物生物量氮含量是影响中部烟叶品质的主导因子,而团棵期土壤微生物生物量氮和成熟期土壤全氮含量则是影响上部烟叶品质的主导因子。
4) 生物质炭配施木霉生物有机肥可有效改善土壤pH和氮钾养分有效性等环境因子,进而优化烤烟中部与上部烟叶氮钾与烟碱含量及其氮/碱等化学品质,提升其工业可用性。
| [1] |
Miao P, Zhu X Q, Zhang S F, et al. Long-term high nitrogen surplus in intensive apple-planting regions results in huge legacy nitrogen in the vadose zone: Potential or real risk to the groundwater[J]. Agriculture, Ecosystems & Environment, 2023, 357: 108682 (  0) |
| [2] |
Gu Y Y, Liang X Y, Zhang H Y, et al. Effect of biochar and bioorganic fertilizer on the microbial diversity in the rhizosphere soil of Sesbania cannabina in saline-alkaline soil[J]. Frontiers in Microbiology, 2023, 14: 1190716 DOI:10.3389/fmicb.2023.1190716 ( 0) |
| [3] |
Ibrahim M M, Chang Z F, Li Z M, et al. Biochar rate-dependent regulation of extended nitrogen supply by modifying stable aggregates-N and microbial responses[J]. Carbon Research, 2023, 2(1): 22 DOI:10.1007/s44246-023-00056-2 ( 0) |
| [4] |
Ding T T, Feng W, Bai M T, et al. Arbuscular mycorrhizal fungi and Trichoderma longibrachiatum alter the transcriptome of Vicia villosa in response to infection by the fungal pathogen Stemphylium vesicarium[J]. BMC Microbiology, 2025, 25(1): 86 DOI:10.1186/s12866-025-03778-y ( 0) |
| [5] |
梅惠敏, 阮亚男, 张家欣, 等. 木霉对盐渍逆境下枸杞根系氮素吸收和氮素利用效率的影响[J]. 应用生态学报, 2022, 33(9): 2539-2546 ( 0) |
| [6] |
Li Y C, Shao J H, Fu Y S, et al. The volatile cedrene from Trichoderma guizhouense modulates Arabidopsis root development through auxin transport and signalling[J]. Plant, Cell & Environment, 2022, 45(3): 969-984 ( 0) |
| [7] |
Zhang S W, Gan Y T, Xu B L. Mechanisms of the IAA and ACC-deaminase producing strain of Trichoderma longibrachiatum T6 in enhancing wheat seedling tolerance to NaCl stress[J]. BMC Plant Biology, 2019, 19(1): 22 DOI:10.1186/s12870-018-1618-5 ( 0) |
| [8] |
吴蔚君, 徐云连, 邢素林, 等. 生物炭对土壤氮磷转化和流失的影响[J]. 农学学报, 2018, 8(9): 20-26 ( 0) |
| [9] |
谢志坚, 张海伟, 卢叶, 等. 生物炭与木霉生物有机肥对红壤稻田烤烟氮肥利用率与产量产值的影响[J]. 江西农业大学学报, 2024, 46(5): 1151-1162 ( 0) |
| [10] |
鲍士旦
. 土壤农化分析(3版)[M].
中国农业出版社, 北京, 2000
( 0) |
| [11] |
关松荫
. 土壤酶及其研究法[M].
中国农业出版社, 北京, 1986
( 0) |
| [12] |
Gao D C, Shi W J, Wang H M, et al. Contrasting global patterns of soil microbial quotients of carbon, nitrogen, and phosphorus in terrestrial ecosystems[J]. Catena, 2024, 243: 108145 DOI:10.1016/j.catena.2024.108145 ( 0) |
| [13] |
García-Ruiz R, Ochoa V, Hinojosa M B, et al. Suitability of enzyme activities for the monitoring of soil quality improvement in organic agricultural systems[J]. Soil Biology and Biochemistry, 2008, 40(9): 2137-2145 DOI:10.1016/j.soilbio.2008.03.023 ( 0) |
| [14] |
和文祥, 谭向平, 王旭东, 等. 土壤总体酶活性指标的初步研究[J]. 土壤学报, 2010, 47(6): 1232-1236 ( 0) |
| [15] |
Liu S W, Cen B T, Yu Z N, et al. The key role of biochar in amending acidic soil: Reducing soil acidity and improving soil acid buffering capacity[J]. Biochar, 2025, 7(1): 52 DOI:10.1007/s42773-025-00432-8 ( 0) |
| [16] |
Zhu L X, Cao M M, Sang C C, et al. Trichoderma bio-fertilizer decreased C mineralization in aggregates on the southern North China Plain[J]. Agriculture, 2022, 12(7): 1-14 ( 0) |
| [17] |
Fu J, Xiao Y, Wang Y F, et al. Trichoderma affects the physiochemical characteristics and bacterial community composition of saline–alkaline maize rhizosphere soils in the cold-region of Heilongjiang Province[J]. Plant and Soil, 2019, 436(1): 211-227 ( 0) |
| [18] |
张高润, 刘弟, 吴汉星, 等. 稻壳生物炭协同绿肥翻压对烤烟根际土壤及烟叶生长的影响[J]. 中国土壤与肥料, 2025(2): 93-99 ( 0) |
| [19] |
Azeem M, Sun T R, Jeyasundar P G S A, et al. Biochar-derived dissolved organic matter (BDOM) and its influence on soil microbial community composition, function, and activity: A review[J]. Critical Reviews in Environmental Science and Technology, 2023, 53(21): 1912-1934 DOI:10.1080/10643389.2023.2190333 ( 0) |
| [20] |
Zhang Y Y, Yan C, Wang T, et al. Biochar strategy for long-term N2O emission reduction: Insights into soil physical structure and microbial interaction[J]. Soil Biology and Biochemistry, 2025, 202: 109685 DOI:10.1016/j.soilbio.2024.109685 ( 0) |
| [21] |
Sharma P, Abrol V, Nazir J, et al. Optimizing soil properties, water use efficiency, and crop yield through biochar and organic manure integration in organic soil[J]. Journal of Environmental Management, 2025, 373: 123673 DOI:10.1016/j.jenvman.2024.123673 ( 0) |
| [22] |
王冰, 张宇辰, 王昕悦, 等. 持续低量有机肥与化肥配施对绿洲农田土壤肥力和多功能性的影响[J]. 土壤学报, 2025, 62(4): 1059-1071 ( 0) |
| [23] |
Sood M, Kapoor D, Kumar V, et al. Trichoderma: The "secrets" of a multitalented biocontrol agent[J]. Plants, 2020, 9(6): 762 DOI:10.3390/plants9060762 ( 0) |
| [24] |
Liu Q M, Meng X H, Li T, et al. The growth promotion of peppers (Capsicum annuum L.) by Trichoderma guizhouense NJAU4742-based biological organic fertilizer: Possible role of increasing nutrient availabilities[J]. Microorganisms, 2020, 8(9): 1296 DOI:10.3390/microorganisms8091296 ( 0) |
| [25] |
王彤. 植烟土壤有机质含量与烤烟质量关系研究[J]. 土壤, 2025, 57(4): 792-798 DOI:10.13758/j.cnki.tr.2025.04.009 ( 0) |
| [26] |
徐勇贤, 梁强, 钱玭, 等. 抚仙湖流域典型烟区土壤中养分失衡对烟叶品质的影响[J]. 土壤, 2025, 57(4): 785-791 DOI:10.13758/j.cnki.tr.2025.04.008 ( 0) |
| [27] |
李彩斌, 张久权, 何轶. 不同类型土壤上施用生物炭对烤烟氮钾养分积累的影响[J]. 农学学报, 2023, 13(9): 54-62 ( 0) |
| [28] |
Chen Y, Fu Y S, Xia Y W, et al. Trichoderma-secreted anthranilic acid promotes lateral root development via auxin signaling and RBOHF-induced endodermal cell wall remodeling[J]. Cell Reports, 2024, 43(4): 114030 DOI:10.1016/j.celrep.2024.114030 ( 0) |
| [29] |
He A L, Liu J, Wang X H, et al. Soil application of Trichoderma asperellum GDFS1009 granules promotes growth and resistance to Fusarium graminearum in maize[J]. Journal of Integrative Agriculture, 2019, 18(3): 599-606 DOI:10.1016/S2095-3119(18)62089-1 ( 0) |
| [30] |
Xie Z J, He Y Q, Xu C X, et al. Effects of transplanting time on 15-nitrogen utilization and industrial quality of flue-cured tobacco[J]. Revista Brasileira de Ciência Do Solo, 2017, 41: e0160537 ( 0) |
| [31] |
Hasanuzzaman M, Bhuyan M H M B, Nahar K, et al. Potassium: A vital regulator of plant responses and tolerance to abiotic stresses[J]. Agronomy, 2018, 8(3): 31 DOI:10.3390/agronomy8030031 ( 0) |
2. Tobacco Science Institute of Jiangxi Province, Nanchang 330025, China