 2026, Vol. 58


2. 山东省农业科学院畜牧兽医研究所, 济南 250100;
3. 山东建筑大学资源与环境创新研究院, 济南 250101
根据农业农村部统计数字,目前我国现代设施种植面积已超4 000万亩(15亩=1 hm2)[1]。然而,长期高强度利用导致的连作障碍已成为制约其可持续发展的瓶颈[2],其核心在于土壤生物多样性的丧失与致病菌的定向累积。闷棚是设施蔬菜连作障碍治理中常用的综合措施之一[3]。传统的化学闷棚(如使用威百亩)虽见效快,但易导致“误杀”有益菌及土壤板结。相比之下,基于添加外源碳源驱动的生物闷棚(Biological soil disinfestation,BSD)技术,国际上也称之为土壤厌氧消毒(Anaerobic soil disinfection,ASD)或强还原土壤灭菌(Reductive soil disinfestation,RSD),通过添加外源有机碳源、灌水覆膜及高温诱导,驱动土壤微生物进行剧烈的原位厌氧发酵,该过程产生的挥发性有机酸(VFAs)和氨气能定向清除病原微生物,同时实现受损微生物区系的重塑[4-5]。
沼液作为厌氧消化的副产物,已有研究表明,沼液或沼液配施处理可改善土壤养分状况并影响微生物群落结构[6-7]。其组分特性与BSD的技术需求高度契合。首先,沼液富含不稳定有机碳(DOC),能为厌氧发酵提供充足底物;其次,其携带的高浓度氨氮是杀灭病原菌的强力化学因子;同时,沼液本身含有的厌氧微生物群落可作为接种剂,直接加速土壤原位发酵进程[8]。研究表明,沼液相关组分可影响植物磷吸收和土壤磷酸酶活性[9]。然而,在BSD过程中,有机质的降解受外源沼液与土壤内源碳库的共同驱动。为明确沼液的独立贡献,本研究引入单淹水对照,以扣除淹水环境的基础生化影响,进而明晰沼液中养分与菌群对土壤重塑的贡献。目前研究多聚焦于沼液的直接肥效作用[6, 10],而对沼液驱动的原位厌氧发酵对土壤理化性质和微生物的影响尚不明确。因此,本研究模拟设施大棚闷棚环境(土壤温度37℃±1℃、密闭控氧),探究不同沼液添加强度下土壤理化性质、微生物群落演替及功能代谢谱的动态响应。研究旨在量化沼液在BSD中的适宜施用强度,阐明原位厌氧发酵的改良效应,为设施土壤修复与沼液资源化利用提供科学依据。
1 材料与方法 1.1 供试材料供试土壤采集于山东省临沂市沂水县马站镇徐家店子村青杨家庭农场种植大棚(36°00′41.98″N,118°44′11.74″E),大棚以番茄种植为主,连续多年重茬种植,取样前为2024年种植的第二茬番茄果实进入转色期。土壤样品采集自0~20 cm耕作层,多点取样混合均匀后,置于阴凉通风处自然风干,并人工剔除可见植物残体与根系,随后过5 mm筛备用。土壤基本理化性质:pH 5.26,土壤容重1.29 g/cm3,含水率17.7%,有机质含量23.36 g/kg,全氮含量4.55 g/kg,有效磷和速效钾含量分别为145.4 mg/kg和367.33 mg/kg。沼液在完全混合式厌氧发酵工艺条件下产生,水力停留时间为35~38 d,发酵温度为37~ 38.5 ℃。沼液基本理化性质:全氮含量3.2 g/kg,全磷和全钾含量分别为4.8 g/kg和2.9 g/kg,pH 8.1,灰分含量达657 g/kg。试验用袋规格为20 cm × 27 cm厌氧袋。
1.2 试验设计试验于2024年12月27日至2025年1月26日在山东省农业科学院试验基地完成。本研究基于BSD原理,将沼液作为外源碳源与微生物接种物诱导土壤原位厌氧发酵。试验设5个处理,每处理3次重复。为确保水分一致,参考BSD饱和灌水要求,各处理(除空白对照外)均添加250 mL液体使土壤达到饱和持水量。具体设置如下:空白对照(CK),1.7 kg原始土壤,不进行发酵处理,作为改良效应评价的基准;单淹水对照(WCK),1.7 kg原始土壤添加250 mL无菌去离子水,模拟常规淹水闷棚,旨在明确利用土壤自身碳源进行BSD过程的效应;沼液发酵组(LG、MG、HG,分别代表低量、中量、高量沼液添加量),先后添加水和沼液(总体积250 mL),各组沼液添加量分别为83、167和250 mL,旨在探究沼液输入的剂量效应。试验采用密封厌氧袋模拟设施大棚“闷棚”操作。将液体与1.7 kg土壤充分混匀后装入专用厌氧袋,排除空气并密封。样本置于生化培养箱中,在37 ℃恒温条件下进行15 d原位厌氧发酵。
1.3 样品采集与处理试验开始前,在田间大棚试验样地内按五点采样法采集土壤样品,现场混合均匀后获得原土。原土带回实验室后,剔除石砾、植物残体等杂物,过2 mm筛并充分混匀。混匀后的土壤一部分用于测定初始土壤理化性质及微生物群落结构,剩余部分进一步拣除可见细根及杂物后作为供试土壤进行室内模拟原位厌氧发酵试验。15 d厌氧发酵结束后采集土壤样品,将土样分为两部分,一部分土样在实验室经自然风干后过筛混匀,用于测定土壤理化性质;另一部分新鲜土样置于–80 ℃的冰箱中恒温保存,用于检测土壤微生物群落结构。
1.4 样品测定 1.4.1 土壤理化性质测定土壤容重与孔隙度通过环刀法进行测定;土壤含水量采用烘干法测定;土壤pH采用pH仪测定(水土质量比为2.5∶1);土壤有效磷采用0.5 mol/L NaHCO3浸提–钼锑抗比色法测定;速效钾采用乙酸铵浸提–火焰光度法测定;有机质采用重铬酸钾氧化–外加热法测定;全氮采用浓硫酸消煮–半自动凯氏定氮仪滴定法测定[11]。
1.4.2 土壤微生物宏基因组测序将保存于–80 ℃冰箱中的土壤样品送至上海派森诺生物科技股份有限公司,提取微生物DNA,构建宏基因组文库。依托Illumina novaseq X plus高通量测序平台进行2×150 bp模式测序。运用fastp(v 0.23.2)软件对测序下机的原始数据进行筛查和过滤后,使用MEGAHIT软件进行拼接。完成拼接组装后,利用Prodigal软件(https://github.com/hyattpd/Prodigal)识别其中的开放阅读框(Open reading frame,ORF),并预测其中的编码区域,从而获得对应的基因序列文件。利用MMseqs2的cluster模块对基因序列集按相似度95% 和覆盖度90% 进行聚类去冗余,获得非冗余基因集。利用Strobealign软件将高质量reads映射回非冗余基因集,并使用featureCounts统计各基因丰度。利用Kraken 2软件将高质量reads与GTDB数据库进行比对,获取各分类能级的微生物物种组成信息。同时,利用MMseqs 2对非冗余蛋白集分别与KEGG、NCyc、PCyc数据库进行比对注释,用于后续功能分析。
1.5 数据统计与分析使用Excel 2019软件整理数据,SPSS软件进行统计分析,土壤理化数据采用Duncan新复极差法进行多重比较分析(P < 0.05)。基于上述同一套非冗余基因丰度矩阵进行后续生物信息学统计分析。对物种丰度表进行序列抽平处理后,利用R 4.3.2软件的vegan包计算Chao1指数和Shannon指数(α多样性)。采用Kruskal-Wallis非参数检验进行多组间比较,事后两两比较使用Dunn检验(P < 0.05)。基于Bray-Curtis距离,采用R 4.3.2和QIIME软件进行微生物群落结构主坐标分析(PCoA),同时用Adonis分析进行组间差异检验。LEfSe分析通过派森诺生物云平台(https://www.genescloud.cn)完成。多尺度相对丰度图通过Origin 2024绘制。利用R包circlize构建circos图,用于展示各样本间的功能组成关系。
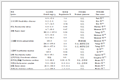
2 结果与分析 2.1 土壤理化性质不同添加量沼液厌氧发酵处理对土壤理化性质的影响如表 1所示,沼液厌氧发酵处理显著改善了土壤理化性质。WCK处理虽提升了土壤pH,但沼液发酵处理(LG、MG、HG)土壤pH较WCK进一步提升1.4%~9.3%,且随沼液用量增加呈阶梯式上升。在速效养分方面,WCK处理土壤碱解氮、有效磷及速效钾含量较CK均显著下降;而沼液发酵处理不仅完全弥补了淹水损失,且进一步显著提高土壤速效养分含量,如有效磷含量较CK显著提高9.81%~10.73%,碱解氮则在MG、HG处理增幅显著。各处理土壤有机质与全氮含量较CK均呈显著下降趋势,沼液发酵处理有机质含量低于WCK处理,但不同添加量沼液发酵处理间无显著差异。
|
表 1 沼液处理对土壤理化性质的影响 Table 1 Soil physicochemical properties under different biogas slurry application rates |
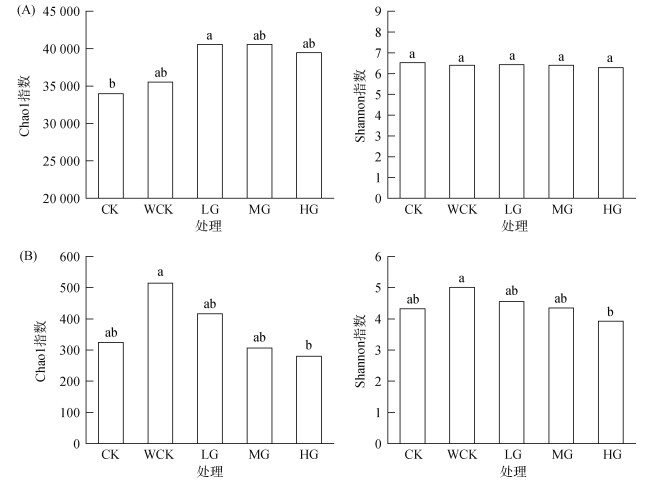
土壤微生物多样性是衡量土壤生态系统稳定性及修复效果的核心指标。为探究不同沼液施用量对设施大棚土壤中微生物群落多样性的作用,本研究分析了土壤细菌(图 1A)和真菌(图 1B)群落α多样性。结果显示,在不同处理下土壤细菌和真菌的多样性指数(Chao1和Shannon)表现出截然不同的演替趋势。与CK相比,LG处理显著提高了细菌Chao1指数(P < 0.05),并且处理间表现为LG > MG > HG > WCK > CK。各处理间细菌群落Shannon指数未表现出显著差异。与细菌群落趋势不同,WCK处理较CK显著提高了真菌的Chao1和Shannon指数。随着沼液添加量的增加,真菌多样性呈现下降趋势,其中,HG处理的Chao1和Shannon指数均显著低于WCK处理(P < 0.05)。
|
(A. 细菌;B. 真菌。图柱上方小写字母不同表示处理间差异显著(Kruskal-Wallis检验,Dunn事后检验,P < 0.05)) 图 1 土壤微生物群落α多样性 Fig. 1 Alpha diversity of soil microbial communities |
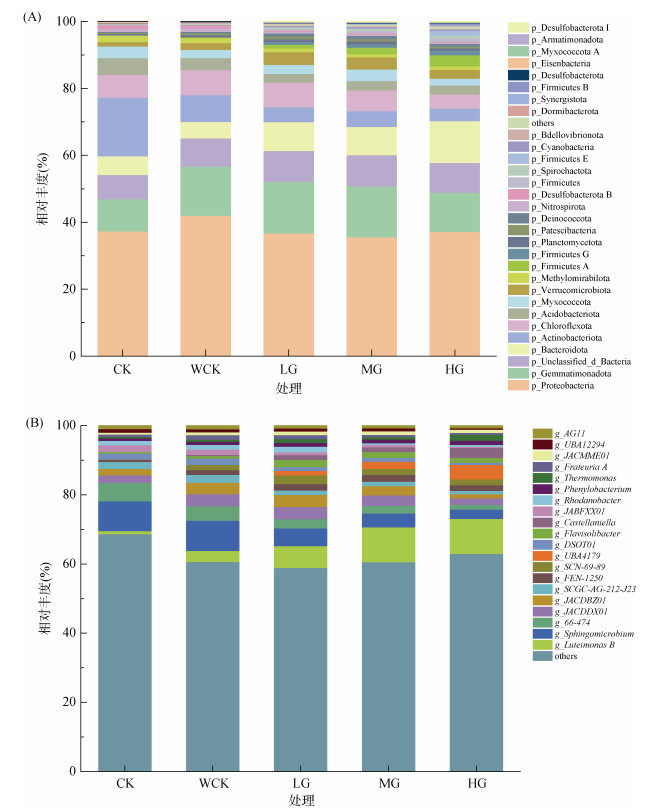
各处理土壤细菌门水平相对丰度如图 2A所示,主要优势菌门包括变形菌门(Proteobacteria)、放线菌门(Actinobacteriota)、芽单胞菌门(Gemmatimonadota)、拟杆菌门(Bacteroidota)和绿弯菌门(Chloroflexota)等,在CK中占比分别为37.32%、17.52%、9.69%、5.58%、6.78%。与CK和WCK相比,沼液发酵处理中放线菌门受到抑制,而拟杆菌门、厚壁菌门(Firmicutes A)得到富集,且各沼液发酵处理间无显著差异。与CK相比,WCK处理显著增加了变形菌门的相对丰度(P < 0.05)。细菌属水平上(图 2B),主要优势菌属包括藤黄单胞菌属(Luteimonas B)、鞘脂微菌属(Sphingomicrobium)、66-474属、JACDDX01属和JACDBZ01属等。与CK相比,MG和HG处理显著提升了藤黄单胞菌属的相对丰度,鞘脂微菌属在WCK处理中得到富集,且显著高于HG处理。
|
图 2 门(A)和属(B)水平上土壤细菌群落组成的相对丰度 Fig. 2 Relative abundance of soil bacterial community compositions at phylum (A) and genus (B) levels |
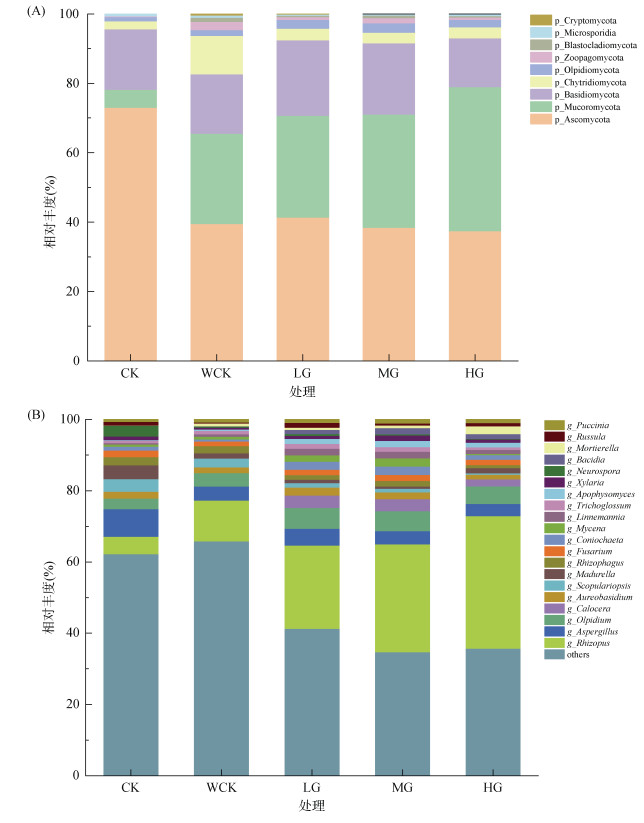
各处理土壤真菌门水平相对丰度如图 3A所示。与CK相比,WCK和沼液发酵处理组子囊菌门(Ascomycota)的相对丰度显著降低,降幅超过30%;毛霉菌门(Mucoromycota)相对丰度则显著提高,且随沼液添加量增加而持续升高,HG处理相对丰度达41.44%,成为绝对优势菌门;担子菌门(Basidiomycota)相对丰度在LG、MG处理提高,但HG处理又降至14.05%,低于CK。真菌属水平上(图 3B),主要优势菌属包括根霉属(Rhizopus)、曲霉属(Aspergillus)、油壶菌属(Olpidium)等。与CK相比,沼液发酵处理中根霉属得到富集,而曲霉属、镰刀菌属(Fusarium)丰度则被抑制。
|
图 3 门(A) 和属(B) 水平上土壤真菌群落组成的相对丰度 Fig. 3 Relative abundance of soil fungal community compositions at phylum (A) and genus (B) levels |
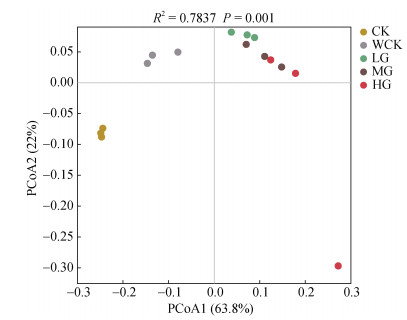
基于Bray-Curtis距离的PCoA分析(图 4)评估了不同处理组间微生物群落的相似性。结果显示,沼液发酵处理(LG、MG、HG)与CK和WCK明显分离;并且随着沼液用量的增加,MG处理与LG处理样本聚集较近,而HG处理组则逐渐远离。
|
图 4 土壤微生物群落结构差异 Fig. 4 Differences of soil microbial community structures |
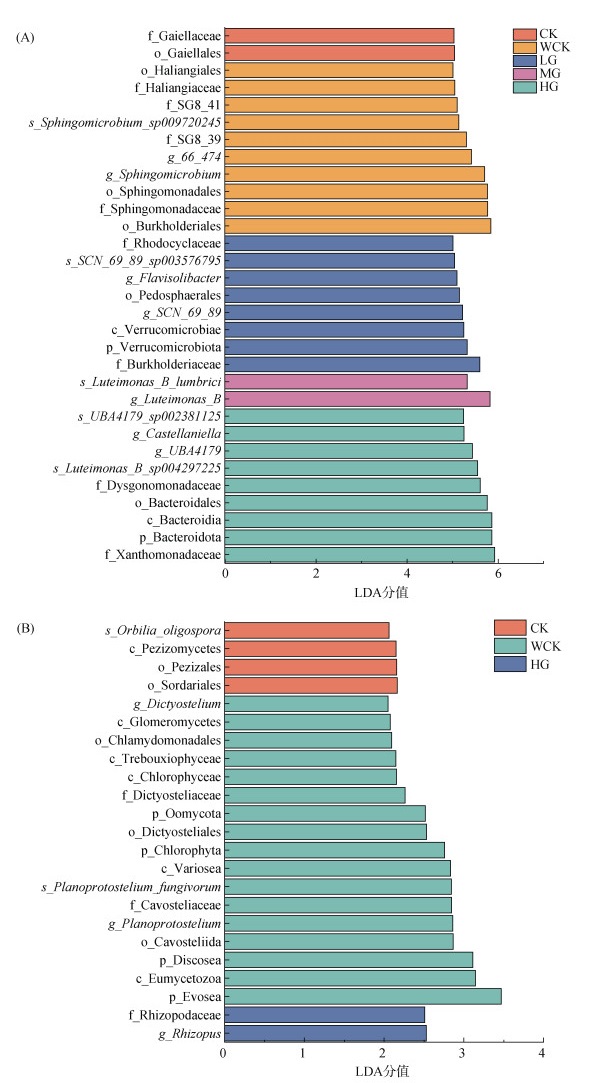
为进一步探究不同沼液添加量下土壤原位厌氧发酵处理土壤微生物群落的变化,利用LEfSe分析(P < 0.05)判别不同处理土壤中差异显著的细菌(LDA > 5,图 5A)和真核生物(LDA > 2,图 5B)群落。进化分支显示了不同处理细菌和真核生物分别存在31和23个显著差异物种。细菌指示物种包括6目9科7属,CK处理已知差异细菌为放线菌门下的盖勒氏菌目(Gaiellales)和盖勒菌科(Gaiellaceae);WCK处理富集了伯克氏菌目(Burkholderiales)、鞘氨醇单胞菌科(Sphingomonadaceae)及鞘脂单胞菌目(Sphingomonadales)等;随着沼液添加量的增加,发酵处理组细菌群落向厌氧功能菌群定向漂移,LG处理指示细菌为伯克霍尔德氏菌科(Burkholderiaceae)、疣微菌门(Verrucomicrobiota)及其所属的疣微菌纲(Verrucomicrobiae)等,MG处理已知指示细菌为黄色单胞菌属B型(Luteimonas-B)等,HG处理指示细菌则主要包括黄单胞菌科(Xanthomonadaceae)、拟杆菌门(Bacteroidota)和拟杆菌纲(Bacteroidia)等。真核生物差异物种包括6纲5目3科3属,CK处理已知指示真核生物为盘菌目(Pezizales)、粪壳菌目(Sordariales)等;WCK处理已知指示真核生物为变形虫界(Evosea,Discosea)、黏菌(Eumycetozoa)、绿藻门(Chlorophyta)以及卵菌门(Oomycota)等;HG处理已知指示真核生物为根霉属(Rhizopus)及其所属的根霉科(Rhizopodaceae)。
|
图 5 土壤细菌(A) 和真菌(B) 的LEfSe差异分析 Fig. 5 LEfSe difference analysis of soil bacteria (A) and fungi (B) |
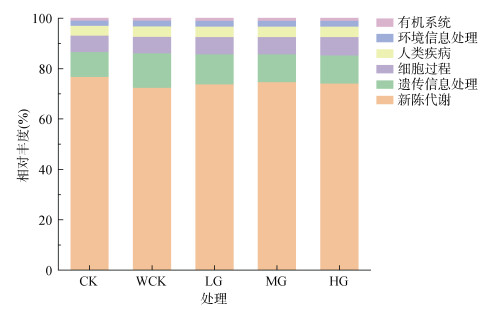
根据gene的蛋白序列和KEGG数据库比对与功能注释的结果,L1水平的代谢途径相对丰度分布如图 6所示,相对丰度从高到低依次为:新陈代谢(Metabolism)、遗传信息处理(Genetic information processing)、细胞过程(Cellular processes)、人类疾病(Human diseases)、环境信息处理(Environmental information processing)和有机系统(Organismal systems)。
|
图 6 主要微生物代谢途径在KEGG L1水平上的分布 Fig. 6 Distributions of major metabolic pathways of microbial communities at KEGG L1 level |
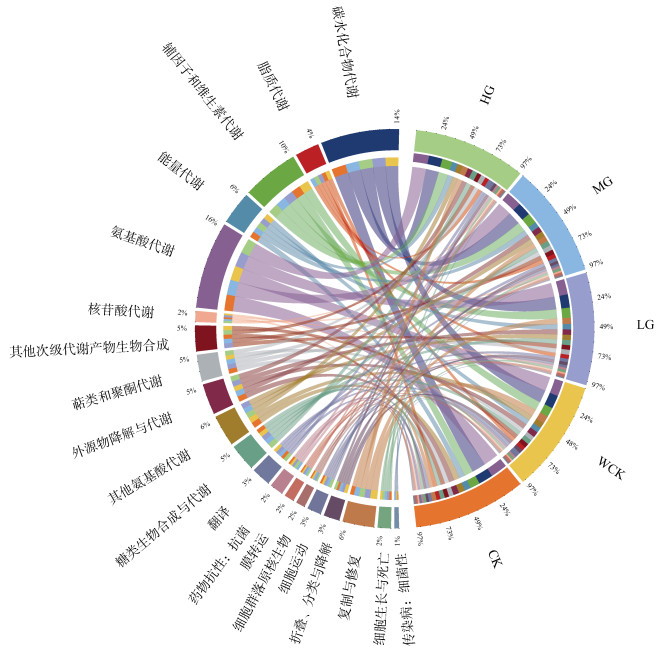
在明确了L1水平上代谢功能(Metabolism)占绝对主导地位的基础上,为了进一步剖析各处理组对不同细分代谢通路的贡献度及功能重叠情况,本研究利用Circos图在Level 2水平上对微生物功能谱进行了可视化解析(图 7)。结果显示,碳水化合物代谢、氨基酸代谢和能量代谢是各处理共同贡献的主要功能板块。MG和HG处理辅因子和维生素代谢相对丰度高于CK,而WCK、LG、MG、HG处理碳水化合物代谢和氨基酸代谢相对丰度低于CK。
|
图 7 各处理功能Cricos图分析 Fig. 7 Analysis of function Cricos diagram across treatments |
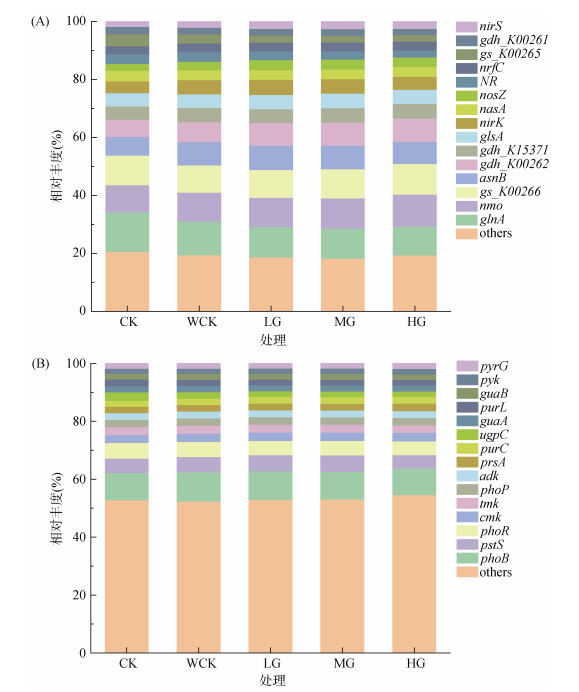
处于核心地位的能量代谢直接关系到土壤养分的转化效率。由于二级水平下的能量代谢涵盖了固氮、硝化、反硝化以及磷酸盐增溶等关键生化过程,本研究进一步针对发酵过程中氮、磷循环相关核心功能基因的相对丰度演替进行分析。氮循环过程主要由以下基因驱动:氨同化基因(glnA、gs_K00265、gs_K00266和gdh_K00261等)、有机氮矿化基因(nmo和glsA等)、同化硝酸盐还原基因(nasA等)和异化硝酸盐还原基因(nrfC等)(图 8A)。相较于CK和WCK,沼液发酵处理反硝化基因nirK和nosZ得到富集,尤其是LG和MG处理;相反,氨同化基因glnA、gdh_K00261和同化型硝酸盐还原基因nasA的相对丰度表现出下降趋势。同时,沼液发酵处理提高了gdh_K00262和gdh_K15371相对丰度。磷循环相关基因以调节基因(phoR、phoB和phoP)、核苷酸代谢基因(pyrG、guaB、purL、guaA和purC等)和转运基因(ugpC)为主(图 8B)。相较于CK,沼液发酵处理增加了能量代谢基因pyk、核苷酸代谢基因purC和RNA合成基因cmk的相对丰度,降低了核苷酸代谢基因purL、DNA合成基因tmk和转运基因ugpC的相对丰度。
|
(A. 氮循环基因;B. 磷循环基因) 图 8 功能基因相对丰度 Fig. 8 Relative abundance of functional genes |
沼液通常呈碱性,有效养分含量较高,在调节土壤酸碱度和提升土壤肥力等方面作用显著。土壤pH作为关键化学属性,可调控养分形态并影响生物有效性。本研究中,沼液厌氧发酵处理显著提升土壤pH,这与多数沼液直接施用或灌溉研究的结果一致[12-13],但本研究结果与王晶等[14]在芹菜土壤尾菜沼液沟灌试验中观察到的pH变化趋势不完全一致。原因可能与供试土壤类型、沼液来源、施用方式及氧化还原环境不同有关。其采用常规沟灌方式,土壤氧化还原状态多以好氧与短期缺氧交替为特征。而本研究采用密闭厌氧发酵处理,在持续缺氧或厌氧条件下,硝化过程可能受到抑制,同时沼液自身偏碱性的输入效应较为明显,二者共同导致土壤pH整体升高。pH的改善不仅有助于缓解设施土壤酸化,也为磷、钾等养分有效性的提高创造了更有利的土壤化学条件。
与WCK处理相比,沼液驱动的BSD过程导致土壤有机质含量不升反降,提示外源高活性碳源的输入诱导了正激发效应。沼液带来的高活性有机碳作为易利用底物,增强了微生物的代谢活性,并促进了土壤有机组分的周转与分解[15]。同时,各发酵处理出现有机质与全氮含量的同步锐减,其中,氮素并未表现为随沼液输入而发生简单积累,这说明在有机氮矿化增强的基础上,氮素进一步通过氨挥发或反硝化等途径发生损失。而中高量沼液处理(MG、HG)碱解氮提升67.77%~74.23%,可见,沼液驱动的厌氧发酵显著强化了土壤有机组分转化过程,并推动了氮素由有机态向活性态乃至气态损失途径的转移。本研究中土壤全氮损失幅度超过30%,该过程应予以重视。同时,各沼液用量厌氧处理下土壤速效钾、有效磷等养分含量均有不同程度的增加,表明沼液处理促进了土壤养分有效化。一方面,这与沼液本身携带的可利用磷、钾直接输入有关;另一方面,也可能与厌氧发酵过程中有机组分分解、吸附态养分释放以及pH改善共同作用有关[16]。因此,本研究表明在外源易利用碳源的激活下,土壤有机碳库周转加快,伴随着养分的再分配与有效化提高,在短期内维持了较高的养分供应水平。与仅淹水厌氧处理相比,沼液输入不仅缓解了养分亏缺,还表现出一定的培肥效应。有研究指出,磷资源供给面临持续消耗压力[17],而沼液作为有机消化物可提高土壤有效磷水平。因此,在磷资源日益枯竭的背景下,沼液的资源化利用不仅实现了养分循环,也为减少化学磷肥依赖提供了潜在途径。
3.2 沼液处理显著改变土壤微生物群落结构多样性微生物群落的组成与多样性是土壤生态系统健康与稳定的关键决定因素,而其动态平衡对于作物健康发育同样至关重要。沼液施入土壤后,其中所含的大量营养物质和外源微生物可以直接或间接地改变土壤微生物的生境[18]。本研究中,沼液原位厌氧发酵后,土壤细菌丰富度提高,这可能是由于土壤有效养分含量升高,从而有利于细菌的生长。尽管真菌占比很小,但仅淹水的常规闷棚处理明显刺激了真菌的生长,这可能归因于水分增加激活了原土中部分休眠的真菌孢子,而沼液的进入和厌氧等条件对真菌具有极强的筛选压力。
沼液施用显著改变了土壤微生物群落结构,且细菌优势门类与以往研究结果基本一致[10]。有研究认为,这些微生物类群可能深度参与了有机质的矿化过程[19]。放线菌门能够合成多种生物活性代谢产物及抗生素,沼液发酵处理土壤放线菌门的相对丰度显著下降72.03%~77.35%,可能与其多为需氧菌有关[20]。作为土壤微生物区系的关键组分,拟杆菌门在沼液发酵处理中相对丰度上升。有研究表明,拟杆菌门对农业管理措施较敏感,可作为土壤质量变化的重要指示类群[21]。MG、HG处理厚壁菌门相对丰度明显增加。Lee等[20]研究表明,番茄根际厚壁菌门和放线菌门丰度变化与青枯病发生密切相关,因此厚壁菌门的富集可能与根际微生态稳定性改善有关。真菌门相对丰度结果显示,子囊菌门的相对丰度显著降低,可能与密闭厌氧发酵形成的缺氧环境抑制部分好氧子囊菌类群有关。而毛霉菌门相对丰度的爆发性增长,可能与沼液厌氧发酵后pH升高、含水量增加及易利用有机底物输入有关。毛霉菌门类群广泛分布于土壤、腐解植物残体等有机质丰富的环境中,部分代表类群具有较强的有机底物利用能力[22],并可在低氧或微氧条件下生长[23],因而可能在密闭厌氧发酵过程中被富集。进一步在属水平上分析,根霉菌属、被孢霉菌属的相对丰度在沼液厌氧发酵处理后均有所提高,其中根霉菌属的比例随沼液浓度增加持续上升,而被孢霉菌属在高添加量沼液处理下富集更为明显。已有研究表明,部分被孢霉属菌株能够合成多种生物活性物质,并对植物生长和土壤生态功能具有潜在的促进作用[24]。另外,沼液发酵处理镰刀菌属的相对丰度降低,镰刀菌属中包含多种重要土传植物病原菌,可引起多种作物病害[25],这一结果提示沼液厌氧发酵处理可能有助于减少土壤中部分病原微生物的侵染风险。
基于PCoA分析结果,沼液处理能够显著影响土壤微生物的群落结构,并且WCK与沼液发酵处理群落结构存在明显差异,说明沼液带来的外源微生物和高负荷基质才是驱动微生物群落重塑的核心动力。低、中浓度沼液发酵处理的微生物群落构成较为相似。LEfSe差异分析的指示物种结果清晰地揭示了随着沼液施用梯度的增加,土壤微生物群落实现了从寡营养好氧生境向富营养专性厌氧生境的根本性转变。拟杆菌门与黄单胞菌科的协同富集,不仅是驱动土壤速效养分跨越式提升的核心生物动力,更是构建抑病型土壤生境的关键生物学标志[21]。
3.3 沼液处理对土壤微生物代谢功能的影响土壤微生物主要通过其功能基因的表达来调节土壤养分转化[26]。土壤微生物群落的代谢功能对沼液处理响应显著。MG和HG处理中辅因子及维生素的代谢水平呈现明显上升趋势,而氨基酸和碳水化合物的代谢活性则明显受到抑制。这些结果表明,施加沼液不仅能引导土壤微生物群落结构发生改变,还可强化某些关键代谢途径,进而提升沼液所含养分的转化与循环效率。
此外,沼液处理强烈影响了微生物氮循环相关功能基因的相对丰度。研究发现,沼液发酵处理在一定程度上增强了反硝化基因nosZ的相对丰度,其负责将温室气体N2O还原为氮气,可降低N₂O排放风险[27]。沼液处理提高了部分GDH(谷氨酸脱氢酶)途径相关基因,尤其是gdh_K00262和gdh_K15371的相对丰度,可能与沼液提升土壤中NH4+含量有关[28],同时,降低glnA/gs_K00265基因相对丰度,说明微生物优先使用GDH途径节能高效同化氨,但可能因低亲和力导致氨挥发损失。与有机氮矿化过程相关的nmo/glsA基因相对丰度也得到提升,而与异化硝酸盐还原相关的nirB基因、与氮储存相关的asnB基因相对丰度下降,沼液输入显著改变了微生物群落的氮代谢策略,强化了有机氮向无机氮的转化,增强反硝化脱氮作用,并优先利用低能耗、高效的氨同化途径,同时减少非必要的氮储存和可能造成氮损失的异化还原途径[29]。本研究中,沼液发酵处理显著增加能量代谢基因pyk,其编辑的丙酮酸激酶是催化糖酵解途径最后一步的关键酶,表明发酵处理提升了微生物利用沼液中有机能源物质的能力。
4 结论沼液驱动的原位厌氧发酵通过触发强烈的正激发效应激活了土壤微生物代谢网络,在扣除水分物理背景的同时,驱动了群落向富营养专性厌氧方向的稳态演替,显著提升了设施退化土壤的生物修复效能与养分供应容量。其中,中浓度沼液添加(MG)在激活土壤活性、控制环境风险等方面取得最佳平衡,是提升土壤健康的最优选择。
| [1] |
赵云云, 何芬, 尹义蕾, 等. 施用猪粪日光温室土壤抗生素风险及微生物群落特征——以河北永清县日光温室为例[J]. 中国农学通报, 2024, 40(35): 82-88 (  0) |
| [2] |
卢维宏, 张乃明, 包立, 等. 我国设施栽培连作障碍特征与成因及防治措施的研究进展[J]. 土壤, 2020, 52(4): 651-658 DOI:10.13758/j.cnki.tr.2020.04.001 ( 0) |
| [3] |
田福发, 张黎杰, 周玲玲, 等. 塑料大棚辣椒连作障碍综合治理技术[J]. 中国瓜菜, 2018, 31(9): 59-60 ( 0) |
| [4] |
Ueki A, Kaku N, Ueki K. Role of anaerobic bacteria in biological soil disinfestation for elimination of soil-borne plant pathogens in agriculture[J]. Applied Microbiology and Biotechnology, 2018, 102(15): 6309-6318 DOI:10.1007/s00253-018-9119-x ( 0) |
| [5] |
徐淑楠, 谢祎, 卢芝钰, 等. 土壤强还原处理防控番茄青枯病的微生物多界互作机制[J/OL]. 土壤学报, 2025: 1–13. (2025-08-29). https://kns.cnki.net/KCMS/detail/detail.aspxfilename=TRXB20250828001&dbname=CJFD&dbcode=CJFQ.
( 0) |
| [6] |
张文康, 陈渠东, 姚光伟, 等. 生物质炭–沼液联用对土壤微生物及碳氮功能基因的影响[J]. 环境化学, 2026, 45(2): 527-537 ( 0) |
| [7] |
巴仕浩, 叶生月, 蔡晶晶, 等. 不同施肥措施对酸化黄红壤改良效果及油菜农艺性状的影响[J]. 农业工程学报, 2025, 41(9): 93-102 ( 0) |
| [8] |
Li X, Wang Y, Nikolić V, et al. Demonstrating the application of batch anaerobic digestion recirculating slurry inoculation of food waste engineering from a microbiological perspective[J]. Renewable Energy, 2023, 209: 317-329 ( 0) |
| [9] |
Guo Y X, Lu Y Y, Eltohamy K M, et al. Contribution of biogas slurry-derived colloids to plant P uptake and phosphatase activities: Spatiotemporal response[J]. Environmental Science & Technology, 2023, 57(43): 16564-16574 ( 0) |
| [10] |
许剑锋, 孟庆婷, 傅佳杰, 等. 沼液施用下的西蓝花种植土壤微生物群落演变特征[J]. 农业环境科学学报, 2025, 44(12): 3172-3180 ( 0) |
| [11] |
鲍士旦. 土壤农化分析[M].
中国农业出版社, 北京, 2000
( 0) |
| [12] |
王宗寿. 利用沼液种植黑麦草对土壤环境质量的影响[J]. 农业环境科学学报, 2007, 26(B3): 172-175 ( 0) |
| [13] |
王康, 许玉超, 戴辉, 等. 沼液在土壤改良上的应用研究[J]. 江苏农业科学, 2019, 47(24): 299-303 ( 0) |
| [14] |
王晶, 汪建旭, 卢秀霞, 等. 施用不同浓度尾菜沼液对芹菜品质和产量及土壤基本性状的影响[J]. 西北农业学报, 2025, 34(5): 924-931 ( 0) |
| [15] |
Kuzyakov Y. Priming effects: Interactions between living and dead organic matter[J]. Soil Biology and Biochemistry, 2010, 42(9): 1363-1371 DOI:10.1016/j.soilbio.2010.04.003 ( 0) |
| [16] |
Yu F B, Luo X P, Song C F, et al. Concentrated biogas slurry enhanced soil fertility and tomato quality[J]. Acta Agriculturae Scandinavica, Section B - Plant Soil Science, 2010, 60(3): 262-268 ( 0) |
| [17] |
Dawson C J, Hilton J. Fertiliser availability in a resource-limited world: Production and recycling of nitrogen and phosphorus[J]. Food Policy, 2011, 36: S14-S22 DOI:10.1016/j.foodpol.2010.11.012 ( 0) |
| [18] |
Suleiman A K A, Gonzatto R, Aita C, et al. Temporal variability of soil microbial communities after application of dicyandiamide-treated swine slurry and mineral fertilizers[J]. Soil Biology and Biochemistry, 2016, 97: 71-82 DOI:10.1016/j.soilbio.2016.03.002 ( 0) |
| [19] |
Wang M, Li S S, Chen S B, et al. Manipulation of the rhizosphere bacterial community by biofertilizers is associated with mitigation of cadmium phytotoxicity[J]. Science of the Total Environment, 2019, 649: 413-421 DOI:10.1016/j.scitotenv.2018.08.174 ( 0) |
| [20] |
Lee S M, Kong H G, Ryu C M. Disruption of Firmicutes and Actinobacteria abundance in tomato rhizosphere causes the incidence of bacterial wilt disease[J]. The ISME Journal, 2021, 15(1): 330-347 DOI:10.1038/s41396-020-00785-x ( 0) |
| [21] |
Kruczyńska A, Kuźniar A, Podlewski J, et al. Bacteroidota structure in the face of varying agricultural practices as an important indicator of soil quality–a culture independent approach[J]. Agriculture, Ecosystems & Environment, 2023, 342: 108252 ( 0) |
| [22] |
Vellozo-Echevarría T, Barrett K, Vuillemin M, et al. Mini-review: The distinct carbohydrate active enzyme secretome of Rhizopus spp. represents fitness for Mycelium Remodeling and solid-state plant food fermentation[J]. ACS Omega, 2024, 9(32): 34185-34195 DOI:10.1021/acsomega.4c04378 ( 0) |
| [23] |
Lin M S, Wang H H. Anaerobic growth and oxygen toxicity of Rhizopus cultures isolated from starters made by solid state fermentation[J]. Chinese Journal of Microbiology and Immunology, 1991, 24(2): 229-239 ( 0) |
| [24] |
Johnson J M, Ludwig A, Furch A C U, et al. The beneficial root-colonizing fungus Mortierella hyalina promotes the aerial growth of Arabidopsis and activates calcium-dependent responses that restrict Alternaria brassicae–induced disease development in roots[J]. Molecular Plant-Microbe Interactions®, 2019, 32(3): 351-363 ( 0) |
| [25] |
Todorović I, Moënne-Loccoz Y, Raičević V, et al. Microbial diversity in soils suppressive to Fusarium diseases[J]. Frontiers in Plant Science, 2023, 14: 1228749 DOI:10.3389/fpls.2023.1228749 ( 0) |
| [26] |
Chen Y, Xia A Q, Zhang Z J, et al. Extracellular enzyme activities response to nitrogen addition in the rhizosphere and bulk soil: A global meta-analysis[J]. Agriculture, Ecosystems & Environment, 2023, 356: 108630 ( 0) |
| [27] |
Palacin-Lizarbe C, Camarero L, Hallin S, et al. The DNRA-denitrification dichotomy differentiates nitrogen transformation pathways in mountain lake benthic habitats[J]. Frontiers in Microbiology, 2019, 10: 1229 DOI:10.3389/fmicb.2019.01229 ( 0) |
| [28] |
Du T Y, Hu Q F, Mao W J, et al. Metagenomics insights into the functional profiles of soil carbon, nitrogen, and phosphorus cycles in a walnut orchard under various regimes of long-term fertilisation[J]. European Journal of Agronomy, 2023, 148: 126887 DOI:10.1016/j.eja.2023.126887 ( 0) |
| [29] |
Yan L, Kuang Y L, Xie X J, et al. Insights into nitrogen biogeochemical cycling in mangrove wetland from Genome-Resolved metagenomic sequencing[J]. Journal of Hydrology, 2024, 640: 131741 DOI:10.1016/j.jhydrol.2024.131741 ( 0) |
2. Institute of Animal Science and Veterinary Medicine, Shandong Academy of Agricultural Sciences, Jinan 250100, China;
3. Institute of Resource and Environmental Innovation, Shandong Jianzhu University, Jinan 250101, China