 2026, Vol. 58


2. 土壤健康山西省实验室, 太原 030031
设施农业作为现代农业集约化生产的重要模式,在保障粮食安全和提高土地利用效率方面发挥着关键作用。而当前设施生产中有机肥用量超出作物实际需求量的现象普遍存在,导致其养分在土壤中盈余,而未被矿化的氮磷养分在设施环境高频灌溉和雨季淋洗作用下大量流失[1],不仅造成资源浪费,更成为农业面源污染的贡献源。
填闲作物为短期轮作的一种形式[2],可视为农业可持续发展的重要管理措施。种植填闲作物不但能减少土壤氮素流失[3],而且对控制土传病原体有一定积极作用[4]。更重要的是,填闲作物通过原位还田在秸秆腐解过程中持续释放有机碳[5],可替代部分外源有机肥的碳素供给功能[6]。不同填闲作物还田后形成不同C/N特征的有机基质,进而影响土壤微生物群落的结构和功能[7],促进植物生长发育[8],增加作物产量[9]。有机肥减量并结合填闲作物原位还田养分管理策略不仅能降低土壤中氮、磷淋洗,还能维持土壤肥力和保障作物生长[10],为构建可持续的设施农业生产体系提供重要途径。
土壤微生物群落作为地下生态系统的核心驱动力,在养分循环和生态功能维持中发挥关键作用[11]。基于土壤食物网理论,微生物群落的变化会通过营养级联效应影响整个土壤生态系统的稳定性。目前,设施土壤相关研究多聚焦于细菌、真菌等微生物类群以及线虫等土壤动物的群落结构与动态。然而,作为连接微生物与后生动物的关键环节,原生生物群落对农业管理措施的响应机制却鲜有深入研究[12]。
原生生物是除动物、植物及真菌之外的其他真核生物[12],在土壤微生物群落中扮演着关键角色[13],具有多种生态功能[12, 14]。按其在土壤食物网中的功能作用,主要分为捕食型、光养型和寄生型。其中,捕食型原生生物以选择性捕食来调节微生物群落组成[15],促进养分从微生物生物量向可利用性养分转化,在土壤氮循环中发挥“微生物泵”的重要作用[16];光养型原生生物参与土壤碳固定过程[12];而寄生型原生生物则调控微生物群落的种群动态。不同功能类群原生生物对土壤环境变化的敏感性差异,使其成为评估土壤质量变化的重要生物指标[17]。已有研究发现,秸秆配施氮肥可缓解单施氮肥导致的原生生物群落多样性下降[18],说明原生生物群落结构能够快速响应施肥管理措施。另外,原生生物α多样性变化也可反映土壤健康状况和稳定性[19]。鉴于原生生物在土壤生态系统物质循环中的关键作用,尤其是原生生物对于常年高频次施肥后设施土壤的响应机制研究鲜见报道。为此,本研究基于6年的定位试验,分析比较不同填闲作物替代有机肥管理下原生生物功能类群的响应特征及其与土壤理化性质的关系,为建立基于生物学指标的设施农业微生物生态功能管理评价体系提供理论依据,同时为构建集约化设施农业养分高效管理模式与生态环境保护协调发展提供实践指导。
1 材料与方法 1.1 试验区概况本研究在山西省临汾市曲沃县(111°33′16″E,35°38′51″N)磨盘岭现代农业园区进行。该地区属温带大陆性季风气候,年平均气温为12.7 ℃,全年无霜期约190 d,霜冻一般出现在10月下旬,结束于次年4月中旬。试验依托2018年建立的定位试验,在已连续种植19年的日光温室内开展。供试土壤为石灰性褐土,供试蔬菜为黄瓜,采用越冬长茬栽培模式。2018年测定0~20 cm土壤全氮为2.1 g/kg,有效磷为285.1 mg/kg,速效钾为460.2 mg/kg,有机质为32.9 g/kg,pH 7.93,EC值375.0 μS/cm。
1.2 试验设计采用随机区组设计,设置5个处理,分别为农民习惯有机肥用量且休闲(CK),50% 农民习惯有机肥用量且休闲(NC),50% 农民习惯有机肥用量且休闲季种植饲草玉米(CM)、饲草高粱(CS)、饲草黑豆(CL)。每处理3个重复,各小区面积为31.2 m2。
2018—2023年期间,每年在蔬菜拉秧后(设施休闲季)种植填闲作物,于下茬蔬菜移栽定植前将其原位压青还田后施入底肥,各处理每年底肥施入的有机肥种类相同,其用量按照试验设计施入,各处理仅是底肥中有机肥用量不同,其在蔬菜生育期的水、肥、药管理及农事操作均一致。
本研究于2023年7月21日种植填闲作物,2023年9月16日将其原位粉碎压青还田。2023年9月18日,施入底肥后旋地起垄,底肥包括腐熟的牛粪(OM:45.2%;N:1.4%;P:0.5%;K:1.1%)和复合肥(N∶P2O5∶K2O=18∶18∶18)。牛粪施用量为:CK处理60 t/hm2,NC、CM、CS和CL处理均为30 t/hm2;复合肥各处理用量均为750 kg/hm2。2023年9月27日移栽定植蔬菜(黄瓜),于2024年6月28日拉秧,蔬菜生育期各处理均采用膜下沟灌浇水追肥,且灌溉量和追肥量相同。填闲作物播种量、还田时干物质量和养分吸收量见表 1。
|
表 1 填闲作物播种量、干物质量和养分吸收量 Table 1 Seeding rates, dry matter biomass, and nutrient uptake of catch crops under different treatments |
2024年6月23日(黄瓜拉秧前)采集土壤样品。在各处理小区选择长势一致的3株黄瓜植株,清理根基周围的表层土壤及杂物后,以根基为中心用铁锹挖20 cm间方根系土柱,将根区土抖落至事先备好的灭菌袋中,3株根区土混成1份土壤样品,并将其低温保存带回室内。首先将混合样品过2 mm筛,随后再将过筛后的样品分为2份,一份用于扩增子测序分析,一份经风干后用于土壤理化性质测定。
1.3.2 土壤理化性质测定土壤理化性质测定参照《土壤农化分析》[20]。土壤pH采用复合电极法测定(水土质量比2.5∶1);土壤电导率(EC值)采用电导仪法测定(水土质量比5∶1);土壤全氮(TN)采用浓硫酸氧化–凯氏定氮法测定;土壤有机质(SOM)采用重铬酸钾氧化–滴定法测定;有效磷(AP)采用0.5 mol/L碳酸氢钠浸提–钼锑抗比色法测定;速效钾(AK)采用1 mol/L醋酸铵浸提–火焰光度法测定。
1.3.3 DNA提取与扩增子测序使用E.Z.N.A.® soil DNA kit提取土壤样本总DNA。经1% 琼脂糖凝胶电泳与NanoDrop 2000对提取的DNA进行质量检测及浓度、纯度评估后,采用带Barcode序列的引物F-TAReuk454FWD1/R-TAReukREV3[21]对真核生物V4高变区进行PCR扩增。所得产物经纯化与定量,最终按等摩尔比混合,构建测序文库,并委托上海美吉生物医药科技有限公司在Illumina MiSeq平台上完成测序。
原始测序数据导入QIIME2分析流程,通过DADA2插件进行质控与去噪处理,获得高质量的扩增子序列变体(ASVs)。基于PR2数据库(Protist Ribosomal Reference Database,version_4.5)对ASV进行物种注释[22]。为进一步明确研究对象,从真核生物类群中剔除真菌、链形植物、后鞭毛生物_X、红藻门及后生动物等非原生生物类群,生成用于分析的原生生物ASV分类表[19]。参照已有功能分类体系[14],将原生生物在门水平上划分为捕食型、寄生型、光养型及未分类功能群,以系统评估其生态功能多样性。
1.4 数据统计与分析采用单因素方差分析(One-way ANOVA)进行统计检验,并使用邓肯(Duncan)事后检验法判断不同处理间差异的显著性,显著性水平设为P < 0.05。选用R语言“vegan”包和“picante”包计算原生生物的α多样性指数(Shannon指数);通过基于Bray-Curtis距离的主坐标分析(PCoA)可视化群落结构差异,并借助“vegan”包中的相似性分析(ANOSIM)检验组间差异的显著性水平。使用R语言中“tidyverse”包对原生生物门水平物种进行相对丰度计算,并使用“ggplot2”包作图。采用Pearson相关分析检验原生生物各营养类型物种组成与土壤性质间的相关性,选用“GGally”包绘制相关性分析矩阵图。采用偏最小二乘路径模型(PLS-PM)对土壤理化性质、各原生生物功能类群相对丰度和原生生物群落α多样性之间的关系进行评价,通过自举法(1 000次迭代)验证路径系数和决定系数(R2)的估计,利用拟合优度指标对模型的整体预测性能进行评价。数据可视化处理基于R(v4.0.3)完成,最终图像在Adobe Illustrator中整合输出。
2 结果与分析 2.1 土壤理化性质由表 2可知,与CK相比,CM、CS和CL处理土壤pH分别显著提高0.5、0.3和0.4个单位(P < 0.05);EC值、容重、全氮含量则分别显著降低12.3%、31.2%、32.4%,4.3%、11.4%、11.5% 和10.8%、12.7%、10.9% (P < 0.05)。CM和CS处理土壤速效钾含量较CK分别显著提高4.1% 和12.0%(P < 0.05),而CL处理则显著降低,降幅为6.7%(P < 0.05)。与CK相比,NC处理土壤有机质含量显著降低13.6%(P < 0.05),而填闲处理(CM、CS、CL)则与CK无显著差异。
|
|
表 2 土壤理化性质 Table 2 Soil physicochemical properties |
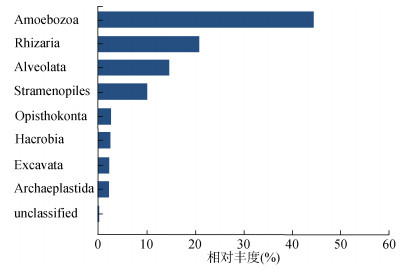
对各土壤样本进行扩增子测序,得到真核生物18S rRNA的1 884 492条序列,共聚类为7 885个扩增子序列变体(ASVs),剔除植物、后生动物及真菌等其他真核生物的ASVs后,共获得原生生物4 407个ASVs,占真核生物总ASVs的55.9%。按“超群”分类系统划分,变形虫超群(Amoebozoa)的相对丰度最大,占原生生物超群的46.9%;其次是SAR超群的根足虫超群(Rhizaria)、囊泡虫超群(Alveolata) 和不等鞭毛生物超群(Stramenopiles),占比分别为20.7%、14.6% 和9.8% (图 1)。
|
图 1 土壤环境中原生生物超群的相对丰度 Fig. 1 Proportional abundances of soil protistan supergroups |
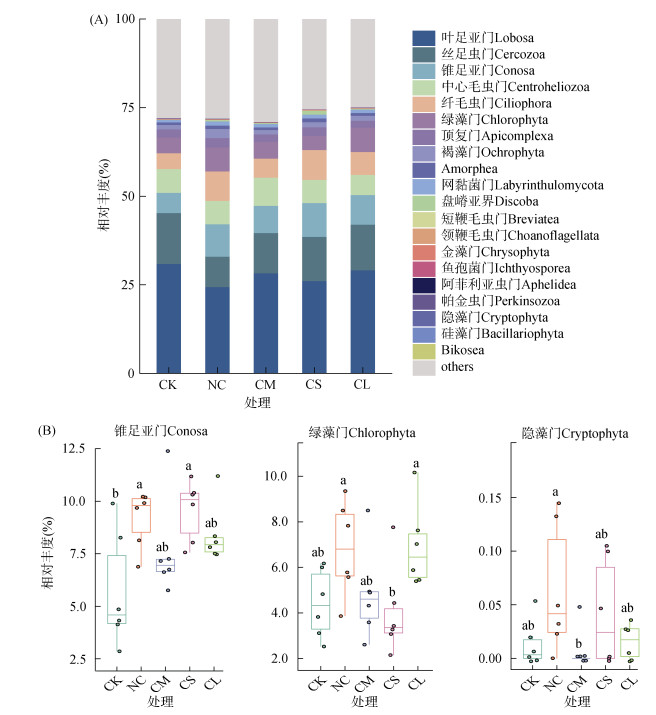
不同处理土壤原生生物优势门类大致相同(图 2A)。其中,叶足亚门(Lobosa)为最主要类群,平均相对丰度约为24%~31%;丝足虫门(Cercozoa)、锥足亚门(Conosa)、中心毛虫门(Centroheliozoa)、纤毛虫门(Ciliophora)及绿藻门(Chlorophyta)比例也较高,平均相对丰度约为4%~14%,共同构成土壤原生生物的优势门类。对门水平上原生生物相对丰度排名前20的优势门进行统计分析,结果表明锥足亚门(Conosa)、绿藻门(Chlorophyta)和隐藻门(Cryptophyta)处理间存在差异(图 2B)。有机肥施用量降低后,锥足亚门(Conosa)相对丰度整体提高,其中NC和CS处理较CK分别显著提高60.7% 和67.5%(P < 0.05)。在有机肥施用量同等条件下,与NC处理相比,CM和CS处理绿藻门(Chlorophyta)相对丰度均呈降低趋势,其中CS处理显著降低了41.0%(P < 0.05)。与NC处理相比,填闲处理(CM、CS、CL)均降低了隐藻门(Cryptophyta)相对丰度,其中CM处理显著降低34.5%(P < 0.05)。
|
(A. 门水平上的土壤原生生物群落组成;B. 原生生物群落优势门的相对丰度变化。图B中小写字母不同表示处理间差异达P < 0.05显著水平;箱体下边界和上边界分别表示第一四分位数(Q1)和第三四分位数(Q3),箱内横线表示中位数。下同) 图 2 土壤原生生物群落门水平物种组成及优势门相对丰度变化 Fig. 2 Phylum-level taxonomic composition and variations in relative abundance of dominant phyla within soil protist communities |
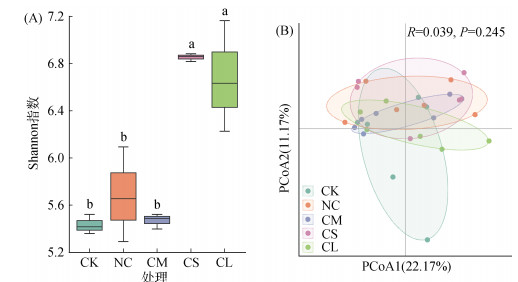
由图 3A可知,CS和CL处理较CK处理显著提高了原生生物的Shannon指数(P < 0.05),提高幅度分别为26.1% 和22.9%,表明填闲饲草高粱(CS处理)和饲草黑豆(CL处理)提高了原生生物的α多样性。基于Bray-Curtis距离对不同处理原生生物群落结构进行PCoA分析与ANOSIM组间差异检验,结果表明(图 3B),各处理土壤原生生物群落结构无显著差异,说明无论是有机肥减量还是在此基础上种植填闲作物均未对土壤原生生物的群落结构产生显著影响。
|
(A. Shannon指数;B. PCoA分析) 图 3 不同处理土壤原生生物群落α多样性与β多样性 Fig. 3 Alpha and beta diversities of soil protists communities under different treatments |
表 3反映了土壤原生生物群落的功能组成变化情况。在所有处理中,捕食型原生生物占59.1%~ 65.0%,光养型原生生物占4.8%~8.3%,寄生型原生生物占3.1%~4.4%。在等量有机肥条件下,相较于NC处理,种植填闲作物(CM、CS、CL处理)均提高捕食型原生生物的相对丰度(增幅3.9%~10.0%);降低光养型类群的相对丰度(降幅7.2%~42.2%),其中,CS处理降幅显著,为42.2%(P < 0.05)。
|
|
表 3 土壤原生生物不同功能类群相对丰度(%) Table 3 Relative abundances of different functional groups in soil protist communities |
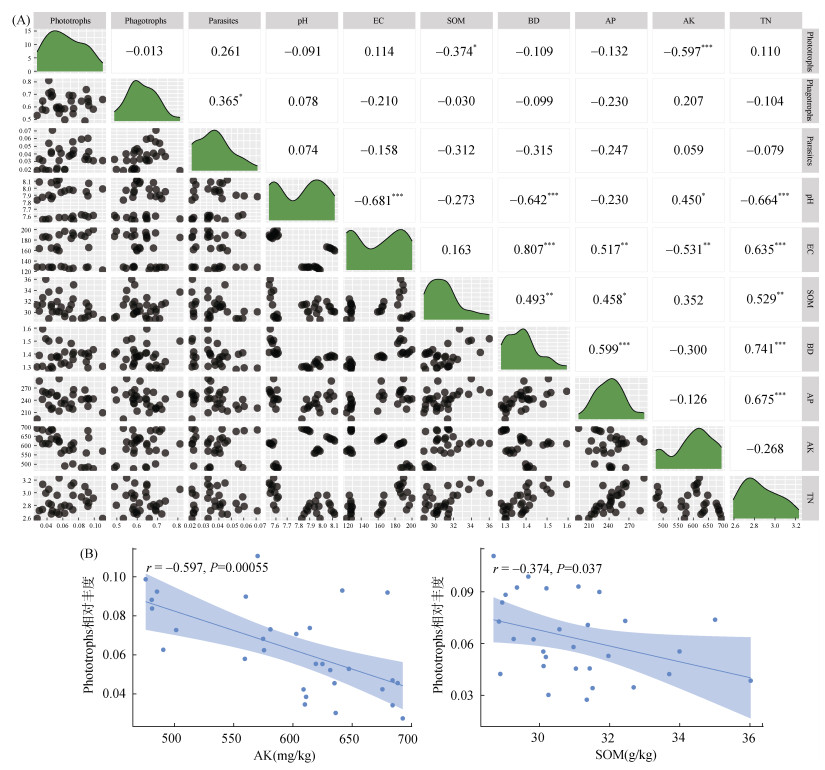
土壤原生生物功能类群和土壤理化性质的相关性矩阵分析(图 4A)表明,寄生型和捕食型原生生物相对丰度之间存在显著正相关关系(P < 0.05);光养型原生生物相对丰度与速效钾、土壤有机质之间均存在负相关关系,其中,与速效钾之间达极显著负相关关系(r= –0.597,P=0.000 55),与土壤有机质之间达显著负相关关系(r = –0.374,P = 0.037)(图 4B)。
|
(图A为土壤原生生物功能类群与土壤理化性质的相关性矩阵图;上三角显示Pearson相关系数,*、** 和*** 分别表示相关性达P < 0.05、P < 0.01和P < 0.001显著水平;下三角为各变量对应的散点图;对角线为各变量的核密度分布图(绿色填充区域),其中横轴表示变量取值,纵轴表示概率密度。土壤原生生物包括捕食型原生生物(Phagotrophs)、光养型原生生物(Phototrophs)和寄生型原生生物(Parasites),土壤理化性质包括pH、电导率(EC)、土壤有机质(SOM)、容重(BD)、有效磷(AP)、速效钾(AK)、全氮(TN)。图B为光养型原生生物与土壤理化性质的回归分析图;蓝色阴影区域表示95% 置信区间) 图 4 土壤原生生物功能类群与土壤理化性质的相关性 Fig. 4 Correlations between soil protist functional groups and soil physicochemical properties |
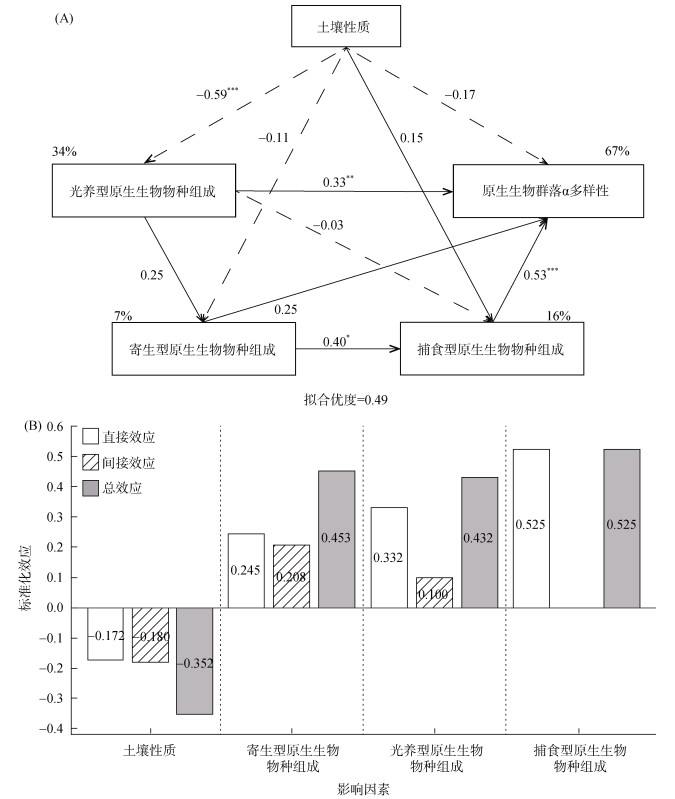
偏最小二乘路径模型(图 5A)表明,土壤性质(有机质、速效钾)对光养型原生生物物种组成具有显著负向影响(P < 0.001),而对捕食型和寄生型原生生物物种组成分别表现为正效应和负效应,但均不显著。各原生生物功能类群之间也存在相互作用,光养型原生生物对寄生型的正效应和对捕食型的负效应均不显著,而寄生型原生生物可显著正向影响捕食型原生生物(P < 0.05)。此外,光养型和捕食型原生生物物种组成均显著正向影响原生生物群落α多样性(P < 0.05),且捕食型原生生物物种组成与原生生物群落α多样性的相关性更为密切。在标准化效应分析中(图 5B),土壤性质和光养型、寄生型、捕食型原生生物物种组成对原生生物群落α多样性的效应不同,其中土壤性质对原生生物群落α多样性表现为负效应,而光养型、寄生型、捕食型原生生物物种组成对原生生物群落α多样性表现为正效应。对原生生物群落α多样性直接的正向影响从大到小依次是捕食型(0.525)、光养型(0.332)和寄生型(0.245)。模型的拟合优度达到0.49,表明该PLS-PM模型能够较好地解释土壤理化性质、各原生生物功能类群的物种组成与原生生物群落α多样性之间的关系。偏最小二乘路径模型和标准化效应分析的结果揭示了土壤环境因子通过影响原生生物各功能类群的物种组成调节原生生物群落多样性,且不同功能类群的原生生物之间存在复杂的关系。
|
(图A中实线箭头和虚线箭头分别代表正向和负向效应;*、**和***分别表示影响达P < 0.05、P < 0.01和P < 0.001显著水平) 图 5 原生生物群落α多样性组成影响因素的偏最小二乘路径模型PLS-PM(A)以及模型各影响因素的直接、间接和总效应柱状图(B) Fig. 5 Partial least squares path modeling (PLS-PM) of factors influencing α diversity composition of protist communities (A), and bar chart showing direct, indirect, and total effects of various influencing factors in model (B) |
有机肥减量(NC处理)显著降低了土壤有机质含量,而在此基础上连续多年种植填闲作物(饲草玉米CM处理、饲草高粱CS处理和饲草黑豆CL处理)对土壤有机质含量无显著影响(表 2),与课题组前期研究结果一致[10],这表明填闲作物在维持土壤有机质水平方面具有与有机肥相似的作用[23]。这种替代效应主要是由于填闲作物原位还田为土壤提供了有机碳源。
填闲作物在生长过程中可吸收耕层土壤多余盐分,且秸秆原位还田腐解过程中释放的腐殖酸官能团可有效中和土壤酸性[24],对降低土壤EC值和提高土壤pH有一定积极作用(表 2)。此外,填闲处理还降低了土壤容重(表 1),改善土壤物理结构。有机肥减量和填闲处理土壤全氮含量均有所降低,而填闲处理(CM、CS、CL)相比NC处理下降明显,主要归因于填闲作物生长期对氮素的吸收[25]及其秸秆还田后微生物固持氮素[26]的双重作用结果,从而促使氮素由土壤库向植物-微生物活性库再分配并加快其生物循环[27]。不同填闲作物对土壤速效钾的影响表现出明显差异(表 2),主要是因为禾本科填闲作物(饲草玉米、饲草高粱)的高生物量及其钾素吸收量高于豆科作物(饲草黑豆),其秸秆腐解所释放的钾素量不同所致,由此说明,填闲作物秸秆还田的生物量是影响土壤速效钾水平的关键因素[28]。综上所述,长期种植填闲作物,可改善设施土壤结构,对缓解设施农业中普遍存在的次生盐渍化障碍问题有一定调节作用。
3.2 填闲作物对原生生物多样性和群落组成的影响原生生物是土壤中最具优势的真核生物[12],是土壤环境和质量变化的指示者,而土壤管理措施显著影响原生生物群落组成[29]。因变形虫具有多样化的捕食策略和环境耐受能力[30],使其能够在各种农业管理措施下保持较高的丰度,本研究各处理中变形虫超群在土壤原生生物群落中占比较大(图 1)。此外,SAR超群中根足虫超群(Rhizaria)占比最高,其次是囊泡虫超群(Alveolata),不等鞭毛生物超群(Stramenopiles)的比例最低,这种递减分布格局反映了非泥炭土壤生态系统中原生生物群落的典型结构[31]。叶足亚门(Lobosa)、丝足虫门(Cercozoa)、锥足亚门(Conosa)、中心毛虫门(Centroheliozoa)及绿藻门(Chlorophyta)构成了各处理土壤原生生物群落的优势门类(图 2A),与胡菏等[18]在大田试验中氮肥配施秸秆处理的土壤优势类群研究结果相似,说明在不同生境及其耕作制度下的原生生物群落门水平物种具有共性,但其相对丰度会随填闲作物种类而产生差异。其中,CS处理显著提高锥足亚门(Conosa)的相对丰度;在同等有机肥施用量条件下,CS处理显著降低绿藻门(Chlorophyta)的相对丰度,CM处理则显著降低隐藻门(Cryptophyta)的相对丰度(图 2B),表明不同填闲作物对不同原生生物类群的影响存在差异,其中填闲饲草高粱影响较大。
填闲处理的原生生物群落结构虽未表现出显著差异(图 3B),但多样性的提升表明填闲作物为原生生物提供了更加多样化的栖息环境。这可能与填闲作物根际分泌物的多样性以及不同植物残体分解过程中形成的异质性微环境有关[12]。本研究发现填闲饲草高粱(CS)和饲草黑豆(CL)处理显著提高原生生物的Shannon多样性指数(图 3A),表明其具有促进土壤原生生物多样性的潜力。以往研究表明,作物残体还田通过改善土壤理化性质及生物学性质,为土壤原生生物提供更加适宜的生存环境[32]。饲草黑豆或许是通过与根瘤菌共生固氮,改善土壤氮素营养状况,从而有利于原生生物的生存与繁殖[33];而饲草高粱则可能因其根系或植物残体分泌如糖类和有机酸等多种有机物,改变土壤微生物区系的丰富度和多样性[34],最终对原生生物的群落组成产生影响。
3.3 填闲作物对原生生物功能类群的生态调节作用各处理中捕食型原生生物均占主导地位,其次是光养型和寄生型(表 3)。捕食型原生生物是通过捕食细菌、真菌等途径调控土壤微生物群落结构,促进土壤养分循环,从而影响农田生态系统功能[18],其优势地位反映了它是土壤食物网中的关键环节。增施有机物料通过刺激微食物网中基础营养类群(细菌与真菌)的生长[35],为捕食型原生生物创造了更有利的资源条件,因此在同等有机肥用量条件下,3种填闲处理较有机肥减量且休闲处理(NC)的捕食型原生生物的相对丰度提高。光养型原生生物相对丰度的降低反映了土壤生态环境从自养向异养系统的转变,这种转变符合土壤食物网理论中关于有机物输入对微生物群落结构影响的预测[36]。本研究表明,填闲饲草高粱处理(CS)的光养型原生生物相对丰度较休闲处理(NC)显著降低(表 3),说明种植填闲饲草高粱的土壤生态环境开始从自养型向异养型转变。
3.4 土壤环境因子对原生生物功能类群的驱动机制光养型原生生物在养分贫瘠环境中通过光合作用减少对外源有机碳的依赖[37],从而提高其在环境中的适应性。本研究结果表明,光养型原生生物相对丰度与土壤速效钾和有机质呈显著负相关关系(图 4),PLS-PM模型中土壤性质(速效钾和有机质)对光养型类群具有负向影响(图 5A),表明在设施高养分土壤环境中,异养型微生物具有更强的竞争优势,能够快速利用有机质和矿物养分,抑制光养型原生生物的生长,符合营养竞争假说的作用机制[38]。说明在设施生产过程中,通过种植填闲作物并降低有机肥用量,可改变土壤环境因子,影响原生生物功能类群,有利于调节设施土壤养分资源的再分配,提高养分利用效率,其中填闲饲草高粱处理作用效果最佳。
本研究构建的PLS-PM模型拟合优度为0.49(图 5A),表明约51% 的原生生物群落α多样性变异未被解释。从标准化效应分析来看(图 5B),土壤性质的直接效应相对较低,这可能与模型仅纳入速效钾和有机质两个指标有关,而土壤酶活性、微生物生物量C/N及根系分泌物也会影响土壤性质,进而影响土壤微生物群落[12, 39]。然而,模型仅包含原生生物三类功能类群的直接路径,未考虑土壤微生物、线虫等多营养级互作效应[40]。另外,从捕食型类群直接效应较高的结果说明,捕食型原生生物对群落多样性调控作用更强;此外,寄生型类群可显著促进捕食型类群(P < 0.05),这种级联效应进一步增强后者对群落多样性的贡献。该结果符合中等干扰假说,适度的捕食压力可防止某类物种过度占优,维持群落共存和多样性[41]。因此,未来需从土壤生物化学过程及多营养级互作网络等综合因素分析,系统揭示原生生物群落多样性的驱动机制。
4 结论1) 种植填闲作物降低了设施土壤EC值和容重,且提高了土壤pH,并具有替代部分有机肥的作用效果,对缓解设施土壤酸化和次生盐渍化障碍有调节作用。
2) 以饲草高粱和饲草黑豆为填闲作物可提高设施土壤原生生物的α多样性,其中,光养型和捕食型类群是其变化的主要因素。
3) 种植填闲作物并替代有机肥,通过改变设施土壤环境因子,进而影响原生生物功能类群分布;光养型原生生物受土壤环境因子影响较大,其中,土壤有机质和速效钾是主要驱动因子。
综上表明,在设施休闲季通过长期种植填闲作物,可调节设施土壤环境因子,从而改变原生生物功能类群,是设施土壤健康可持续管理措施之一。
| [1] |
Tian Y Q, Zhang X Y, Liu J, et al. Effects of summer cover crop and residue management on cucumber growth in intensive Chinese production systems: Soil nutrients, microbial properties and nematodes[J]. Plant and Soil, 2011, 339(1/2): 299-315 (  0) |
| [2] |
Gao D M, Zhou X G, Duan Y D, et al. Wheat cover crop promoted cucumber seedling growth through regulating soil nutrient resources or soil microbial communities[J]. Plant and Soil, 2017, 418(1/2): 459-475 ( 0) |
| [3] |
Hanrahan B R, King K W, Duncan E W, et al. Cover crops differentially influenced nitrogen and phosphorus loss in tile drainage and surface runoff from agricultural fields in Ohio, USA[J]. Journal of Environmental Management, 2021, 293: 112910 DOI:10.1016/j.jenvman.2021.112910 ( 0) |
| [4] |
Wiggins B E, Kinkel L L. Green manures and crop sequences influence alfalfa root rot and pathogen inhibitory activity among soil-borne streptomycetes[J]. Plant and Soil, 2005, 268(1): 271-283 DOI:10.1007/s11104-004-0300-x ( 0) |
| [5] |
Wang P F, Yu A Z, Wang F, et al. Mechanistic insights into farmland soil carbon sequestration: A review of substituting green manure for nitrogen fertilizer[J]. Agronomy, 2025, 15(5): 1042-1060 DOI:10.3390/agronomy15051042 ( 0) |
| [6] |
Zhou G P, Li G L, Liang H, et al. Green manure coupled with straw returning increases soil organic carbon via decreased priming effect and enhanced microbial carbon pump[J]. Global Change Biology, 2025, 31(5): e70232 DOI:10.1111/gcb.70232 ( 0) |
| [7] |
Muhammad I, Wang J, Sainju U M, et al. Cover cropping enhances soil microbial biomass and affects microbial community structure: A meta-analysis[J]. Geoderma, 2021, 381: 114696 DOI:10.1016/j.geoderma.2020.114696 ( 0) |
| [8] |
Qi G F, Chen S, Ke L X, et al. Cover crops restore declining soil properties and suppress bacterial wilt by regulating rhizosphere bacterial communities and improving soil nutrient contents[J]. Microbiological Research, 2020, 238: 126505 DOI:10.1016/j.micres.2020.126505 ( 0) |
| [9] |
Nie J W, Xie Q Y, Zhou Y, et al. Long-term legume green manure residue incorporation is more beneficial to improving bacterial richness, soil quality and rice yield than mowing under double-rice cropping system in Dongting Lake Plain, China[J]. Frontiers in Plant Science, 2025, 16: 1603434 DOI:10.3389/fpls.2025.1603434 ( 0) |
| [10] |
王立革, 焦晓燕, 郭珺, 等. 填闲作物替代有机肥对设施土壤氮磷淋洗的影响[J]. 华北农学报, 2023, 38(6): 108-117 ( 0) |
| [11] |
Stark C H, Condron L M, O'Callaghan M, et al. Differences in soil enzyme activities, microbial community structure and short-term nitrogen mineralisation resulting from farm management history and organic matter amendments[J]. Soil Biology and Biochemistry, 2008, 40(6): 1352-1363 DOI:10.1016/j.soilbio.2007.09.025 ( 0) |
| [12] |
Geisen S, Mitchell E A D, Adl S, et al. Soil protists: A fertile frontier in soil biology research[J]. FEMS Microbiology Reviews, 2018, 42(3): 293-323 DOI:10.1093/femsre/fuy006 ( 0) |
| [13] |
Li F F, Sun A Q, Jiao X Y, et al. Specific protistan consumers and parasites are responsive to inorganic fertilization in rhizosphere and bulk soils[J]. Journal of Soils and Sediments, 2021, 21(12): 3801-3812 DOI:10.1007/s11368-021-03052-4 ( 0) |
| [14] |
Oliverio A M, Geisen S, Delgado-Baquerizo M, et al. The global-scale distributions of soil protists and their contributions to belowground systems[J]. Science Advances, 2020, 6(4): eaax8787 DOI:10.1126/sciadv.aax8787 ( 0) |
| [15] |
Grossmann L, Jensen M, Heider D, et al. Protistan community analysis: Key findings of a large-scale molecular sampling[J]. The ISME Journal, 2016, 10(9): 2269-2279 DOI:10.1038/ismej.2016.10 ( 0) |
| [16] |
Clarholm M. Interactions of bacteria, protozoa and plants leading to mineralization of soil nitrogen[J]. Soil Biology and Biochemistry, 1985, 17(2): 181-187 DOI:10.1016/0038-0717(85)90113-0 ( 0) |
| [17] |
Foissner W. Soil protozoa as bioindicators: Pros and cons, methods, diversity, representative examples[J]. Agriculture, Ecosystems & Environment, 1999, 74(1/2/3): 95-112 ( 0) |
| [18] |
胡菏, 李胜君, 王蕊, 等. 氮肥配施秸秆对土壤原生生物群落的影响[J]. 土壤学报, 2023, 60(4): 1123-1133 ( 0) |
| [19] |
Zhao Z B, He J Z, Geisen S, et al. Protist communities are more sensitive to nitrogen fertilization than other microorganisms in diverse agricultural soils[J]. Microbiome, 2019, 7: 33 DOI:10.1186/s40168-019-0647-0 ( 0) |
| [20] |
鲍士旦. 土壤农化分析(3版)[M].
中国农业出版社, 北京, 2000
( 0) |
| [21] |
Stoeck T, Bass D, Nebel M, et al. Multiple marker parallel tag environmental DNA sequencing reveals a highly complex eukaryotic community in marine anoxic water[J]. Molecular Ecology, 2010, 19(s1): 21-31 DOI:10.1111/j.1365-294X.2009.04480.x ( 0) |
| [22] |
Guillou L, Bachar D, Audic S, et al. The Protist Ribosomal Reference database (PR2): A catalog of unicellular eukaryote Small Sub-Unit rRNA sequences with curated taxonomy[J]. Nucleic Acids Research, 2013, 41(D1): D597-D604 ( 0) |
| [23] |
Li P, Jia L, Chen Q Q, et al. Adaptive evaluation for agricultural sustainability of different fertilizer management options for a green manure-maize rotation system: Impacts on crop yield, soil biochemical properties and organic carbon fractions[J]. Science of the Total Environment, 2024, 908: 168170 DOI:10.1016/j.scitotenv.2023.168170 ( 0) |
| [24] |
王娇, 王鸿斌, 赵兴敏, 等. 添加秸秆对不同有机含量土壤酸度及缓冲性能的影响[J]. 水土保持学报, 2020, 34(6): 361-368 ( 0) |
| [25] |
Haruna S I, Anderson S H, Udawatta R P, et al. Improving soil physical properties through the use of cover crops: A review[J]. Agrosystems, Geosciences & Environment, 2020, 3: e20105 ( 0) |
| [26] |
Lyu H Q, Li Y, Wang Y L, et al. Drive soil nitrogen transformation and improve crop nitrogen absorption and utilization - a review of green manure applications[J]. Frontiers in Plant Science, 2024, 14: 1305600 DOI:10.3389/fpls.2023.1305600 ( 0) |
| [27] |
Daly A B, Jilling A, Bowles T M, et al. A holistic framework integrating plant-microbe-mineral regulation of soil bioavailable nitrogen[J]. Biogeochemistry, 2021, 154(2): 211-229 DOI:10.1007/s10533-021-00793-9 ( 0) |
| [28] |
李红燕, 胡铁成, 曹群虎, 等. 旱地不同绿肥品种和种植方式提高土壤肥力的效果[J]. 植物营养与肥料学报, 2016, 22(5): 1310-1318 ( 0) |
| [29] |
Xiong W, Jousset A, Guo S, et al. Soil protist communities form a dynamic hub in the soil microbiome[J]. The ISME Journal, 2018, 12(2): 634-638 DOI:10.1038/ismej.2017.171 ( 0) |
| [30] |
Pérez-Juárez H, Serrano-Vázquez A, Lara E, et al. Population dynamics of amoeboid protists in a tropical desert: Seasonal changes and effects of vegetation and soil conditions[J]. Acta Protozoologica, 2018, 57(4): 231-242 DOI:10.4467/16890027AP.18.017.10093 ( 0) |
| [31] |
Geisen S, Tveit A T, Clark I M, et al. Metatranscriptomic census of active protists in soils[J]. The ISME Journal, 2015, 9(10): 2178-2190 DOI:10.1038/ismej.2015.30 ( 0) |
| [32] |
Liu J, Qiu T Y, Peñuelas J, et al. Crop residue return sustains global soil ecological stoichiometry balance[J]. Global Change Biology, 2023, 29(8): 2203-2226 DOI:10.1111/gcb.16584 ( 0) |
| [33] |
Bohlool B B, Ladha J K, Garrity D P, et al. Biological nitrogen fixation for sustainable agriculture: A perspective[J]. Plant and Soil, 1992, 141(1/2): 1-11 ( 0) |
| [34] |
Zhu S S, Vivanco J M, Manter D K. Nitrogen fertilizer rate affects root exudation, the rhizosphere microbiome and nitrogen-use-efficiency of maize[J]. Applied Soil Ecology, 2016, 107: 324-333 DOI:10.1016/j.apsoil.2016.07.009 ( 0) |
| [35] |
Wu X, Zhang T, Zhao J N, et al. Variation of soil bacterial and fungal communities from fluvo-aquic soil under chemical fertilizer reduction combined with organic materials in North China Plain[J]. Journal of Soil Science and Plant Nutrition, 2021, 21(1): 349-363 DOI:10.1007/s42729-020-00365-0 ( 0) |
| [36] |
Hu X J, Gu H D, Liu J J, et al. Different long-term fertilization regimes affect soil protists and their top-down control on bacterial and fungal communities in Mollisols[J]. Science of the Total Environment, 2024, 908: 168049 DOI:10.1016/j.scitotenv.2023.168049 ( 0) |
| [37] |
Tilman D. Resource competition and community structure[M].
Princeton University Press, Princeton, 1982
( 0) |
| [38] |
Danger M, Daufresne T, Lucas F, et al. Does Liebig's law of the minimum scale up from species to communities[J]. Oikos, 2008, 117(11): 1741-1751 DOI:10.1111/j.1600-0706.2008.16793.x ( 0) |
| [39] |
Kuzyakov Y, Blagodatskaya E. Microbial hotspots and hot moments in soil: Concept & review[J]. Soil Biology and Biochemistry, 2015, 83: 184-199 DOI:10.1016/j.soilbio.2015.01.025 ( 0) |
| [40] |
Geisen S, Koller R, Hünninghaus M, et al. The soil food web revisited: Diverse and widespread mycophagous soil protists[J]. Soil Biology and Biochemistry, 2016, 94: 10-18 DOI:10.1016/j.soilbio.2015.11.010 ( 0) |
| [41] |
Saleem M, Hu J, Jousset A. More than the sum of its parts: Microbiome biodiversity as a driver of plant growth and soil health[J]. Annual Review of Ecology, Evolution, and Systematics, 2019, 50: 145-168 DOI:10.1146/annurev-ecolsys-110617-062605 ( 0) |
2. Soil Health Laboratory in Shanxi Province, Taiyuan 030031, China